Ultimate Computing
Nota editorial
Esta es una edición piloto en español. Mantiene el título histórico del libro y conserva las imágenes documentales de UC-images/ como parte del argumento visual, no como decoración.
La traducción prioriza la lectura técnica: ritmo de párrafo, términos biomoleculares, leyendas de figura, tabla de contenidos, búsqueda y enlace de retorno a la edición inglesa cuando la fidelidad bibliográfica lo aconseja.
Portada
Biomolecular Consciousness and NanoTechnology
Las actividades a escala de una milmillonésima en ensamblajes biomoleculares podrían definir la vida misma, y proporcionar una frontera para la evolución de la tecnología.
Stuart R. Hameroff
Department of Anesthesiology College of Medicine University of Arizona Tucson, Arizona, U.S.A
Publicado originalmente © Elsevier Science Publishers B.V., 1987
Todos los derechos reservados. ISBN: 0 444 70283 0
En 2003, esta edición electrónica fue derivada de la edición impresa original de 1987 con permiso de Elsevier Science Publishing para uso de Stuart R. Hameroff, quien conserva los derechos de distribución electrónica. Aparte de algunos cambios de formato, en su mayoría relacionados con software (o cualquier scanning glitch no detectado), el cuerpo principal de este texto debería ser esencialmente idéntico al original. © 2003 Stuart Hameroff
Nota de S.H.: Desde 1972 me habían fascinado las posibles capacidades computacionales de los microtúbulos dentro de células vivas, y en 1987 escribí "Ultimate Computing" (con ayuda y guía de Conrad Schneiker, quien también aportó la información presciente sobre nanotechnology y referencias cuánticas). Sin embargo, varios años después me convencí de que el procesamiento clásico de información, incluso hasta el nivel de los microtúbulos dentro del cerebro, era insuficiente para explicar la conciencia. En ese punto leí "The Emperor's New Mind", de Roger Penrose, y seguí la vía cuántica, trabajando con Roger para aplicar sus ideas sobre computación cuántica mediada por gravedad cuántica en el cerebro a los microtúbulos. Fue una edición de tapa dura de "Ultimate Computing" la que despertó el interés de Roger.
Preludio
¿Qué es este libro, y por qué ha sido escrito por un anestesiólogo? Este libro es una visión de la co-evolución de la conciencia y la tecnología: pasado, presente y futuro.
Este libro ha sido escrito por un anestesiólogo debido a una confluencia de dos fascinaciones. La primera es la naturaleza de la conciencia, que los anestesiólogos borran y restauran rutinariamente en sus pacientes. La segunda es una trayectoria de quince años de nociones que no se iban. Mientras era estudiante de tercer año de medicina, en 1972, pasé una práctica electiva de investigación de verano en un laboratorio de cáncer. Por alguna razón quedé fascinado y fijado por una pregunta particular. Cuando las células se dividían, los cromosomas eran separados y la arquitectura de las células hijas era establecida por filamentos tenues llamados husos mitóticos (“microtúbulos”) y orgánulos cilíndricos llamados centriolos. De algún modo, los centriolos y los husos “sabían” cuándo moverse, adónde ir y qué hacer. El mecanismo uncanny de guía y orientación de estas diminutas estructuras biomoleculares parecía requerir algún tipo de inteligencia motorizada. Aproximadamente al mismo tiempo, las técnicas de microscopía electrónica estaban revelando que el interior de todas las células vivas estaba densamente lleno de filamentos tenues, algunos de los cuales eran idénticos a los husos mitóticos. Interconectadas en redes paralelas dinámicas, se pensaba que estas estructuras cumplían un papel puramente de soporte, o estructural mecánico, y fueron denominadas colectivamente “citoesqueleto”.
Pero varios factores sugerían que el citoesqueleto era más que los “huesos” estructurales de la célula: manipulaba actividades dinámicas, orquestando procesos complejos y altamente eficientes como crecimiento celular, mitosis y transporte. Otro factor era la ausencia de cualquier otro candidato para la organización dinámica “en tiempo real” dentro de las células. Los planos de largo plazo y la información genética residían claramente en DNA y RNA, y las membranas realizaban funciones dinámicas en las superficies celulares. Sin embargo, seguía siendo desconocido un mecanismo para la ejecución, organización y actividades momento a momento dentro de las células. ¿Dónde estaba el sistema nervioso dentro de la célula? ¿Había un controlador biológico? Este libro se basa en la premisa de que el citoesqueleto es el sistema nervioso de la célula, el controlador/computador biológico. En el cerebro esto implica que los niveles básicos de la cognición están dentro de las células nerviosas, que los filamentos citoesqueléticos son las raíces de la conciencia. El pequeño tamaño y las rápidas actividades conformacionales de las proteínas citoesqueléticas están apenas más allá de la resolución de las tecnologías actuales, por lo que sus dinámicas potenciales permanecen inexploradas y una capacidad controladora citoesquelética no ha sido puesta a prueba. Tecnologías del futuro cercano podrán funcionar en la nanoescala (nano = 10-9; nanómetro = una milmillonésima de metro, nanosegundo = una milmillonésima de segundo) y, con suerte, resolverán estas preguntas. Si, en efecto, las dinámicas citoesqueléticas son la textura del procesamiento intracelular de información, estas mismas “nanotechnologies” deberían permitir monitorización directa, decodificación e interfacing entre dispositivos de información biológicos y tecnológicos. Esto, a su vez, podría resultar en importantes aplicaciones biomédicas y quizá en una fusión de mente y máquina: Ultimate Computing.
Una consideración minuciosa de estas ideas implica numerosas disciplinas, todas ellas al menos tangencialmente relacionadas con la anestesiología. Entre ellas se incluyen bioquímica, ciencia cognitiva, ciencia de la computación, ingeniería, matemáticas, microbiología, biología molecular, farmacología, filosofía, física, fisiología y psicología. Como experto en ninguna, pero dabbler en todas, espero que los verdaderos expertos en estos campos encuentren mis esfuerzos, no obstante, interesantes.
Partiendo de una perspectiva citoesquelética, este libro arroja metáforas hacia la verdad. Quizá una o más den en el blanco, o al menos se acerquen.
Agradecimientos
Este libro es un efecto colectivo de las siguientes personas: Ralph Abraham, Ross Adey, Sigma Alpha, Fred Anderson, Amy Barnes, Joanne Barnes, Michel Bornens, Burnell Brown, George Carlson, Forrest Carter, Peter Christiansen, Jim Clegg, John Condeelis, Leonor Cruzeiro, Marc DeBrabander, Yves Engelborghs, Lawrence Fried, Herbert Fröhlich, Kit Grantham, Jamie, Harrison, Lillian, Amy, y toda la familia Hameroff/Kaplan/Bowman, Max Headroom, Emery Hetrick, Dixie Holmes, Paul Jablonka, Martha Juarez, Jan Julianus, Ben Kahn, Charles Kiselyak, Djuro Koruga, Julio Kuperman, Teruo Matsumoto, Leo Martin, Kathleen McAuliffe, Claris Nelson, Michio Okuma, Karl Pribram, Mary Quimby, Steen Rasmussen, Conrad Schneiker, Alwyn Scott, Steven Smith, Branko Soucek, Arthur Villa, Rich Watt, Juli Weiss y Arthur Winfree.
La mayor parte del artwork fue realizada con esmero por el científico/ingeniero de sistemas/artista Paul Jablonka. Conrad Schneiker suministró la mayor parte del material sobre nanotechnology y replicators para el Capítulo 10, y compiló los apéndices. Estoy en deuda con el Laboratory for Advanced Mathematics and Physics de la Technical University of Denmark y con la Danish Camping Union, que nos acogieron a mí, Jamie y Harrison durante nuestro sabático. Aprecio sinceramente los esfuerzos de mis colegas del Department of Anesthesiology y del College of Medicine, University of Arizona, que me permitieron tiempo y latitud mental. Gracias al port de Personal TeX del TeX de Don Knuth, más el LaTeX de Leslie Lamport, el DVILASER/PS de Textset, el Turbo Lightning de Boreland, el PostScript de Adobe Systems, el Macintosh y la LaserWriter de Apple, el PC/AT de IBM y sus clones, la impresora láser PS800 de QMS y las máquinas de Xerox y sus clones. También se agradece mucho el soporte técnico siempre amistoso y competente de Textset, Personal TeX y HDS Systems. [Nota de 2003: Por diversas razones, la versión electrónica de este libro fue formateada con el a menudo maravillosamente conveniente, pero también a veces obnoxiously troublesome, Microsoft Word 2002. Aunque Word 2002 fue en conjunto un gran ahorro de tiempo comparado con las herramientas previas, algunas cosas bastante básicas que antes funcionaban bien de entrada habrían requerido demasiado trabajo adicional para replicarlas razonablemente aquí. Por tanto, las personas, productos y compañías mencionados arriba no deberían ser considerados responsables de los resultados tipográficos irónicamente a veces menos satisfactorios unos 16 años después.]
Finalmente, Jan Julianus y Elsevier North-Holland merecen crédito por su instigación y paciencia.
Dedicatoria
A H. H., que amaba apostar.
Hacia Ultimate Computing
Mente/Tecnología: fusión en la nanoescala
La biología y la tecnología evolucionan hacia métodos más eficientes de procesamiento de información. Con una ventaja inicial de mil millones de años, la biología ha evolucionado la conciencia humana; la tecnología parece estar alcanzándola rápidamente.
Ultimate Computing es el destino común de la evolución de los sistemas de procesamiento de información tanto en la biología como en la tecnología. Por ahora es una extrapolación de trayectorias convergentes, pero Ultimate Computing podría existir pronto en la nanoescala. Nano = 10-9: un nanómetro es una milmillonésima parte de un metro, y un nanosegundo es una milmillonésima parte de un segundo.
Las subunidades dentro de ensamblajes de proteínas biológicas —polímeros citoesqueléticos, orgánulos, proteínas de membrana, cápsides virales— tienen dimensiones nanométricas y experimentan oscilaciones conformacionales en escalas temporales de nanosegundos. Las excitaciones en la nanoescala, que pueden ser coherentes y estar acopladas a desplazamientos dipolares intraproteicos, pueden generar “modos colectivos” comunicativos dentro de ensamblajes proteicos y proporcionar un sustrato para el procesamiento biológico de información.
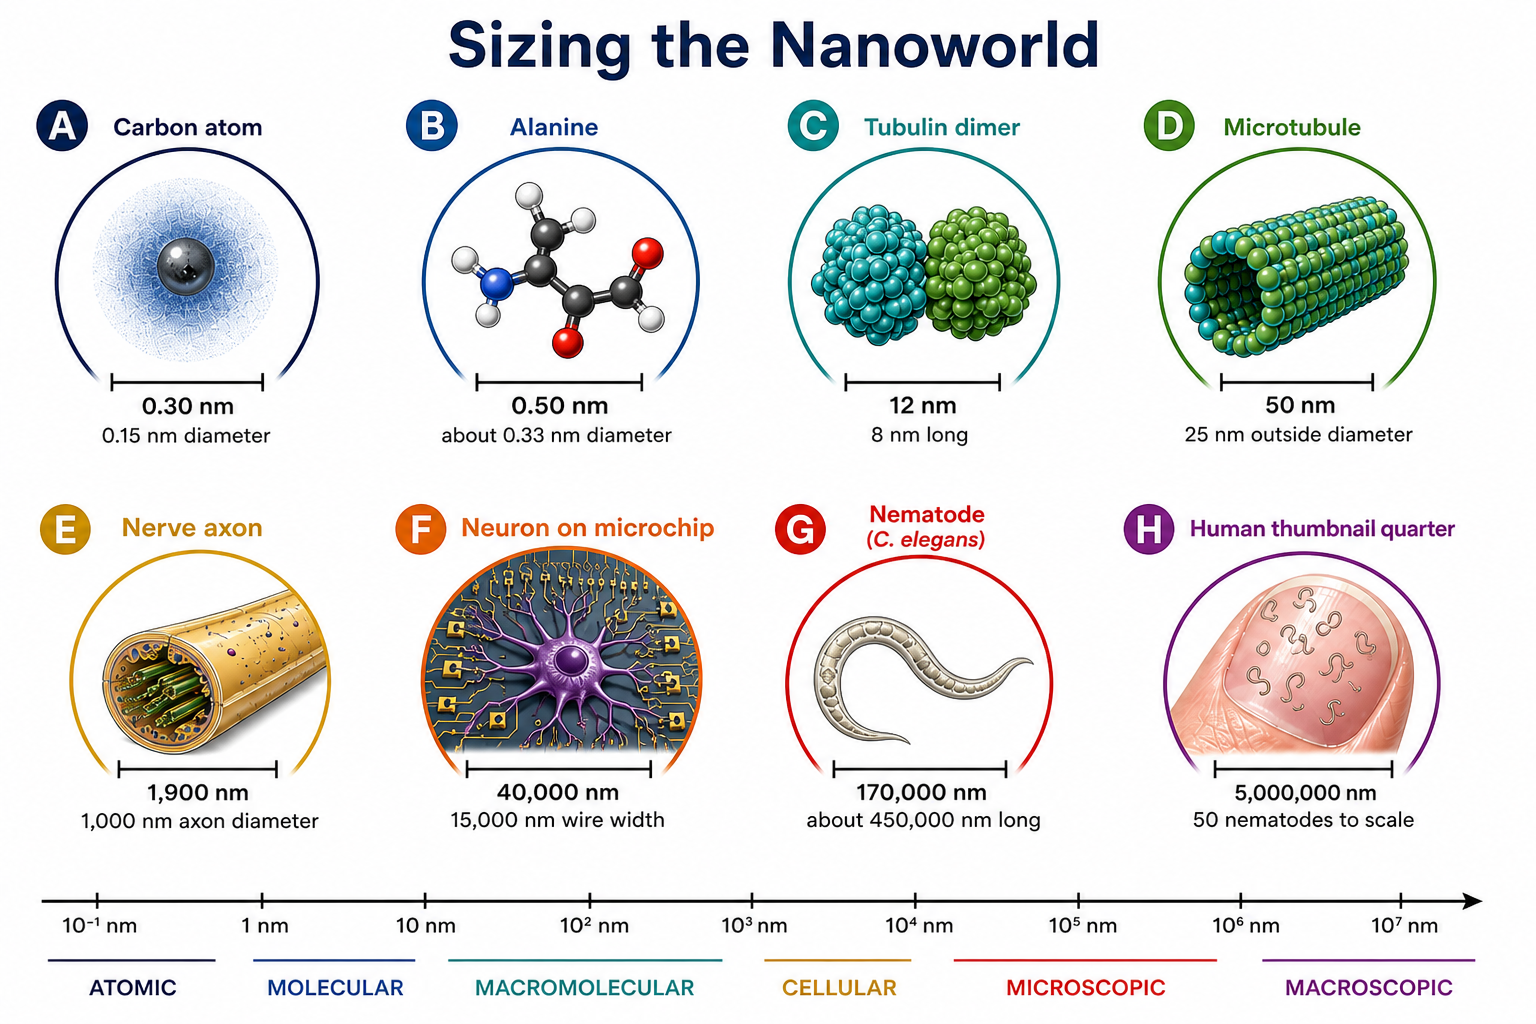
Así, la “nanoescala” (Figura 1.1) podría ser el lugar donde ha evolucionado la inteligencia viva. Coincidentemente, dispositivos en la nanoescala, incluidos ordenadores moleculares, máquinas de Feynman y replicadores de von Neumann, se están volviendo factibles mediante tecnologías como la microscopía de efecto túnel. Una unión en la nanoescala entre biomoléculas y dispositivos nanotecnológicos, capaz de comunicación directa y transferencia de información, podría tener beneficios profundos para la biomedicina y para nuestra cultura en general.

Figure 1: Figura 1.1 Dimensionar el nanomundo. El diámetro de cada círculo se expresa en nanómetros (nm). A) 0,30 nm: un átomo de carbono, de 0,15 nm de diámetro. B) 0,50 nm: alanina, un aminoácido con 13 átomos, incluidos 3 carbonos, de unos 0,33 nm de diámetro. C) 12 nm: un dímero de tubulina, subunidad de los microtúbulos, de 8 nm de longitud. D) 50 nm: un microtúbulo, tubo de 13 lados con un diámetro externo transversal de 25 nm. E) 1900 nm: un axón nervioso pequeño de 1000 nm de diámetro podría contener 100 microtúbulos y 1000 filamentos más pequeños. F) 40.000 nm: una célula nerviosa cultivada sobre la superficie de un chip Motorola 68000. G) 170.000 nm: un nematodo, organismo pequeño con menos de 1000 células, unas 300 de ellas neuronas. H) 5.000.000 nm: una cuarta parte de una uña humana con 50 nematodos representados a escala. Por Paul Jablonka.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; condensa los datos de escala de la leyenda en un remake explicativo moderno.
La mezcla de conciencia y tecnología computacional es un sueño recurrente. La inteligencia artificial basada en la organización cerebro/mente es un paso tentativo en esa dirección, como también lo es el uso propuesto de arreglos de proteínas autoensambladas como circuitos de conmutación o “biochips”. El esfuerzo japonés hacia el “Computador de Sexta Generación” apunta a “integrar biología y tecnología” fusionando la investigación en inteligencia artificial y las funciones de los organismos vivos (Corcoran, 1987). Al intentar comprender las condiciones requeridas para mantener la “homeostasis” biológica, los japoneses esperan embarcarse en una simbiosis entre estructuras biológicas inteligentes y dispositivos tecnológicos, ¡e incluso predicen un “cerebro artificial”! Un ingrediente faltante para tal fusión Mente/Tecnología es una comprensión del mecanismo de la conciencia. La mayoría de los modelos de organización cerebral consideran que las células nerviosas y sus conexiones son las unidades fundamentales de procesamiento de información del cerebro. Sin embargo, actividades profundamente complejas e inteligentes ocurren dentro de las células nerviosas. Además, organismos simples como la ameba unicelular y el paramecio realizan tareas complejas sin beneficio de cerebro o sistema nervioso.
En este libro vemos el citoesqueleto —redes de polímeros proteicos que ocupan y organizan el interior de todas las células vivas (Figura 1.2)— como un sistema de procesamiento de información altamente evolucionado que opera en niveles de nanoescala. Las actividades colectivas en la nanoescala del citoesqueleto y de estructuras relacionadas pueden explicar la organización biológica, el procesamiento de información y la conciencia, y pueden ser también el objetivo de la evolución futura de la tecnología.

Figure 2: Figura 1.2 Citoesqueleto dentro de células que acaban de dividirse. Los microtúbulos intracelulares se visualizan mediante inmunotinción. Las áreas esféricas son núcleos celulares, junto a los cuales están los densos centros organizadores de microtúbulos (MTOC). Con permiso de DeBrabander, Geuens, DeMey y Joniav (1986), cortesía de Marc DeBrabander.
Evolución de la tecnología
La emulación tecnológica de la vida desde el siglo XIII ha sido revisada por la autora Claris Nelson (1985). Se dice que Albertus Magnus creó un sirviente mecánico semejante a un ser vivo, hecho de metal, madera, vidrio, cuero y cera, capaz de abrir puertas y saludar a los visitantes. Fue considerado una obra blasfema del demonio por su alumno Tomás de Aquino, quien lo destruyó. Los escritores de ciencia ficción predijeron computadores y robots mucho antes de que existieran. En 1879, The Ablest Man in the World, de Edward Page Mitchell, presentaba un cerebro mecánico; y en 1928, en The Metal Giants de Edmund Hamilton, un cerebro artificial se volvía contra sus creadores.
Los computadores descienden de las máquinas de calcular, la más temprana de las cuales fue el ábaco. En 1642, el matemático y filósofo francés Pascal fabricó una calculadora mecánica que usaba el sistema decimal para sumar y restar. En 1694, el matemático y filósofo alemán Leibniz creó un “Stepped Reckoner”, diseñado para multiplicar, dividir y calcular raíces cuadradas. No funcionó, pero utilizaba principios que más tarde serían esenciales para los computadores modernos. Las tareas se descomponían en muchísimos pasos matemáticos simples usando números binarios y se ejecutaban secuencialmente. Cuando más tarde los computadores llegaron a operar mediante electricidad, el cero y el uno binarios pasaron a representarse por apagado y encendido. A comienzos de la década de 1800, George Boole desarrolló el “álgebra booleana”, la lógica matemática mediante la cual se diseñan los circuitos computacionales. Charles Babbage y Ada Lovelace —la hija mayor de Lord Byron— diseñaron una “máquina analítica” usando tarjetas perforadas. La tecnología contemporánea a ellos no pudo construir la máquina con suficiente precisión, pero fue construida y funcionó en el siglo XX.
El primer computador electrónico fue aparentemente construido y operado en 1939 por John Vincent Atanasoff, físico teórico de la Iowa State University (Mackintosh, 1987). Poco después, Alan Turing y sus colegas en Bletchley, Inglaterra, diseñaron un computador para realizar todos los cálculos matemáticos posibles. Se basaba en el trabajo de Turing que demostraba los límites lógicos de la computabilidad y fue usado para descifrar el código alemán “Enigma” durante la Segunda Guerra Mundial. En una presentación magistral de ideas clave desarrolladas previamente por otros pioneros, John von Neumann hizo avanzar más el diseño computacional al separar la máquina de sus problemas. Antes de von Neumann, un computador tenía que recablearse para cada nueva tarea. Con suficiente tiempo, memoria y software, los computadores podían resolver problemas que pudieran descomponerse en secuencias finitas de pasos lógicos. La mayoría de los computadores actuales usan procesamiento “serial” basado en el diseño de von Neumann. En la década de 1940, la University of Pennsylvania desarrolló el primer computador electrónico, el Electronic Numerical Integrator and Calculator o “ENIAC”. Pesaba 30 toneladas, ocupaba 3.000 pies cúbicos de espacio y contenía 18.000 tubos de vacío, uno de los cuales fallaba cada siete minutos. Podía calcular problemas de física nuclear en dos horas que habrían tomado a 100 ingenieros un año para completar. Hoy, la misma capacidad está disponible en un chip. En 1950 Remington Rand comercializó UNIVAC, que trataba con palabras y números almacenados por su equivalente binario. Desde entonces han evolucionado aproximadamente cuatro generaciones de computadores por aumento de demanda y avances en diseño, tamaño de chip, materiales y otros factores. Por las mismas razones, avances ulteriores parecen inevitables.
Von Neumann y Turing esperaban que los computadores pudieran duplicar nuestra capacidad de pensar, de modo que nuestras mentes pudieran amplificarse como nuestros músculos habían sido amplificados por las máquinas industriales. Sin embargo, la evolución posterior de los computadores mediante procesamiento serial parece limitada. Los computadores y la inteligencia artificial evolucionan ahora hacia sistemas paralelos basados en la arquitectura del cerebro y en modelos de redes neuronales; un paso futuro puede ser una inteligencia autoorganizadora en la nanoescala.
Von Neumann es uno de varios “padres del computador”. En el procesamiento “serial” que formalizó hábilmente, la información fluye en una dimensión. En las décadas de 1950 y 1960, von Neumann (1966) y Stanislav Ulam desarrollaron la matemática de la computación en múltiples dimensiones. Consideraron espacios de información bidimensionales con subunidades discretas (“células”) cuyos estados podían variar según los estados de las células vecinas. Cada célula y sus relaciones de vecindad eran idénticas. Reglas relativamente simples entre vecinos e intervalos discretos de tiempo (“generaciones”) conducían a patrones evolutivos y autoorganización, exquisitamente sensibles a las condiciones iniciales. Llamaron a estos sistemas “autómatas celulares”. Von Neumann describió un autómata “computador universal” que podía resolver cualquier problema si se le daba área y tiempo suficientes. Hoy, los tecnólogos de computadores están considerando las profundas ventajas de implementar autómatas de escala molecular (Milch, 1986).
Edward Fredkin, del Massachusetts Institute of Technology, ha considerado los autómatas multidimensionales y la discreción del tiempo y de la materia. Sostiene que el universo es un autómata celular cuyas “células” son partículas atómicas y subatómicas (Wright, 1985). El universo está hecho de información, razona Fredkin. Los autómatas celulares pueden generalizarse como “computadores primordiales”, de los cuales todos los demás computadores y sistemas complejos serían ejemplos particulares. Autómatas celulares en estados conformacionales de subunidades citoesqueléticas podrían procesar información biológica y ser el sustrato de la conciencia.
La tendencia actual en diseño computacional e inteligencia artificial, o “IA”, es la conectividad paralela, emulando el cerebro. Muchas clases de problemas pueden resolverse descomponiéndolas en pasos matemáticos seriales. Los computadores electrónicos actuales procesan serialmente a gran velocidad y pueden resolver problemas matemáticos complejos mucho más rápido que los humanos solos. Sin embargo, funciones cualitativas que el cerebro realiza naturalmente —reconocer patrones o emitir juicios— son extremadamente difíciles para los computadores. Considera la letra “a”. La reconocemos automáticamente, en cualquier tipo de letra, en casi cualquier escritura a mano salvo la peor. Para nuestros cerebros es simple, rápida, obvia incluso si falta. Si vemos “Sally ‘leyó’ un periódico”, insertamos mentalmente la “a” ausente. El científico de computadores/IA Jerome Feldman (1985) cita el ejemplo de interpretar el enunciado “John threw a ball for charity”. Las ambigüedades inherentes de este tipo de enunciado pueden resolverse en un sistema altamente paralelo en el que múltiples interpretaciones simultáneas son procesadas y evaluadas. Arrojar una esfera frente a organizar un baile puede resolverse por el calificativo “for charity”, que es mucho más consistente con un baile que con una esfera. Los cerebros humanos resuelven comúnmente conflictos entre impulsos o entradas diferentes, aunque no hacerlo puede causar problemas psiquiátricos o emocionales. Al menos según la ciencia ficción, los computadores pueden sufrir perturbaciones similares. En 2001: Space Odyssey, de Arthur C. Clarke y Stanley Kubrick, y en su secuela 2010, el computador “Hal 9000” se vuelve psicótico por instrucciones en conflicto y reacciona matando a los viajeros espaciales porque su misión era demasiado importante para confiársela a ellos.
El cerebro/mente puede realizar funciones “cognitivas”, incluida la resolución de conflictos, mediante procesos “subcognitivos” como reconocer patrones, hacer suposiciones y realizar saltos imaginativos. El efecto neto es la conciencia: un efecto colectivo de procesos más simples.
Inteligencia colectiva
Un fenómeno colectivo es más el producto de sus partes que la suma de sus partes. Ha sido explicado por el biofísico John Hopfield (1982), de Cal Tech, cuyos modelos de “red neuronal” son colectivos.
Supón que pones dos moléculas en una caja: de vez en cuando chocan, y eso es un acontecimiento emocionante. Si pusiéramos diez o incluso mil moléculas más en la caja, solo tendríamos más choques. Pero si ponemos un billón de billones de moléculas en la caja, aparece un fenómeno nuevo: ondas sonoras.

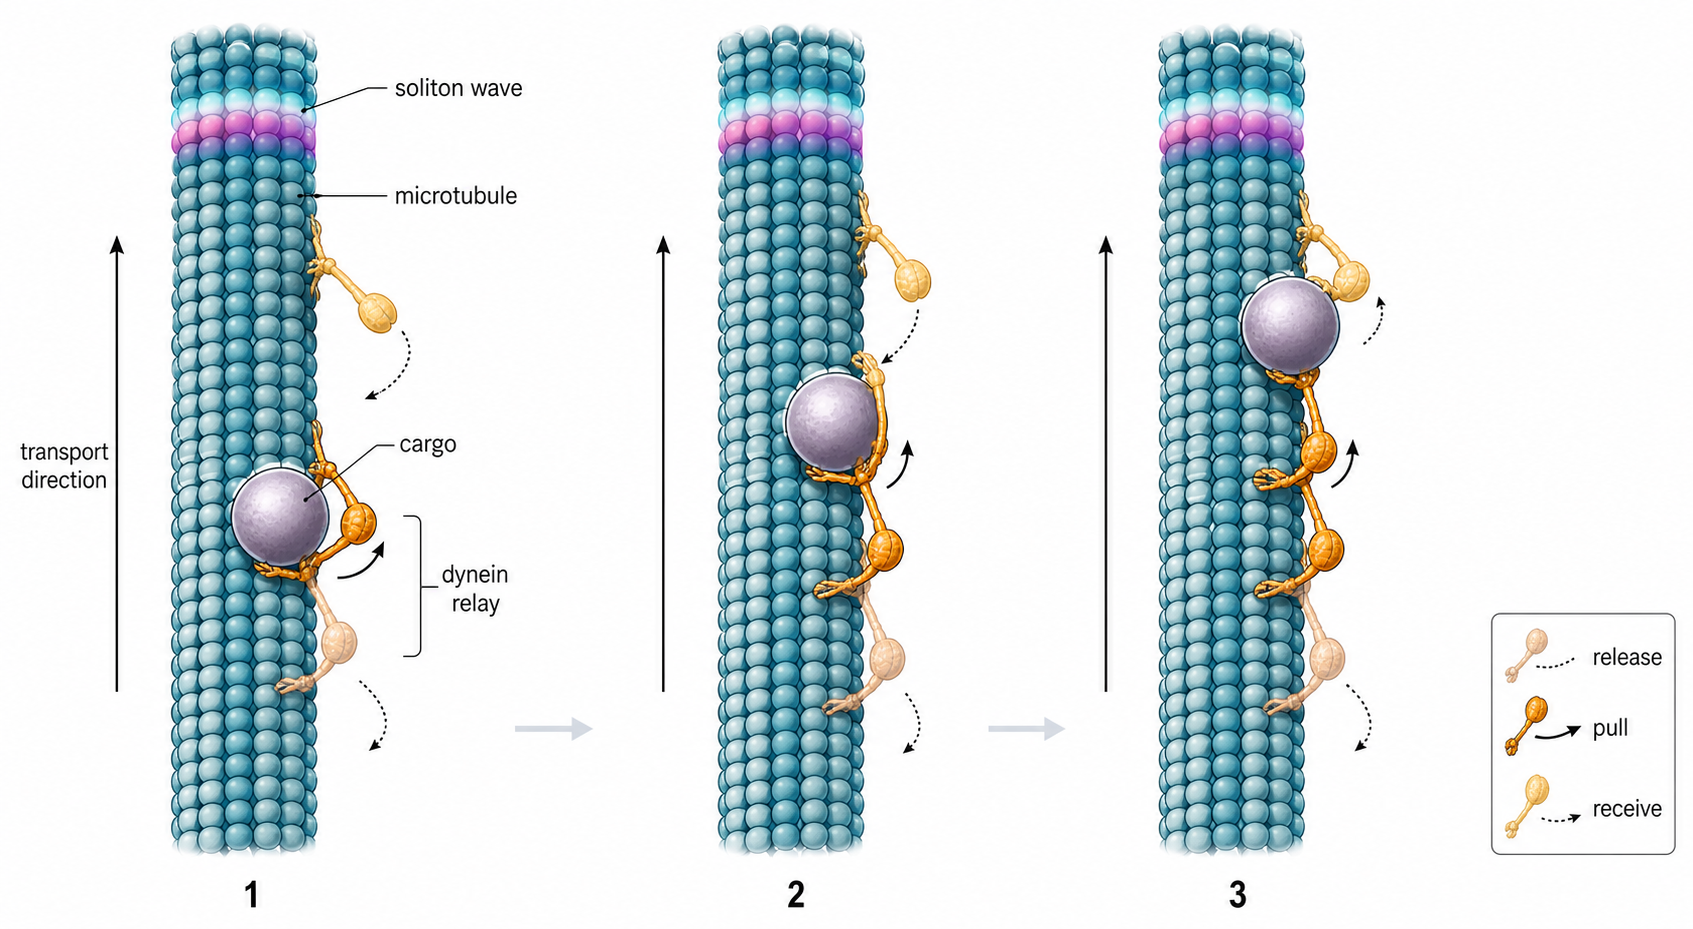
Figure 3: Figura 1.3 El transporte axoplásmico ocurre por actividades coordinadas de proteínas contráctiles laterales unidas a microtúbulos (“dineína”), que pasan material cooperativamente en una “cadena de cubos”. El mecanismo de orquestación es desconocido, pero aquí se muestra como consecuencia de señales por ondas “solitón” de estados conformacionales de las subunidades de microtúbulos. Por Fred Anderson.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; reinterpreta el mecanismo de la leyenda como un diagrama explicativo moderno más claro.
La observación de dos, diez o miles de esas moléculas no sugeriría el Mozart o la Madonna que pueden surgir en una colección de más de un trillón de trillones de moléculas. Otros ejemplos de fenómenos colectivos pueden verse en colmenas, colonias de hormigas, equipos de fútbol, gobiernos y varios tipos de transiciones de fase en materiales. La superconductividad y el magnetismo, por ejemplo, son efectos colectivos que ocurren en ciertos metales cuando sus átomos individuales entran en alineación. Al enfriar estos metales, cesan las fluctuaciones térmicas, los átomos se alinean mucho, y por debajo de una temperatura crítica emergen propiedades cualitativas totalmente diferentes de superconductividad o magnetismo.
¿Cómo podrían los fenómenos colectivos vincularse con la conciencia? Las transmisiones sinápticas entre neuronas cerebrales son relativamente lentas, de varios milisegundos por cómputo; son unas 100.000 veces más lentas que un interruptor típico de computador. Sin embargo, problemas de visión y lenguaje pueden resolverse en unos pocos cientos de milisegundos, o lo que parecería ser unos 100 pasos seriales. Investigadores de inteligencia artificial (IA) concluyen que esta riqueza computacional se explica por efectos colectivos de paralelismo y rica interconexión.
Con miles de millones de neuronas, cada una conectada con hasta cientos de miles de otras neuronas, los conexionistas de IA ven el cerebro como un fenómeno colectivo de neuronas individualmente tontas. Se piensa que grupos de neuronas altamente conectadas alcanzan conducta inteligente mediante propiedades de feedback y reverberación. Walter Freeman (1972, 1975, 1983), de la University of California at Berkeley, sostiene que una “masa crítica” de unas 100.000 neuronas produce conducta inteligente. Sin embargo, la conducta inteligente ocurre dentro de nematodos de 1000 células y 300 neuronas, dentro del citoplasma en organismos unicelulares y dentro de neuronas individuales. Neuronas individuales con decenas a cientos de miles de conexiones no pueden ser tontas y cumplir sus múltiples funciones, integrar input/output y modular la fuerza de conexión sináptica. ¡Cada célula nerviosa es un sistema sofisticado de procesamiento de información en sí y por sí mismo! El citoesqueleto dentro de las neuronas y de todas las células vivas es una red paralela conectada que puede usar sus propios fenómenos colectivos para organizar y procesar información subcelular (Figura 1.3). El citoesqueleto puede transmitir patrones analógicos que pueden ser símbolos conectados (Capítulo 8). Aunque pasado por alto por investigadores de IA, el citoesqueleto puede aprovechar los mismos atributos usados para describir redes de nivel neural. Las propiedades de redes que pueden conducir a efectos colectivos entre neuronas y subunidades citoesqueléticas incluyen paralelismo, conexionismo y cooperatividad coherente.
Paralelismo
Las generaciones previas de arquitectura computacional se han basado en el concepto de von Neumann de procesamiento secuencial, serial. En el procesamiento serial, los pasos de cómputo se realizan consecutivamente, lo que consume tiempo. Un solo bit falso de información puede producir una cascada hacia una salida caótica. El cerebro, con sus vías nerviosas altamente paralelas, aparece como una posible alternativa.
En la computación paralela, la información entra en un gran número de vías computacionales que procesan los datos simultáneamente. En computadores paralelos, los procesadores de información pueden ser independientes entre sí y avanzar a ritmos individuales. Procesadores separados, o grupos de procesadores, pueden abordar distintos aspectos de un problema dado de manera asincrónica. Como ejemplo, Reeke y Edelman (1984) han descrito un modelo computacional de un par paralelo de autómatas de reconocimiento que usan rasgos complementarios (Capítulo 4). El procesamiento paralelo requiere reconciliación de múltiples salidas que pueden diferir debido a que procesadores individuales están sesgados de manera diferente que sus contrapartes, realizan funciones diferentes, o por error aleatorio. Voting o reconciliación debe ocurrir por conexión lateral, que también puede funcionar como memoria asociativa. La salida de una matriz paralela es un efecto colectivo de la entrada y del procesamiento, y suele ser un consenso que depende de múltiples rasgos de los datos originales y de cómo son procesados.
Las vías paralelas y lateralmente conectadas de fibras nerviosas inspiraron a los investigadores de IA a apreciar y adoptar el paralelismo. Las redes citoesqueléticas dentro de las células nerviosas son altamente paralelas e interconectadas, mil veces más pequeñas, y contienen de millones a miles de millones de subunidades citoesqueléticas por célula nerviosa.
La evolución actual de los computadores hacia el paralelismo ha engendrado la “Connection Machine” (Thinking Machines, Inc.), que es un ensamblaje paralelo de 64.000 microprocesadores. Los primeros científicos de la computación habrían quedado impresionados con un ensamblaje de 64.000 interruptores sin darse cuenta de que cada uno era un microprocesador. De modo similar, los científicos cognitivos actuales quedan impresionados con los miles de millones de neuronas dentro de cada cerebro humano sin considerar que cada neurona es ella misma compleja.
Otra etapa de la evolución computacional aparece como paralelismo de redes multidimensionales, o “hipercubos”. Los hipercubos son redes de procesadores cuya topología de interconexión se ve como un cubo “n-dimensional”. Los “vértices” o “nodos” son los procesadores, y las “aristas” son las interconexiones. El paralelismo en “n dimensiones” conduce a hipercubos que pueden maximizar el potencial computacional disponible y, con programación óptima, producir efectos colectivos. La interconexión compleja observada entre neuronas cerebrales y entre estructuras citoesqueléticas puede describirse con más precisión como arquitectura de hipercubo que como simple paralelismo. Los hipercubos se ejemplifican en las Figuras 1.4, 1.5 y 1.6.
Hans Moravec (1986), IA/roboticista de Carnegie-Mellon University, ha intentado calcular el “poder computacional” de un computador y del cerebro humano. Considerando el número de “siguientes estados” disponibles por unidad de tiempo en dígitos binarios, o bits, Moravec llega a las siguientes conclusiones. Un microcomputador tiene una capacidad de alrededor de 106 bits por segundo. Moravec calcula el “poder computacional” del cerebro suponiendo 40.000 millones de neuronas que pueden cambiar de estado cientos de veces por segundo, lo que resulta en 40 x 1011 bits por segundo. Incluir el citoesqueleto aumenta inmensamente la capacidad potencial de procesamiento de información. Los microtúbulos son las estructuras citoesqueléticas más visibles. Haciendo algunas suposiciones aproximadas sobre la densidad citoesquelética (es decir, microtúbulos espaciados unos 1000 nanómetros) y el volumen del cerebro que es citoplasma neuronal, se llega a unas 1014 subunidades de microtúbulos en un cerebro humano (ignorando neurofilamentos y otros elementos citoesqueléticos). Como se describe en los Capítulos 5 y 6, la frecuencia de cambios de estado de subunidades citoesqueléticas puede ser mayor que miles de millones por segundo. El citoesqueleto es capaz no sólo de una inmensa capacidad de información, sino que parece estar diseñado de tal manera que patrones de estados conformacionales interactuantes pueden realizar funciones computacionales. Varias teorías que proponen tales mecanismos se describirán en el Capítulo 8 (9 en esta edición).

Figure 4: Figura 1.4 Hipercubo de seis dimensiones con 64 nodos y 6 conexiones por nodo. Generación por computador de Conrad Schneiker.
El cerebro es un sistema continuo. Los computadores clásicos han operado sobre funciones recursivas repetitivas para procesar información por lotes y obtener la salida como producto final. De manera similar, la mayoría de los diseños de procesamiento paralelo tienen puntos discretos de entrada y salida. Carl Hewitt (1985) ha descrito sistemas abiertos dentro de computadores en los que el procesamiento puede no detenerse nunca, puede proporcionar salida mientras la computación sigue en operación, y puede aceptar entrada de fuentes no previstas cuando comenzó el cómputo. Como el cerebro/mente humano, los sistemas abiertos continuos pueden interactuar con el ambiente y adaptarse a situaciones nuevas. Hewitt describe un sistema computacional paralelo asincrónico que puede hacer uso de múltiples entradas y salidas y cuyos elementos paralelos están conectados por “arbiters” que “pesan” y reconcilian contenido diferente, y pueden proporcionar entrada y salida continuas. Entre neuronas cerebrales, los “arbiters” parecerían ser conexiones sinápticas entre neuronas paralelas lateralmente conectadas. Dentro del citoesqueleto, filamentos de conexión lateral y proteínas asociadas a microtúbulos (“MAPs”) podrían servir como arbiters lógicos.

Figure 5: Figura 1.5 Hipercubo de ocho dimensiones con 256 nodos y 8 conexiones por nodo. Generación por computador de Conrad Schneiker.
Hewitt sostiene que los sistemas paralelos abiertos son “no jerárquicos” porque entrada y salida se procesan continuamente a través de todo el sistema. Las primeras visiones de la organización cerebro/mente asumían un arreglo jerárquico de unidades de procesamiento. Se pensaba que la entrada sensorial era procesada y retransmitida a niveles cada vez más altos de cognición hasta alcanzar una sola “neurona abuela” o “Mind's Eye” que comprendía la “esencia” de la entrada. La investigación cerebral clásica de Lashley (1929, 1950) y otros (Capítulo 4) sugiere fuertemente que la memoria y la información están distribuidas por todo el cerebro, y que no existen arreglos anatómicos jerárquicos específicos que conduzcan a “neuronas abuela”.
El “Mind's Eye” no está localizado en un sitio dado, sino que es móvil sobre amplios volúmenes del cerebro. Suponiendo que los humanos realmente comprenden la esencia de al menos algunas cosas, ¿quién o qué está comprendiendo? El sitio y la naturaleza de la atención, el “self”, la conciencia o el Mind's Eye siguen siendo una cuestión filosófica y una barrera para la fusión Mente/Tecnología. La estructura neuroanatómica y el almacenamiento distribuido de información cerebral apuntan hacia sistemas computacionales cerebro/mente altamente paralelos y abiertos, que pueden ocurrir tanto en el nivel neural como dentro de las neuronas, en el citoesqueleto. El componente perceptivo de la conciencia, el “Mind's Eye”, puede ser una jerarquía móvil determinada por dinámicas colectivas.
Conexionismo
El Mind's Eye puede ser el ápice de una jerarquía colectiva de sistemas paralelos en la que el citoesqueleto y estructuras relacionadas son la planta baja. Los sistemas paralelos, tanto en computadores como en sistemas biológicos, dependen de conexiones laterales y redes para proporcionar la riqueza y complejidad requeridas por el procesamiento sofisticado de información. Las simulaciones computacionales de redes paralelas conectadas de interruptores relativamente simples (“neural nets”) desarrollan “funciones tipo cognitivas” en niveles suficientes de complejidad conectiva: un “fenómeno colectivo” (Huberman y Hogg, 1985). El filósofo John Searle (Pagels, 1984), que tiene un sesgo comprensible contra la noción de que los sistemas computacionales puedan alcanzar equivalencia con la conciencia humana, señala que los computadores pueden realizar tareas enormemente complejas sin apreciar la esencia de su situación. Searle compara esto con un individuo que clasifica caracteres chinos en categorías específicas sin entender su significado, incapaz de hablar chino. Compara el computador con el individuo que clasifica información sin comprender su esencia.
Sería difícil probar que los seres humanos comprenden la esencia de algo. No obstante, incluso la simulación de acontecimientos tipo cognitivos es interesante. Los modelos de neural nets y las redes conexionistas (descritas con más detalle en el Capítulo 4) han sido caracterizados matemáticamente por John Hopfield (1982), de Cal Tech, y otros. Su trabajo sugiere que las soluciones a un problema pueden entenderse en términos de minimizar una función de energía asociada y que errores aislados o datos incompletos pueden, dentro de ciertos límites, tolerarse. Hopfield describe las funciones de energía de las neural nets como si tuvieran contornos como colinas y valles en un paisaje. Al minimizar funciones de energía, la información fluye (metafóricamente) como lluvia que cae sobre el paisaje, formando arroyos y ríos hasta que ocurren estados estables (“lagos”). Ha surgido un nuevo concepto en la teoría de neural nets conexionistas con el uso de redes multinivel. Geoffrey Hinton (1985), de Carnegie-Mellon University, y Terry Sejnowski, de Johns Hopkins University, han trabajado en permitir que las neural nets encuentren soluciones óptimas, como encontrar el lago particular más bajo en todo un paisaje. Según Sejnowski (Allman, 1986; Hinton, Sejnowski y Ackley, 1984), el truco es evitar quedarse atascado en una diminuta depresión entre dos montañas:
Imagina que tienes un modelo de un paisaje en una caja grande y quieres encontrar el punto más bajo del terreno. Si dejas caer una canica en la caja, rodará durante un rato y se detendrá. Pero puede no ser el punto más bajo, así que sacudes la caja. Después de sacudirla lo suficiente, usualmente lo encuentras.

Figure 6: Figura 1.6 Hipercubo de diez dimensiones con 1.024 nodos y 10 conexiones por nodo. Generación por computador de Conrad Schneiker.
Hinton y Sejnowski han usado este concepto de sacudir matemáticamente sus simulaciones de neural nets para encontrar soluciones óptimas. Requiere una jerarquía multinivel de sistemas paralelos de modo que un nivel pueda “sacudir” o ajustar un nivel inferior. Tal arreglo quizá pueda explicar la relación entre capas jerárquicas de sistemas paralelos dentro del cerebro. Por ejemplo, redes neurales basadas en conexión sináptica pueden regular (y ser reguladas por) redes más pequeñas, más rápidas y más abarcadoras en el citoesqueleto intracelular.
Comparaciones extensas entre procesamiento de información en el cerebro e inteligencia artificial han sido revisadas por A. M. Decallatay (1986), quien considera que las leyes del pensamiento descritas en la filosofía han sido redescubiertas por la IA: “El mundo mental de Platón se reproduce en los símbolos físicos de Newell y Simon”. DeCallatay observa que la IA representa datos mediante punteros virtuales que conectan símbolos. En los computadores estas relaciones virtuales son cables reales con conexión potencial de compuerta; en el cerebro parecen ser conexiones sinápticas neuronales. Dentro de las neuronas pueden ser filamentos puente cruzado que conectan microtúbulos citoesqueléticos. Como experto en computación que evalúa el cerebro, DeCallatay afirma que el cerebro aprende abriendo compuertas para construir nuevas conexiones entre elementos activados simultáneamente. Ve la presencia o ausencia de espinas dendríticas desempeñando el papel de un interruptor “todo o nada” en el nivel neural. Las espinas dendríticas son proyecciones nudosas de citoplasma cubierto de membrana en dendritas neuronales que son generadas y mantenidas por el citoesqueleto y forman sinapsis con otras neuronas. La teoría más aceptada para aprendizaje y memoria en el cerebro es la del fortalecimiento de sinapsis específicas dentro de circuitos neurales, una idea generada por Donald Hebb (1949). Como se describirá en los Capítulos 4 y 5, las actividades estructurales dinámicas del citoesqueleto son responsables de todos los reordenamientos citoplasmáticos, incluida la formación y regulación de espinas dendríticas y sinapsis. Las espinas son ramificaciones de dendritas que a su vez son ramificaciones de neuronas. Una dimensión adicional de complejidad, estos apéndices citoesqueléticos son candidatos principales para la “plasticidad sináptica”, la piedra angular de modelos prevalentes de aprendizaje y memoria cerebrales.
Cooperatividad y Coherencia
Los efectos colectivos manifestados como reverberación difusa, oscilación sostenida, transiciones de fase y caos determinista han sido observados en simulación computacional de redes paralelas (Choi y Huberman, 1984). Los mecanismos colectivos pueden ejercer cooperatividad de largo alcance y un nivel ejecutivo de organización dentro de matrices paralelas. Las transiciones de fase colectivas en matrices paralelas cerebrales podrían ser una trama de la conciencia, una “idea” que emerge como la propiedad de superconductividad a partir de un gran número de subunidades simples, “alineadas”. En la mayoría de las visiones, la sinapsis neuronal es la subunidad fundamental del cerebro; sin embargo, las actividades sinápticas son el resultado neto de procesos dinámicos orquestados por el citoesqueleto. Capas de organización citoesquelética son evidentes dentro de las neuronas, y su participación en funciones cognitivas parece inevitable. Así, el citoesqueleto altamente ramificado puede ser otra dimensión de la organización cerebral, quizá relacionada con las redes neuronales como un “fractal”. Muchos procesos naturales manifiestan fractales, patrones de crecimiento en los que áreas locales son imágenes reducidas del patrón entero. Esto ocurre mediante alguna forma de correlación de largo alcance en el patrón: los componentes “saben unos de otros a distancias muy por encima del rango de las fuerzas entre ellos” (Sander, 1986). Las relaciones fractales son un tipo de cooperatividad de largo alcance (Figuras 1.7 y 1.8). Las redes densamente paralelas e interconectadas de estructuras citoesqueléticas se parecen a redes de neuronas de escala mayor, y pueden verse como subdimensiones fractales de redes neurales.
La cooperatividad de largo alcance y los mecanismos colectivos son favorecidos por la propiedad de coherencia, que significa que las excitaciones de energía máxima dentro de un área ocurren “en fase”, o simultáneamente, como en un láser. ¿Cómo puede surgir la coherencia en procesos distribuidos? DeCallatay (1986) propone que la coherencia en el cerebro y la IA necesita ser impartida desde la parte superior de una jerarquía hacia abajo, como el director ejecutivo de una corporación que establece metas e intenciones. Una visión diferente es la de un ritmo o pulso subyacente al que todos los elementos están sintonizados. El acoplamiento rítmico entre neuronas puede ser importante, y algunos intérpretes de la actividad eléctrica cerebral (EEG) creen que el entrainment regional de ondas cerebrales conduce a regiones funcionales de representación mental. Una coherencia más fundamental en el nivel de ensamblajes proteicos puede ser universalmente importante para la cooperatividad y la comunicación biológicas.

Figure 7: Figura 1.7 Fractal de árbol en el que los patrones de ramificación son los mismos en cada escala, o dimensión. Hay orden de largo alcance. Generación por computador de Conrad Schneiker.

Figure 8: Figura 1.8 Fractal de caja ramificada en el que los patrones son idénticos en cada escala, o dimensión. Hay orden de largo alcance. Generación por computador de Conrad Schneiker.
Las proteínas y sus componentes oscilan entre estados conformacionales específicos que existen transitoriamente durante duraciones que van desde femtosegundos (10-15 sec) hasta minutos o más. Como se describirá en el Capítulo 6, los estados conformacionales funcionales parecen acoplados a oscilaciones de nanosegundo (10-9 sec) y a “estados metastables” más prolongados. Herbert Fröhlich, un físico eminente que ayudó a desarrollar la teoría de la superconductividad en la década de 1950, ha dedicado esfuerzos recientes a la cuestión de la cooperatividad en sistemas biológicos. Fröhlich (1970, 1975, 1984) sostiene que la energía bioquímica suministrada a ensamblajes biomoleculares puede resultar en vibraciones elásticas coherentes de subunidades individuales en el rango temporal sub-nanosegundo. El efecto presupone un efecto de voltaje en la biomolécula (es decir, un “electret”) y una estructura espacial organizada cuya geometría favorece el acoplamiento entre subunidades. Las oscilaciones coherentes en un medio apropiado como el citoesqueleto pueden conducir a fenómenos colectivos tales como cooperatividad de largo alcance, comunicación y holografía.
Otro modelo puede ayudar a explicar la cooperatividad de largo alcance en biomoléculas. El biofísico soviético A. S. Davydov ha considerado la transferencia de energía casi sin pérdida en cadenas o retículas biomoleculares como propagaciones ondulatorias de perturbaciones conformacionales y electrónicas acopladas: “solitons”. Davydov usó el concepto de soliton para explicar acontecimientos de nivel molecular en la contracción muscular; sin embargo, los solitons en el citoesqueleto pueden hacer lo que hacen los electrones en los computadores.
Los enfoques de Fröhlich y Davydov pueden verse como complementarios (Tuszynski, Paul, Chatterjee y Sreenivasan, 1984). El modelo de coherencia de Fröhlich se centra en efectos independientes del tiempo (estados estables) que conducen al orden, mientras que el modelo de Davydov mira efectos dependientes del tiempo que propagan orden a través del sistema. Estas y otras teorías de efectos colectivos aplicadas al procesamiento de información en retículas citoesqueléticas se describirán en los Capítulos 6 y 8 (7 y 9 en esta edición).
Computación Molecular
Para aproximarse a las capacidades cognitivas del cerebro humano, la IA debe emular la estructura cerebral en la nanoescala. El hardware computacional está efectivamente evolucionando hacia componentes de conmutación más pequeños, y se están considerando las ventajas de las proteínas mismas. La evolución hacia lo pequeño de los elementos tecnológicos de computación abarca un número de conceptos y materiales conocidos colectivamente como “computación molecular”.
Las ventajas potenciales de los computadores moleculares han sido descritas por D. Waltz (1982), de Thinking Machines Corporation. 1) El diseño computacional “planar” actual está limitado en densidad global y uso del espacio tridimensional. 2) Una miniaturización adicional está limitada con tecnologías de silicio y arseniuro de galio. Los chips y cables no pueden hacerse mucho más pequeños sin volverse vulnerables a radiación cósmica errante o impurezas de semiconductores. 3) Los dispositivos basados en biomoléculas pueden ofrecer posibilidades de auto-reparación o auto-regeneración. 4) Ciertos tipos de computación analógica, de patrones, pueden ser particularmente adecuados para computadores moleculares.
Forrest L. Carter (1984), del Naval Research Laboratory, ha catalizado el movimiento de la computación molecular mediante sus propias contribuciones y patrocinando una serie de reuniones sobre Molecular Electronic Devices (en 1981, 1983, 1986). Las estrategias descritas por Carter y otros en sus reuniones han estado dirigidas a implementar computación en nanoescala mediante conmutación en arreglos materiales de poliacetilenos, películas Langmuir-Blodgett, moléculas electro-ópticas, proteínas y una cantidad de otros materiales. La interfaz entre dispositivos de nanoescala y tecnologías de macroescala es un obstáculo con varias soluciones posibles: 1) ingeniería hacia arriba, componentes autoensamblados, 2) comunicación óptica, 3) cables moleculares, 4) no hacer interfaz; construir sistemas que sean totalmente de nanoescala (aunque tendrían que ser desarrollados y probados de algún modo), y 5) un puente sensible entre macroescala y nanoescala. Las tecnologías que pueden cumplir esta última posibilidad incluyen nanolitografía por haz de iones, espectroscopía molecular, dispositivos de pozo cuántico y microscopía de efecto túnel (STM). En STM, posicionadores piezocerámicos controlan un conductor ultraafilado con una punta monoatómica que puede sondear e imaginar superficies materiales con resolución de nivel atómico. Las nanotools relacionadas con STM pronto pueden ser capaces de fabricación e interfaz ultraminiatura: “nanotecnología” (Capítulo 10).
El medio del flujo de información en computadores convencionales es el flujo de corriente electrónica, pero la transferencia de electrones puede ser demasiado costosa energéticamente e innecesaria en la nanoescala molecular. Muchos de los modos proyectados de computación molecular dependen de la propagación de ondas de acoplamiento no lineal llamadas “solitons”, similares a lo que Davydov propuso para biomoléculas lineales. Carter (1981) propuso que los solitons podrían propagarse a través de circuitos de conmutación hechos de cadenas ramificadas de poliacetileno. También ha considerado computación molecular en arreglos periódicos usando tunneling electrónico, “valving” de soliton y cambios conformacionales fotoactivados en materiales reticulares. Imagina memorias tridimensionales de escala molecular y densidades de conmutación de 1015 a 1018 elementos por centímetro cúbico, cerca del límite teórico para separación de carga. Una cantidad de materiales puede ser adecuada para conmutación por soliton y se ha sugerido propagación biológica de solitons en proteínas. Varios autores han argumentado a favor de solitons citoesqueléticos mediando procesamiento de información (Capítulo 8).
Michael Conrad, de Wayne State University, ha definido su visión de un computador molecular en el que las proteínas integran múltiples modos de entrada para realizar una salida funcional (Conrad, 1986). Además de una escala de tamaño menor, la computación molecular basada en proteínas ofrece arquitecturas y dimensiones computacionales diferentes. Conrad sugiere que los computadores “no-von Neumann, no seriales y no de silicio” serán “dependientes del contexto”, con entrada procesada como estructuras físicas dinámicas, patrones o símbolos analógicos. Condiciones multidimensionales determinan el estado conformacional de cualquier proteína: temperatura, pH, concentraciones iónicas, voltaje, momento dipolar, vibración electroacústica, estado de fosforilación o hidrólisis, estado conformacional de proteínas vecinas ligadas, etc. Las proteínas integran toda esta información para determinar la salida. Así, cada proteína es un computador rudimentario y convierte una entrada analógica compleja en un estado de salida o conformación.
Conrad y Liberman (1982) han definido un “computador extremal” como uno que usa recursos físicos tan efectivamente como sea posible para la computación. Sugieren que un computador extremal debería ser un computador molecular, con interruptores individuales o subunidades de representación de información compuestas de moléculas. El estado de cada subunidad de información debería estar acoplado a un acontecimiento de energía cerca del límite cuántico. Los estados conformacionales de proteínas apalancados a oscilaciones dipolares en la nanoescala pueden ser ese límite. Conrad y Liberman concluyen que, dentro de sistemas biológicos, la computación macromolecular ocurre por cambios conformacionales que generan “patrones de reacción-difusión” de concentraciones de moléculas bioquímicas de energía (AMP cíclico).
Una conferencia de 1984 (Yates, 1984) consideró Chemically Based Computer Designs (Yates, 1984) e intentó responder 6 preguntas relevantes. 1) ¿Hay limitaciones fundamentales, mecánico-cuánticas, sobre la computación? Esta pregunta trata de la pérdida de energía debida a fricción u otros factores en la computación. El trabajo de Benioff (1980, 1982), Landauer (1982) y Feynman (1986) conduce a la conclusión de que, en principio, la computación puede lograrse mediante un sistema sin fricción y conservador de energía. Así, parece no haber limitaciones mecánico-cuánticas sobre la computación. 2) ¿Hay limitaciones fundamentales, termodinámicas, sobre la computación? Aunque hay algunas operaciones computacionales que son irreversibles y disipativas, el trabajo de Landauer (1982) y Bennett (1982) muestra que no hay limitaciones termodinámicas fundamentales sobre la computación per se. 3) ¿Hay límites fundamentales al procesamiento serial en computadores digitales basados en interruptores binarios? Esta pregunta tiene implicaciones filosóficas (¿funciona el universo mediante procesos continuos o discretos?) y por tanto no puede responderse con seguridad. El consenso de la conferencia fue que probablemente hay límites a la computación serial, digital. 4) ¿Cuáles son las limitaciones físicas prácticas del diseño computacional? Hay varias limitaciones prácticas a la miniaturización adicional de circuitos de conmutación digitales. Sin embargo, esos límites probablemente no se alcanzarán durante décadas. 5) ¿Cuáles son las contribuciones potenciales de la electrónica molecular al diseño de computadores digitales? La conferencia consideró cambios conformacionales moleculares, solitons, flujo de carga y otros enfoques. Compuertas, cables e interruptores moleculares pueden valer la pena intentar construir, aunque redundancia y paralelismo pueden ser necesarios. 6) ¿Inspiran los sistemas bioquímicos imitaciones tecnológicas para el propósito del diseño computacional? Muchos sistemas biológicos (DNA, anticuerpos, receptores, enzimas) fueron revisados y una conclusión mayor fue que,
Ninguno de estos materiales es tan rico en fenómenos físicos quimioeléctricos como lo son los objetos biológicos microscópicos (citoesqueléticos). ¡Los microtúbulos ofrecen la mayor cantidad de posibilidades para inspirar computación basada químicamente! (Yates, 1984)
Representación Dinámica de Patrones
El procesamiento de patrones o símbolos es conducente a la computación óptima. Los patrones pueden representarse dinámicamente mediante una cantidad de mecanismos descriptivos que serían útiles tanto en IA como en sistemas biológicos. Estos incluyen sistemas de reacción-difusión, hologramas, macrons y autómatas celulares.
Sistemas de Reacción-Difusión
Los sistemas de reacción-difusión son patrones evolutivos que resultan de varios tipos de reacciones y difusión de productos dentro de un medio dinámico. Conrad y Liberman (1982) han sugerido sistemas biológicos de reacción-difusión dentro del citoplasma submembrana como mecanismo de representación biológica de información. En su modelo, los patrones de reacción-difusión del nucleótido rico en energía, AMP cíclico, regulados por la membrana, son la textura de la información citoplasmática. La propagación e interacción de ondas químicas no lineales conduce a formación de patrones en una cantidad de medios químicos y biológicos (Winfree y Strogatz, 1984). En la bien estudiada “reacción Belousov-Zhabotinsky”, ondas espirales de reacción química se propagan a velocidad uniforme e interactúan con otras ondas para producir patrones complejos. Las ondas irradian desde centros espirales a una tasa de unos pocos milímetros por minuto mientras las espirales giran en aproximadamente un minuto. Varias reacciones químicas con tasas de difusión adecuadas y cambios visibles de color de los productos de reacción muestran estos patrones característicos, igual que células de ameba cultivadas que responden a pulsos de AMP cíclico (Figura 1.9). Fenómenos similares también se han reportado en redes nerviosas retinianas y corticales y en músculo cardíaco. Los patrones de reacción-difusión de escala menor son, en consecuencia, más rápidos.

Figure 9: Figura 1.9 Patrones espaciales y temporales autoorganizadores descritos por el sistema químico de reacción-difusión conocido como reacción Belousov-Zhabotinsky y emulado por sistemas biológicos. Con permiso de Arthur Winfree.
Winfree y Strogatz (1984) han estudiado la conducta tridimensional de los sistemas de reacción-difusión. Encuentran que las ondas de reacción-difusión aparecen comúnmente como espirales involutas o pergaminos que irradian desde diminutos patrones de actividad rotatoria llamados “centros organizadores”. Los pergaminos emanan de su eje organizador central, que típicamente forma un anillo cerrado o vórtice toroidal. El origen de las ondas se define como una singularidad de fase cuya vecindad inmediata es un patrón rotatorio de actividades químicas, el pivote de la onda espiral rotatoria desde el que irradia. La espiral ostensiblemente plana es en realidad una sección transversal de una onda tridimensional con forma de pergamino que emerge de un filamento de singularidad en 3 dimensiones (Figura 1.10).

Figure 10: Figura 1.10 Simulación computacional tridimensional de un sistema de reacción-difusión. Un centro organizador filamentoso emana patrones de “anillo de pergamino”. Con permiso de Arthur Winfree.
Los microtúbulos citoplasmáticos y los centriolos son centros organizadores que podrían comportarse como las singularidades descritas por Winfree y Strogatz. Actividades dinámicas del citoesqueleto pueden liberar ondas difusoras de iones de calcio que pueden alterar la naturaleza del citoplasma circundante mediante transformaciones sol-gel (Capítulo 5). La codificación por proteínas asociadas a microtúbulos (MAPs) y otros factores podría resultar en patrones de reacción-difusión específicos del estado dinámico del centro organizador. Tales patrones podrían bastar como memoria de corto plazo en células que van desde protozoos simples hasta neuronas del cerebro humano. Otro tipo de patrón interactivo tridimensional con propiedades interesantes es el holograma.
Hologramas
El cerebro almacena archivos de imagen de una manera “distribuida” que resiste el daño local y permite una recuperación correcta incluso cuando se presentan claves o direcciones variables. Una explicación es que la memoria, el aprendizaje y las funciones cognitivas en tiempo real están representadas en el cerebro por patrones de interferencia que son la convergencia de dos o más trenes de ondas: fuentes de información de señal y de referencia (Hudspeth y Jones, 1975). Los patrones de interferencia pueden ser dinámicos, expresivos, ordenados o caóticos; un ejemplo es el oleaje oceánico como interfaz y monitor de los efectos colectivos de viento, corriente, playa, mareas, enlaces del agua, etc. Los patrones de interferencia se usan en tecnologías de información e imagen como interferometría, procesamiento coherente, filtrado de autocorrelación, reconocimiento de patrones y muchas otras cuyas capacidades están limitadas por su medio de acoplamiento (Dolgoff, 1975). Todo el espacio en el universo es, como dijo el filósofo alemán del siglo XVII Leibniz, “el resultado de la coexistencia armoniosa de fuerzas”. La conciencia también puede describirse como la coexistencia dinámica de fuerzas dentro del cerebro, aunque la armonía puede variar con el tiempo.
Un método de registrar y reconstruir frentes de onda asociados con patrones de interferencia se llama “holografía”, una tecnología cuyo mecanismo ha inspirado numerosas especulaciones sobre función cerebral y conciencia “holográficas”. La holografía es un método de almacenamiento de información que emplea haces coherentes de radiación electromagnética. Fue inventada a finales de la década de 1940 por Denis Gabor (1948), quien ganó el Premio Nobel, y alcanzó importancia técnica con la llegada del láser como fuente conveniente de luz coherente en la década de 1950. Un holograma es un registro permanente del patrón de interferencia entre dos fuentes de luz coherente (o cualesquiera formas de onda coherentes) en regiones localizadas del espacio, usualmente una placa de película fotográfica. Ondas de referencia posteriores desbloquean los patrones desde el almacenamiento. Se almacena el registro de ambas ondas interferentes originales y la información relevante se usa como dirección para recuperar patrones. Cada porción del holograma contiene información sobre cada parte de ambas ondas interferentes originales. En consecuencia, la reiluminación de cualquier pequeño fragmento de un holograma recreará la imagen entera almacenada allí, perdiendo sólo foco o claridad. Así, los hologramas almacenan archivos de imagen de una manera “distribuida”, muy similar a como se piensa que funciona el cerebro, y también son “fractales”, en cuanto pequeñas porciones son versiones reducidas del todo. Al exponer un holograma a conjuntos variables en el tiempo de ondas interferentes, puede funcionar como memoria distribuida. Estas propiedades condujeron a una oleada de modelos holográficos del cerebro (Westlake, 1970; Longuet-Higgins, 1968; Pribram, 1971). Entre ellos, van Heerdon (1968) discutió métodos de almacenamiento óptico de información en sólidos usando luz coherente. Van Heerdon señaló que tales sistemas pueden almacenar grandes cantidades de información aunque requieren un sistema de calibración para mantener relaciones de fase exactas entre ondas. Los requerimientos de filtros bien afinados o resonadores coherentes para mantener relaciones de fase entre patrones en el dominio espacial siguen siendo una cuestión mayor respecto de los modelos holográficos de función cerebral y memoria. En consecuencia, se ha cuestionado la existencia biológica de hologramas, basándose en la suposición de que la coherencia y la relación de fase tendrían que ser proporcionadas en el nivel celular o neural. Sin embargo, la coherencia en nanoescala puede tener la periodicidad espacial y temporal requerida para generar hologramas citoplasmáticos. Cristales fotorefractivos pueden producir holografía dinámica, en tiempo real (Gower, 1985). Las dinámicas conformacionales del citoesqueleto podrían afinar y generar ondas estacionarias coherentes y patrones de interferencia de campos de gradiente de calcio, estados sol-gel y estructura de la retícula microtrabecular citoesquelética (Capítulos 6 y 8). Patrones intracelulares dinámicos y deterministas serían útiles en actividades biológicas de toda clase. Modelos holográficos de la conciencia, incluido un enfoque citoesquelético, serán descritos más adelante en capítulos posteriores.
Macrons
La evolución de forma e información desde el caos ha sido llamada “morfogénesis” y relacionada con literatura filosófica de muchas culturas. El matemático Ralph Abraham (1976) ha comparado descripciones matemáticas de la evolución dinámica de la forma biológica con el Rigveda, I-Ching, Kabala y Heráclito. Usando la teoría de catástrofes de Rene Thom (1973) y un dispositivo observacional, el macroscopio de Hans Jenny, Abraham ha estudiado patrones vibracionales colectivos que ocurren ampliamente en la naturaleza y que llama “macrons”. Abraham describe categorías físicas, químicas y eléctricas de macrons que pueden subdividirse más según el estado material del medio del macron. Por ejemplo, macrons físicos pueden ocurrir dentro de un sólido, líquido isotrópico, cristal líquido o gas. Abraham cita un ejemplo de macron sólido: si una placa metálica plana es vibrada transversalmente por una fuerza externa como transductores electromecánicos acoplados, puede observarse un patrón vibracional como una “telaraña” de curvas inmóviles (las líneas nodales de “Chladni”). Observados originalmente espolvoreando arena sobre una placa vibrante, estos patrones se han observado más recientemente por interferometría láser. El patrón es el “macron” y depende de dimensiones y elasticidad intrínsecas del medio, y de frecuencia y amplitud extrínsecas de la fuerza impulsora. La placa es un ejemplo bidimensional; sin embargo, una pelota de goma simple puede visualizarse con modos vibracionales estables caracterizados por distorsiones simétricas de forma separadas por superficies nodales inmóviles. Otro ejemplo de macron es un plato redondo lleno con una capa delgada de líquido isotrópico. Si se calienta el fondo del plato, el líquido pronto empezará a hervir suavemente; la observación cuidadosa revela líneas nodales y hexágonos empaquetados llamados células de Benard dentro de los cuales el líquido convecta toroidalmente. Este fenómeno de Benard, visto también como patrones inducidos por el viento en las arenas del Sahara y otros desiertos, también es considerado por Abraham como un macron. Estos macrons o modos estables dependen también de controles intrínsecos como forma, compresibilidad y viscosidad, y de controles externos como frecuencia y amplitud de la fuerza impulsora.
Otras formas de macrons descritas por Abraham incluyen anillos de humo, opalescencias como concha de abulón, y la aurora boreal o Luces del Norte. Volviendo al cerebro, Abraham conjetura: “un pensamiento es un macron del bioplasma cerebral”. Propone que patrones espaciales de EEG son macrons eléctricos en superficies dendríticas o que los macrons ocurren dentro de células nerviosas. Sugiere que el refuerzo repetitivo de macrons específicos los “endurece” en una forma estructural en un mecanismo de aprendizaje. Los macrons de Abraham pueden compararse con ondas estacionarias, sistemas de reacción-difusión y hologramas, que todos pueden manifestar patrones analógicos tridimensionales de información interactiva adecuados para el citoesqueleto. Otro sistema “digital” de patrones interactivos en retículas dinámicas es el “autómata celular”.
Autómatas Celulares
La conducta compleja resultante de actividades colectivas de subunidades simples ocurre en “autómatas celulares”. El autómata celular original de von Neumann (1966) consistía en una gran cantidad de “células” idénticas conectadas en un patrón uniforme. El término “célula” fue elegido por von Neumann y otros como subunidad indivisible en los “autómatas celulares” basándose en las “células” biológicas como subunidades indivisibles de la vida. Muy parecido a los átomos, antes indivisibles y ahora reconocidos como compuestos de electrones, protones, neutrones, quarks, etc., ahora es evidente que las células biológicas son entidades complejas cuyas acciones dependen de funciones colectivas de estructuras intracelulares incluido el citoesqueleto. No obstante, “celular” en la jerga de autómatas celulares significa un grano indivisible, una subunidad discreta con un número finito de estados. Los rasgos esenciales de los autómatas celulares son: 1) en un momento dado, cada célula está en uno de varios estados; 2) las células están organizadas según una geometría fija; 3) cada célula se comunica sólo con otras células en su vecindario; el tamaño y forma del vecindario son los mismos para todas las células. Según la geometría, el número de vecinos puede ser 4 (rectangular), 6 (hexagonal), 8 (rectangular con esquinas) o más vecinos por subunidad o célula. 4) Hay un reloj universal. Cada célula puede cambiar a un nuevo estado en cada tic del reloj dependiendo de su estado presente y de los estados presentes de sus vecinos. Las reglas para cambiar de estado se llaman reglas de transición de los autómatas celulares. En cada tic del reloj (o “generación”), la conducta de cada célula depende sólo de los estados de sus vecinos y de su propio estado. En autómatas celulares, reglas simples entre vecinos pueden conducir a patrones complejos, dinámicos.
Los autómatas celulares pueden considerarse similares a modelos de retícula tales como un generador de Ising bidimensional. Basados en estados de espín magnético de componentes dentro de una retícula, los generadores de Ising evolucionan hacia patrones estables en los que estados de espín opuesto se alinean en una dirección, y espines iguales se alinean en otra dirección. Un generador de Ising bidimensional generalizado se muestra en la Figura 1.11. Modelos de autómata celular en microtúbulos (Capítulo 8) evolucionan hacia estados similares en los que estados opuestos se alinean en una dirección, y estados similares se alinean en otra dirección (Figura 1.12).
Von Neumann estudió cómo los autómatas celulares podían realizar computaciones útiles. Supuso que una gran cantidad de células empieza en un estado quiescente, o inactivo, y que el input se codificaba colocando una cantidad de células contiguas en un patrón específico. Luego, haciendo correr el reloj a través de una secuencia de generaciones, puede obtenerse un output por los patrones de estados en un tiempo posterior. Se dice que un autómata celular computa universalmente si, para cualquier problema soluble, hay una configuración inicial del autómata celular que evoluciona hasta una configuración que contiene la solución. En cuanto a implementar tales capacidades computacionales, debe establecerse acceso a cada célula para fijar su estado inicial y leer su estado final. Von Neumann descubrió un autómata celular constructor universal en el que una configuración inicial de una pequeña cantidad de células (el “constructor”) puede fijar estados iniciales de células distantes al patrón requerido para resolver cualquier problema. El constructor se comunica con células distantes a través de células intermedias según reglas de transición. Si un autómata celular es constructor universal, puede “programarse” para resolver cualquier problema, incluso si sólo unas pocas células pueden comunicarse con el mundo exterior. Varios autómatas celulares constructores universales han sido ideados en simulación; “constructores” como patrones de conformación de subunidades citoesqueléticas serían mecanismos útiles para la computación biológica.

Figure 11: Figura 1.11 El generador de Ising bidimensional evoluciona hacia un estado estable de estados de espín opuestos alineados horizontalmente, y estados de espín iguales alineados diagonalmente. Esta configuración estable es similar a la simulación de autómata MT (Figura 1.12). Generación por computador de Conrad Schneiker.
Los autómatas celulares son temas frecuentes de las columnas Mathematical Games de Scientific American. Escritas por Martin Gardner y, más recientemente, A. K. Dewdney, estas columnas se han centrado intermitentemente en el juego de “Life”, un autómata celular inventado por el matemático de Cambridge John Conway en 1968 (Gardner, 1970). “Life” se juega sobre una gran cuadrícula bidimensional de células cuadradas. Cada célula tiene ocho vecinos, cuatro en los bordes y cuatro en las esquinas, y existe en uno de dos estados: “muerta” o “viva”. En cada generación, las células pueden morir o cobrar vida, su destino determinado por la cantidad de vecinos vivos. Por ejemplo, una célula viva con menos de dos vecinos vivos, o más de tres, no sobrevivirá (por falta de sustento o sobrepoblación, respectivamente). Una célula muerta nacerá en una generación subsiguiente si tiene exactamente tres vecinos vivos (o “padres”). El juego de Conway fue llamado “Life” porque las células podían estar muertas o vivas; sin embargo, la conducta de los patrones de células “vivas” incluía algunas conductas “parecidas a la vida”. Estas incluían movimiento a través de la cuadrícula y patrones oscilatorios que llegaron a llamarse blinkers, beacons, gliders y beehives. Repitiendo a von Neumann, aunque en un formato mucho más simple, Dewdney (1985) mostró que un computador podía existir dentro del juego de Life.

Figure 12: Figura 1.12 Modelo de autómata celular en microtúbulos (Capítulo 8) alcanza un estado estable en el que estados opuestos están alineados a lo largo del eje largo del MT, y estados iguales alineados a lo largo de filas. Se ve un patrón “kink-like” moviéndose a través de la estructura. Por Paul Jablonka.
Carter Bays ha extendido el juego de “Life” a tres dimensiones (Dewdney, 1987). En su versión, cada célula es un cubo con 26 vecinos, pero las reglas de vecindario son esencialmente las mismas que en el “Life” bidimensional de Conway. Una variedad de conductas interesantes sobreviene en el “Life” de Bays, dependiente de patrones iniciales. Por ejemplo, observó un “glider” de 10 cubos viajando por el espacio como un “sofá en caída libre”. Otra forma de 7 cubos (un “greeter”) muere a menos que esté en presencia de otra estructura. Gliders que pasan cerca de greeters son atrapados y retenidos hasta ser rescatados por un segundo glider que colisiona con el greeter represivo. Emergen otros patrones estables que Bays ha llamado arcades, stairs, helices y space-time barriers. Life y otros autómatas celulares han cautivado a aficionados de la computación que ahora pueden crear sus propios reinos. Más allá de eso, los autómatas celulares tienen implicaciones científicas y matemáticas serias.
Stephen Wolfram (1984) ha visto los autómatas celulares como sistemas de componentes simples capaces de efectos colectivos complejos tales como la simulación de ecuaciones diferenciales parciales y caos determinista. Ha descrito cuatro conductas generales para patrones de autómatas celulares: 1) desaparecen con el tiempo, 2) evolucionan hacia un tamaño finito fijo, 3) crecen indefinidamente a una velocidad fija, 4) crecen y se contraen irregularmente. El tipo tres, que crece indefinidamente a una velocidad fija, a menudo resulta ser auto-similar en escala; partes de tales patrones, cuando se magnifican, son indistinguibles del todo. Así, estos patrones de autómatas celulares se caracterizan por una dimensión fractal.
Wolfram observa que los mecanismos para procesamiento de información en sistemas naturales parecen más similares a los de autómatas celulares altamente paralelos que a computadores convencionales de procesamiento serial. Los “resultados” son dados por la configuración obtenida; el “medio es el mensaje”. Además, “es común en la naturaleza encontrar sistemas cuya complejidad es generada por el efecto cooperativo de muchos componentes simples idénticos”. Los autómatas celulares son sensibles a condiciones iniciales y su conducta se caracteriza por la estabilidad o predictibilidad de su conducta bajo pequeñas perturbaciones en configuraciones iniciales. Con un conjunto dado de reglas, cambios en el valor de un solo sitio inicial pueden conducir a patrones marcadamente diferentes. Tales perturbaciones tienen efectos característicos sobre las cuatro clases de autómatas celulares de Wolfram: 1) ningún cambio en el estado final, 2) cambios sólo en una región finita, 3) cambios sobre una región siempre creciente, 4) cambio irregular. Así, al menos algunos patrones de autómatas celulares son no lineales y deterministas.

Figure 13: Figura 1.13 Autómatas autorreplicantes descritos por Edward Fredkin (Dewdney, 1985). Los estados “off” se muestran completamente negros. Generación por computador de Conrad Schneiker.

Figure 14: Figura 1.14 Autómatas autorreplicantes descritos por Edward Fredkin (Dewdney, 1985). Generación por computador de Conrad Schneiker.
Puede atribuirse a los autómatas celulares existencia dentro de una variedad de ambientes. Quizá la visión más extrema es que el universo es un autómata celular. Edward Fredkin, del MIT, ha estado sosteniendo que el universo puede funcionar según los mismos principios que un autómata celular (Wright, 1985). Cree que el material básico del que todo está hecho puede considerarse información antes que masa y energía. Trabajando en la interfaz de física y ciencia de la computación, Fredkin se ha intrigado con las relaciones entre autómatas celulares y naturaleza. Con las reglas correctas, un autómata celular puede simular la formación de un copo de nieve, una concha de molusco o una galaxia. La visión de Fredkin es aplicar autómatas celulares a niveles fundamentales de la física y a las reglas necesarias para modelar el movimiento de moléculas, átomos, electrones y quarks. Con información suficiente para modelar estas partículas, puede diseñarse un autómata que describa el mundo físico con precisión perfecta. En ese nivel, dice Fredkin, el universo es un autómata celular en tres dimensiones: una retícula de unidades lógicas interactuantes, cada una decidiendo miles de millones de veces por segundo si estará “off or on” en el instante siguiente. Fredkin ve esta información como la trama de la realidad, la materia de la que están hechas la materia y la energía. Argumenta que los autómatas celulares pueden representar el universo tan útilmente como las ecuaciones diferenciales, la alternativa matemática prevalente. La visión de autómata celular es con mucho la más simple. Un niño puede entender las reglas que gobiernan un autómata celular y con lápiz, papel y suficiente tiempo puede predecir el curso de un autómata, incluido trazar el crecimiento de un copo de nieve, las ondulaciones de un estanque o una onda sonora. Los autómatas celulares son el lenguaje de la información pura y pueden estar implicados en el procesamiento biológico de información así como en futuros dispositivos computacionales. Forrest Carter (1984), del Naval Research Lab, y James Milch (1986), de Eastman Kodak, han propuesto ambos la construcción de autómatas moleculares, ensalzando las virtudes del concepto de autómata celular aplicado a problemas de interfaz con dispositivos de escala molecular. Con un computador molecular de autómata celular grande, la comunicación con el mundo “macro” sólo necesita interfaz con un “constructor”, una pequeña porción que puede aprovechar la capacidad entera del autómata celular.
Las subunidades de microtúbulos citoesqueléticos pueden ser particularmente adecuadas para conducta de autómata “celular” y procesamiento de información en la nanoescala. Los autómatas citoesqueléticos y sus consecuencias dinámicas pueden ser un sustrato importante de computación biológica que va desde las acciones de células individuales hasta la conciencia cerebro/mente. ¿Pavimentarán el camino hacia Ultimate Computing?
Brain/Mind/Computer
Metáforas de la Conciencia
Los sistemas de procesamiento de información están evolucionando tanto dentro de formas de vida biológicas como en tecnologías computacionales. El sistema de procesamiento de información más altamente evolucionado parece ser actualmente la conciencia humana, que reside en el cerebro humano. Las relaciones científicas entre conciencia y actividades estructurales del cerebro siguen siendo oscuras y a menudo se las denomina la “dualidad” cerebro/mente. Para explicar esta dualidad, los humanos han percibido históricamente sus mentes en el contexto de temas culturales predominantes, particularmente tecnologías de información. El autor Julian Jaynes (1976) ha narrado cómo las metáforas de la mente son el mundo que percibe. El rastro de metáforas cerebro/mente quizá comenzó durante la Edad de Oro de los griegos. Según Platón, Sócrates dijo:
Imagina … que nuestras mentes contienen un bloque de cera … y di que siempre que deseamos recordar algo que oímos o concebimos en nuestras propias mentes, sostenemos esta cera bajo las percepciones o ideas y las imprimimos en ella como podríamos estampar la impresión de un anillo de sello.
Los griegos viajaban en libertad (mientras sus esclavos hacían el trabajo) y la conciencia era percibida por hombres libres como una entidad libre. Heráclito describió la conciencia como un “espacio enorme cuyos límites nunca podrían ser encontrados”. Más tarde, Agustín de Cartago describió “las montañas y colinas de mi alta imaginación”, “las llanuras y cuevas y cavernas de mi memoria” con “cámaras espaciosas maravillosamente amuebladas con innumerables depósitos”.
Los descubrimientos geológicos en el siglo XIX revelaron un registro del pasado escrito en capas de la corteza terrestre. La conciencia pasó a verse como capas que registraban el pasado de un individuo en capas cada vez más profundas hasta que el registro original ya no podía leerse. Este énfasis en la mente inconsciente creció hasta finales del siglo XIX, cuando la mayoría de los psicólogos pensaba que la conciencia no era sino una pequeña parte de la mente. Cuando la química sustituyó a la geología en estima científica, la conciencia pasó a verse como una estructura compuesta que podía analizarse en un laboratorio en elementos precisos de sensaciones y sentimientos. Cuando las máquinas de vapor se volvieron comunes, el subconsciente fue percibido como una caldera de energía en tensión que demandaba liberación y, cuando era reprimida, empujaba hacia arriba y hacia afuera en conducta neurótica. En la primera parte del siglo XX, las metáforas de la mente continuaron abarcando tecnologías de procesamiento de información como circuitos de conmutación telefónica, grabadoras de cinta, relojes, hologramas y computadores.
El computador es la metáfora cerebro/mente más reciente y ha evolucionado cualitativamente más allá de sus predecesores (como lo ha hecho la conciencia humana). La tecnología computacional se ha aproximado y, en algunos casos, ha superado algunos aspectos de la función cerebral humana, tales como cálculos de “fuerza bruta”. Los computadores también pueden usarse para simular sistemas dinámicos (incluido el cerebro), proporcionando así un medio metafórico. En esfuerzos por construir máquinas computacionales capaces de lógica independiente y toma de decisiones, investigadores de inteligencia artificial (IA) han examinado lo que se sabe sobre el funcionamiento del cerebro y la mente. En consecuencia, han sido conducidos lejos de computadores “seriales” clásicos hacia sistemas masivamente paralelos con altos grados de interconexión lateral. Debido a que el cerebro, a primera vista, es una agregación paralela de miles de millones de neuronas con decenas de miles de conexiones por neurona, los investigadores de IA de la escuela conexionista han visto y modelado el cerebro como “redes neurales” que pueden simularse en computadores convencionales. Estos modelos de neural net, que se discutirán más adelante en este libro, se basan en supuestos relativamente simples respecto de sinapsis interneuronales como interruptores entre neuronas. Patrones dinámicos de actividad de neural net pueden simular sistemas capaces de aprendizaje, reconocimiento independiente, diferentes estados “mentales” y, con algo de imaginación, conciencia rudimentaria. La arquitectura general de los computadores paralelos es similar a neuronas dentro del cerebro, y puede aprovechar el procesamiento simultáneo con resolución lateral de conceptos conflictivos. A pesar de estas similitudes aparentes, la complejidad del cerebro y la vastedad dinámica de la conciencia humana siguen siendo inexpugnables para la tecnología actual. La mente sigue siendo enigmática para el cerebro y el computador.

Figure 15: Figura 2.1 El triángulo metafórico Cerebro/Mente/Computador. ¿Es el citoesqueleto la clave para comprenderlo?
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica el triángulo cerebro/mente/computador y el papel mediador propuesto para el citoesqueleto.
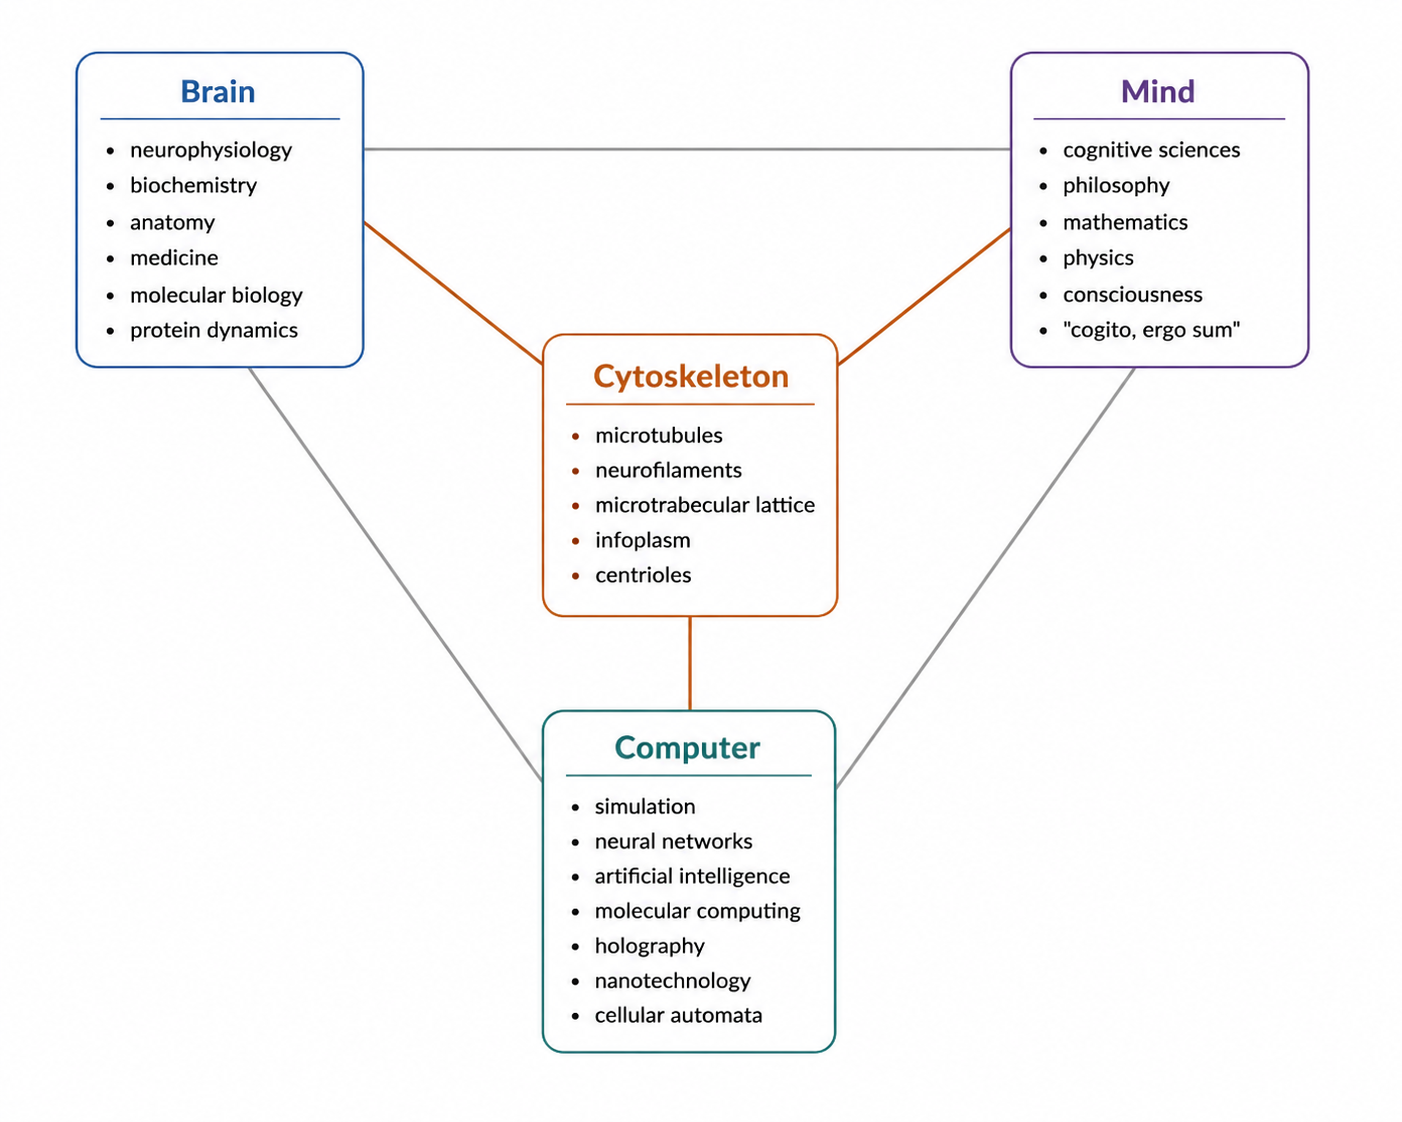
Cerebro, mente y computador son mutuamente metafóricos; cada uno está relacionado con los otros de modos que no se comprenden claramente. Este impasse, el “triángulo cerebro/mente/computador”, se basa en una suposición incorrecta. Se ha supuesto que el sustrato irreductible del procesamiento de información dentro del cerebro es la sinapsis interneuronal, notoriamente lenta. En consecuencia, las sinapsis han sido comparadas con interruptores simples, y el cerebro ha sido comparado con un computador compuesto por una colección de interruptores sinápticos. Debido a que cada neurona dentro del cerebro tiene hasta varios cientos de miles de sinapsis, debe “integrar” información de entre estas sinapsis para regular su output. Las neuronas utilizan una variedad de funciones analógicas que incluyen morfología dendrítica, propiedades de membrana de onda lenta y actividades citoesqueléticas que determinan sus respuestas dentro de redes neurales, y que alteran la eficacia sináptica como mecanismos aparentes de aprendizaje. Así, cada una de los miles de millones de neuronas en el cerebro es un computador. De modo similar, organismos unicelulares que no tienen sinapsis y son agentes independientes realizan tareas complejas que implican toma rudimentaria de decisiones, conducta y organización. Así, el sustrato irreductible básico de la información debería residir dentro de las células biológicas, y el cerebro puede entonces verse como un ensamblaje organizado de miles de millones de computadores en el que propiedades emergentes colectivas pueden estar específicamente relacionadas con la conciencia. La jerarquía de la organización cerebral puede tener así un sótano secreto, una nueva “dimensión”. Avances en imagen intracelular y biología molecular han ilustrado la compleja organización dinámica del citoplasma intracelular. Específicamente, una red de estado sólido densa, paralela, altamente interconectada, de polímeros proteicos dinámicos, el “citoesqueleto”, es un medio que parece ser idealmente adecuado para procesamiento de información, y que está activamente implicado en prácticamente todas las funciones celulares. La apreciación de esta “dimensión citoesquelética” puede ser la clave para el triángulo cerebro/mente/computador (Figura 2.1).
Perspectivas históricas-Consciousness as …
Muchas disciplinas se han ocupado de los intentos por comprender la conciencia. Como el proverbial grupo de ciegos que intenta describir un elefante, la percepción de cada disciplina depende mucho de su orientación y de la parte particular del elefante con la que le toca entrar en contacto. Los ciegos tienen éxito, en buena medida, porque tienen rodeado al elefante.
Algunos consideran que la mente es demasiado complicada para ser descrita por el cerebro humano. ¿Quizá el misterio de la mente sea una barrera necesaria contra la “robotización” del hombre? Como ha dicho el filósofo Richard Rorty: “la inefabilidad de lo mental cumple la misma función cultural que la inefabilidad de lo divino: sugiere vagamente que la ciencia no tiene la última palabra” (Jaynes, 1976). A pesar de estas preocupaciones, ha evolucionado una progresión de teorías y metáforas de la mente, revisada históricamente en el libro de Julian Jaynes, The Origin of Consciousness and the Breakdown of the Bicameral Mind. Jaynes describe ocho soluciones al problema cerebro/mente desarrolladas durante el siglo XX. Describen la conciencia como una propiedad de la materia, del protoplasma, del aprendizaje, como una imposición metafísica, un espectador indefenso, una propiedad emergente de la evolución, conducta, y como actividad dentro del sistema activador reticular del cerebro. Aquí se revisan con modificaciones y adiciones relevantes para la tecnología computacional y la dimensión citoesquelética.
Conciencia como física de partículas/ondas
Los grandes descubrimientos de la física de partículas del siglo XIX disolvieron la solidez de la materia en meras relaciones matemáticas en el espacio. Pensamientos, sentimientos, introspección e interacciones mente-ambiente fueron relacionados con el cerebro como las ondas con los electrones. En el siglo XX, el bioquímico y premio Nobel Albert Szent-Gyorgyi (1960) escribió Introduction to a Submolecular Biology, donde percibía que la esencia de la vida y la conciencia existía en el movimiento coordinado de electrones dentro de proteínas semiconductivas. Otros, incluidos los físicos rusos Pullman y Pullman (1963), compararon la vida y la conciencia con la movilidad de electrones dentro de orbitales de enlace resonantes. El biólogo escocés A. G. Cairns-Smith (1985) ha teorizado que la vida se desarrolló a partir de cristales de arcilla. La estructura de retícula molecular en la arcilla permite relaciones cambiantes entre vecinos y procesamiento de información, que Cairns-Smith ha comparado con el desarrollo genético. Estas visiones equiparan los procesos básicos de la vida con los de átomos y partículas subatómicas. La información se representa como patrones electrónicos dinámicos dentro de computadores, y es seguro que la vida y la conciencia están relacionadas con actividades fundamentales de partículas. Las preguntas son cómo, dónde y en qué nivel de organización.
Conciencia como propiedad del protoplasma
Al creer que la conciencia es una propiedad fundamental de todas las cosas vivas, algunos biólogos del siglo XIX vieron su esencia en la irritabilidad de los organismos unicelulares más pequeños. Libros populares de esa época incluyeron The Animal Mind, de M. F. Washburn, y The Psychic Life of Microorganisms, de Alfred Bonet. La observación de una ameba cazando alimento o respondiendo a diversos estímulos, o de un paramecio evitando obstáculos o conjugándose, condujo a aplicar la psicología humana a tal conducta. Estos conceptos fueron aceptados por Charles Darwin y E. B. Titchner, quienes vieron tal conciencia rudimentaria relacionada con el hombre a través del curso de la evolución.
Un apoyo circunstancial para esta tesis se encuentra en los efectos inhibitorios de gases anestésicos generales sobre el streaming protoplasmático en mohos mucilaginosos, y en la inhibición anestésica de la motilidad ameboide y del paramecio. Esto sugiere un vínculo común entre estas actividades de organismos primitivos y actividades cerebrales relacionadas con la conciencia, en tanto todas son reversiblemente sensibles a las mismas moléculas de gases anestésicos en concentraciones comparables. El streaming protoplasmático, el movimiento ameboide y la motilidad del paramecio dependen todos de actividades dinámicas de estructuras citoesqueléticas, incluidos microtúbulos citoplasmáticos “tipo computador”, transiciones actina sol-gel y apéndices ciliares (Capítulo 5). El vínculo citoesquelético entre procesos sensibles a anestésicos podría ser una pista para el triángulo cerebro/mente/computador.
Jaynes objeta la conciencia protoplasmática, sugiriendo que los humanos quizá estén proyectando sus propias funciones mentales sobre la conducta protozoaria, que él cree reside enteramente en la fisicoquímica antes que en la psicología introspectiva. Sin embargo, la psicología introspectiva misma es con toda probabilidad una función de la fisicoquímica en algún nivel. Si una ameba, o un moho mucilaginoso, o un paramecio no son conscientes, ¿en qué punto de la jerarquía evolutiva emerge la conciencia? El profesor Karl Pribram (1966), de la Universidad de Stanford, conocido por su conceptualización de las funciones de la mente como “holográficas”, recuerda haber sido confrontado con esta cuestión durante una conferencia en el Montreal Neurological Institute a fines de la década de 1950. El famoso neurocientífico Wilder Penfield preguntó a Pribram si la diferencia entre el hombre y los primates no humanos era cuantitativa o cualitativa. Pribram respondió que la diferencia era cuantitativa, pero en tal medida que emergían cambios cualitativos. Citó como ejemplo la tecnología computacional relativamente nueva: vastos aumentos en la capacidad de memoria y de los procesadores centrales habían cambiado la potencia computacional no sólo cuantitativamente sino cualitativamente. Penfield argumentó a favor de una distinción más fundamental para distinguir al hombre. Pribram replicó diciendo que, aunque la única diferencia en estructura cerebral entre el hombre y otros animales es cuantitativa, cambios en la organización, la composición química, la secuencia de desarrollo, y en el momento y la duración de períodos críticos habían llevado a la emergencia colectiva de propiedades cualitativamente distintivas. El vínculo común cuantitativo de la conciencia puede ser el citoesqueleto dentro de células que van desde organismos unicelulares, virus (y quizá formas de “vida” más simples como “prions”, o estructuras proteicas independientes) hasta neuronas dentro del cerebro humano. Las diferencias cualitativas parecen residir en propiedades colectivas no lineales relacionadas, a través de la evolución, con la complejidad estructural.
Conciencia como aprendizaje
Los proponentes de esta visión creían que la conciencia comenzó en algún momento específico después de que la vida evolucionó y que estaba directamente relacionada con el aprendizaje. El razonamiento era: si un animal modifica su conducta sobre la base de la experiencia, debe estar teniendo una experiencia y por lo tanto debe ser consciente. Al equiparar aprendizaje, experiencia y conciencia, esta escuela veía los procesos asociativos como el elemento esencial de la conciencia.
Los modelos de memoria asociativa en simulaciones computacionales de neural net pueden verse reforzados por la glorificación histórica del aprendizaje per se, y el aprendizaje es importante para el éxito biológico. Los correlatos estructurales del aprendizaje en el cerebro mamífero (discutidos en el Capítulo 4) parecen implicar el fortalecimiento de sinapsis específicas producido por una reorganización dinámica del citoesqueleto neuronal. Sin embargo, como observa Jaynes, aprendizaje y conciencia son problemas separados. Los sistemas de IA pueden aprender, pero claramente no son conscientes. La información puede ser percibida en la conciencia humana, existir en memoria de corto plazo, pero no almacenarse en memoria de largo plazo; por tanto no ocurre “aprendizaje”. Ciertos fármacos, incluidos algunos anestésicos y tranquilizantes, bloquean específicamente el almacenamiento y la recuperación de memoria de largo plazo en pacientes conscientes. Así, la conciencia constituye más que aprendizaje.
Conciencia como imposición metafísica
La evaluación del vínculo evolutivo, pero abismo intelectual, entre el hombre civilizado y los simios dio como resultado una visión metafísica: la conciencia no podría haber evolucionado meramente por selección natural a partir de ensamblajes de moléculas y células. Algo debe haber sido añadido desde fuera del sistema cerrado para dar cuenta de una entidad tan diferente como la conciencia humana. Esta escuela fue fundada por Alfred R. Wallace, co-descubridor de la teoría de la selección natural junto con Charles Darwin. Wallace creía que alguna fuerza metafísica había dirigido la evolución en tres puntos distintos: el comienzo de la vida, el comienzo de la conciencia y el comienzo de la cultura civilizada. Debido a que Wallace buscó evidencia de una fuerza metafísica entre vitalistas, espiritualistas y sesiones espiritistas, fue desacreditado y Darwin pasó a ser conocido como el descubridor de la evolución.
Algunos así llamados vitalistas y espiritualistas intentaron aplicar la física de partículas/ondas a lo que entonces se sabía sobre biología celular en su búsqueda de la conciencia. Como Wallace, fueron vilipendiados porque no tenían pruebas y el establishment científico sentía que explicar la conciencia por imposición metafísica estaba fuera del reino de la ciencia.
Muchos autores han propuesto teorías modernas de campo bioelectromagnético pertinentes a la embriología y la conciencia, pero siguen sin documentarse. Actividades dinámicas de nanoescala dentro de un sistema citoesquelético de información podrían proporcionar tal campo y aun así estar más allá de la detección por las tecnologías actuales. La nanotecnología futura puede permitir detectar estos campos, si existen. La teoría de la imposición metafísica, sus contrapartes “vitalistas” y de física de partículas/ondas siguen siendo especulación, pero es notable el grado en que irritan al establishment científico. Quizá sea porque difuminan la distinción entre ciencia, filosofía y religión. Esto puede presagiar una oposición violenta al desarrollo futuro de conciencia artificial.
La teoría del espectador indefenso
Una visión materialista del origen de la conciencia surgió en respuesta a la teoría de la imposición metafísica. La teoría del espectador indefenso sugiere que la vida es como un viaje en montaña rusa y que la conciencia no hace nada en absoluto, siendo un epifenómeno respecto de actividades biológicas importantes. Como espectador indefenso de acontecimientos cósmicos, la conciencia fue descrita como
el calor despedido por cables, colores puestos sobre la superficie de un mosaico, el movimiento de un tren que avanza sobre vías que han determinado su destino, la melodía que flota desde un arpa pero no puede pulsar sus cuerdas, la espuma que ruge desde un río que no puede cambiar su curso, la sombra de un peatón (Jaynes, 1976).
Renunciando al libre albedrío, T. H. Huxley resumió sombríamente: “somos autómatas conscientes”. (La connotación negativa de los autómatas como espectadores indefensos prevalece en el contexto de robots y máquinas; sin embargo, no debe confundirse con la noción de autómatas celulares, que pueden procesar información independientemente y computar de modo determinista, y que han sido comparados con procesos biológicos.) La teoría del espectador indefenso fue rechazada por William James, quien encontró inconcebible la noción de que la conciencia no tuviera nada que ver con el asunto al que tan fielmente atiende. Preguntó: “¿por qué la conciencia es más intensa cuando la acción es más vacilante, por qué somos menos conscientes cuando hacemos algo muy habitual?”.
Evolución emergente
En esta visión, la conciencia fue rescatada de la posición indigna de espectador indefenso al reconciliar la visión de imposición metafísica con propiedades colectivas emergentes. Una metáfora usada fue: así como la propiedad de la humedad no puede derivarse de las propiedades de los átomos de hidrógeno y oxígeno por sí solas, así la conciencia emergió en algún punto de la evolución de un modo no derivable de sus partes constituyentes. John Stewart Mill y otros sugirieron que, así como las propiedades de la materia emergieron de un precursor no especificado, las propiedades de compuestos complejos emergieron de la conjunción de compuestos más simples, y las propiedades distintivas de las cosas vivas emergieron de la conjunción de estos compuestos complejos, finalmente la conciencia emergió de estas cosas vivas (Jaynes, 1976). Así, se pensaba que un andamiaje de nuevas conjunciones daba lugar a relaciones antes no vistas que traían nuevos fenómenos emergentes. Al coalescer como algo genuinamente nuevo en una etapa crítica de la evolución, la conciencia asumió guía sobre el curso de los acontecimientos en el cerebro, y eficacia causal en la conducta corporal. En algunos aspectos esta visión es como el “truco indio de la cuerda”, en el que el faquir arroja una cuerda al aire, donde misteriosamente permanece; luego trepa por la cuerda, la recoge detrás de sí y desaparece. Los procesos evolutivos pueden haber proporcionado el desarrollo y la existencia de la conciencia, que entonces asumió control y guía de los sistemas biológicos. Las condiciones que conducen a la aparición de la conciencia pueden verse como una emergencia no lineal a partir de acontecimientos evolutivos.
La teoría de la evolución emergente liberó a biólogos y neurocientíficos de la carga de tener que basar todos sus resultados en propiedades físicas conocidas. La mente podía así tratarse en un sentido subjetivo, permitiendo que la psiquiatría y la teoría freudiana se volvieran aceptables sin una base concreta para conceptos como ego, id y superego. Entre las preguntas significativas que entonces surgieron estaban: ¿Cuándo emergió la conciencia? ¿Dónde? ¿En qué especie? ¿Y qué era? La dualidad cerebro/mente seguía existiendo y, de hecho, la mente era tratada sólo en generalidades amplias y nebulosas.
Conductismo
El problema de la conciencia podía resolverse ignorándolo. Los conductistas rastrearon sus raíces hasta los llamados epicúreos del siglo XVIII y, antes de eso, hasta los intentos de generalizar los tropismos vegetales a las acciones de animales y del hombre. Los conductistas explicaban todos los procesos cognitivos sobre la base de reflejos y respuestas condicionadas, comparables a través de una amplia variedad de organismos. Así, la conducta humana, sin importar cuán noble o furtiva, podía explicarse sobre la base de respuestas reflejas a situaciones dadas o necesidades de satisfacer funciones corporales. El conductismo se prestaba muy bien a la experimentación y fue una bendición para la credibilidad de los científicos que estudiaban la mente. Los laboratorios conductistas florecieron en universidades de todo el mundo; los laberintos de ratas y las respuestas condicionadas se volvieron los paradigmas operantes. Los conductistas pudieron atraer puestos universitarios, dinero de subvenciones, y los laboratorios conductistas dominaron la neurociencia durante un período significativo. La falla del conductismo es que es un método antes que una teoría y es patentemente hipócrita al negar o ignorar la conciencia. El conductismo, no obstante, purgó la psicología para situarla firmemente en la corriente principal de la ciencia académica.
Conciencia como actividades dinámicas del sistema activador reticular del cerebro
A medida que la tecnología se aceleraba, los teóricos del cerebro y de la mente finalmente volvieron al cerebro: la masa de tres libras y media de “tejido maravilloso” gris rosáceo. El matemático-filósofo René Descartes, quien había definido la dualidad cerebro/mente con su afirmación “cogito, ergo sum” (pienso, luego existo), eligió la glándula pineal del cerebro como sitio de la conciencia. Su elección se basaba en parte en el hecho de que la glándula pineal es una estructura única, de línea media. Así, a diferencia de casi todas las demás regiones cerebrales, no tenía duplicado, y por lo tanto se pensaba que era esencial. La propuesta de Descartes fue rápidamente refutada por neurofisiólogos, pero sí inició la búsqueda de un sitio único de la conciencia cerebral. Puesto que muchos investigadores veían el cerebro/mente como un arreglo jerárquico de procesamiento de información, la conclusión lógica era que en cierto sitio o región toda la información era reconocida y asimilada por el “Mind's Eye”, el sitio de la conciencia, la neurona Abuelo, o alguna manifestación de un ápice jerárquico. Recientemente, se ha encontrado que la mayor parte del cerebro está implicada en amplios archivos paralelos (“distribuidos”) de información, memoria y cognición. Históricamente, sin embargo, muchos investigadores se centraron en el sistema activador reticular (RAS) como sustrato neural de la conciencia.
El mantenimiento de la conciencia depende en medida importante del RAS, una maraña organizada de diminutas neuronas interconectadas que se extiende desde la parte superior de la médula espinal hacia arriba a través del tronco encefálico hasta el tálamo y el hipotálamo. El RAS integra colaterales de nervios sensoriales y motores, tiene líneas directas hacia media docena de áreas mayores de la corteza y probablemente todos los núcleos del tronco encefálico, y envía fibras hacia abajo por la médula espinal, donde influye sobre los sistemas sensorial y motor periféricos. Su función es sensibilizar o despertar neuronas y centros nerviosos selectivos y desensibilizar otros, de modo que puede regular la actividad y la vigilia del cerebro entero. Se piensa que fármacos de inducción anestésica como el tiopental sódico ejercen sus efectos en gran medida sobre el RAS. Lesiones destructivas de esta área también producen sueño permanente y coma, y estimular eléctricamente el RAS puede despertar a un animal dormido. También puede regular la actividad de la mayoría de las demás partes del cerebro mediante su propia excitabilidad eléctrica interna y neuroquímica.

Figure 16: Figura 2.2 Un grupo de neuronas asociadas, como células piramidales corticales cerebrales. Los largos axones y dendritas que se extienden desde los cuerpos celulares tienen un grosor del orden de unos pocos micrones (miles de nanómetros). Algunas conexiones sinápticas laterales son evidentes. Por Jamie Bowman Hameroff.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica el nivel de neuronas asociadas que inicia el zoom del capítulo hacia el citoesqueleto intracelular.
Aunque el RAS regula la vigilia, los enigmas de la conciencia siguen sin resolverse. Por ejemplo, las funciones de integración de alto nivel y asociativas implícitas en la cognición ocurren predominantemente en la corteza, estructuralmente más evolucionada en animales avanzados como el hombre. A la inversa, el RAS es una de las partes evolutivamente más antiguas del sistema nervioso y está relativamente poco cambiado cuando se compara entre animales inferiores y humanos. Jaynes observa que incluso si tuviéramos un diagrama completo del cableado, si conociéramos cada transmisor en el sistema nervioso, si entendiéramos todos los miles de millones o billones de sinapsis, todavía no podríamos discernir que un cerebro específico contenía una conciencia como la nuestra.
Conexionismo de neural net
Este movimiento ha sido fortalecido por los esfuerzos de científicos de la computación por imitar el cerebro construyendo sistemas de inteligencia artificial. Basados en la aproximación de neuronas corticales como unidades lineales de umbral, se ha construido y simulado en computadores un gran número de modelos de “neural net”. Un concepto clave para relacionar las dinámicas de redes neuronales con los hechos de la psicología es la asamblea celular introducida por Donald Hebb en 1949. En su visión, las asambleas celulares son circuitos reverberatorios especialmente organizados que constituyen elementos del pensamiento. Una neurona individual puede participar en muchas de ellas tal como un miembro individual de la sociedad participa en muchas asambleas sociales. Al permitir el fortalecimiento o refuerzo de conexiones usadas repetidamente (“plasticidad sináptica”), el reconocimiento, el aprendizaje y la resolución de problemas se manifiestan como umbrales rebajados de bucles específicos. Al asignar niveles de energía a diversos patrones (“paisajes”) dentro de la red, también pueden imponerse soluciones matemáticas. La “inteligencia” o las capacidades de un modelo dado de neural net dependen de la riqueza de sus interconexiones y de su feedback no lineal. La teoría conexionista de neural net puede ayudar a hacer avanzar sistemas robóticos y computacionales de inteligencia artificial, y puede proporcionar una comprensión significativa de la función cerebral. Estas teorías han proporcionado evidencia de que actividades dinámicas dentro de una red dada pueden al menos imitar algunos aspectos de las actividades cerebrales.
Las limitaciones de los primeros modelos de neural net son que se han basado en neuronas hipotéticas con enormes supuestos sobre la función neural. Cada neurona ha sido considerada una compuerta o interruptor on/off, y las sinapsis interneuronales vistas como interconexiones de peso variable. Modelos más recientes incorporan impulsos axonales, retardos sinápticos, funciones analógicas dendríticas y coherencia espacial. En su forma más elegante, las teorías de neural net proporcionan posibles representaciones de objetos mentales (“¿conciencia?”) en los patrones transitorios e instantáneos de actividad de la red. Se sugiere que el “acoplamiento cooperativo temporalmente estable” entre conjuntos de neuronas manifiesta pensamientos e imágenes, según el trabajo de Hebb, Kohonen, Edelman, Thom, von der Malsburg, Hopfield, Pellionisz, Llinas, Changeux y otros. Parte de su trabajo sugiere que el cerebro forma conjuntos de “prerrepresentaciones” de lo que se espera, a partir de las cuales el input sensorial induce la “selección” de su candidato de realidad. En este contexto, Changeux (1985) ha definido la conciencia como “una especie de sistema regulatorio global que trata con objetos mentales y computación usando esos objetos”. Los modelos de neural net y las memorias asociativas han hecho avanzar significativamente la comprensión de las capacidades neurales colectivas. Sus rasgos esenciales (procesadores paralelos con conexiones laterales variables) también pueden operar dentro de las neuronas en el citoesqueleto.

Figure 17: Figura 2.3 Vista más cercana de neuronas con citoesqueleto intraneuronal visible. Las dendritas, que ascienden desde abajo hacia los cuerpos celulares, tienen numerosas espinas dendríticas. Se representan varias sinapsis. Por Jamie Bowman Hameroff.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica la vista cercana de neuronas donde espinas dendríticas, sinapsis y citoesqueleto intraneuronal empiezan a hacerse visibles.
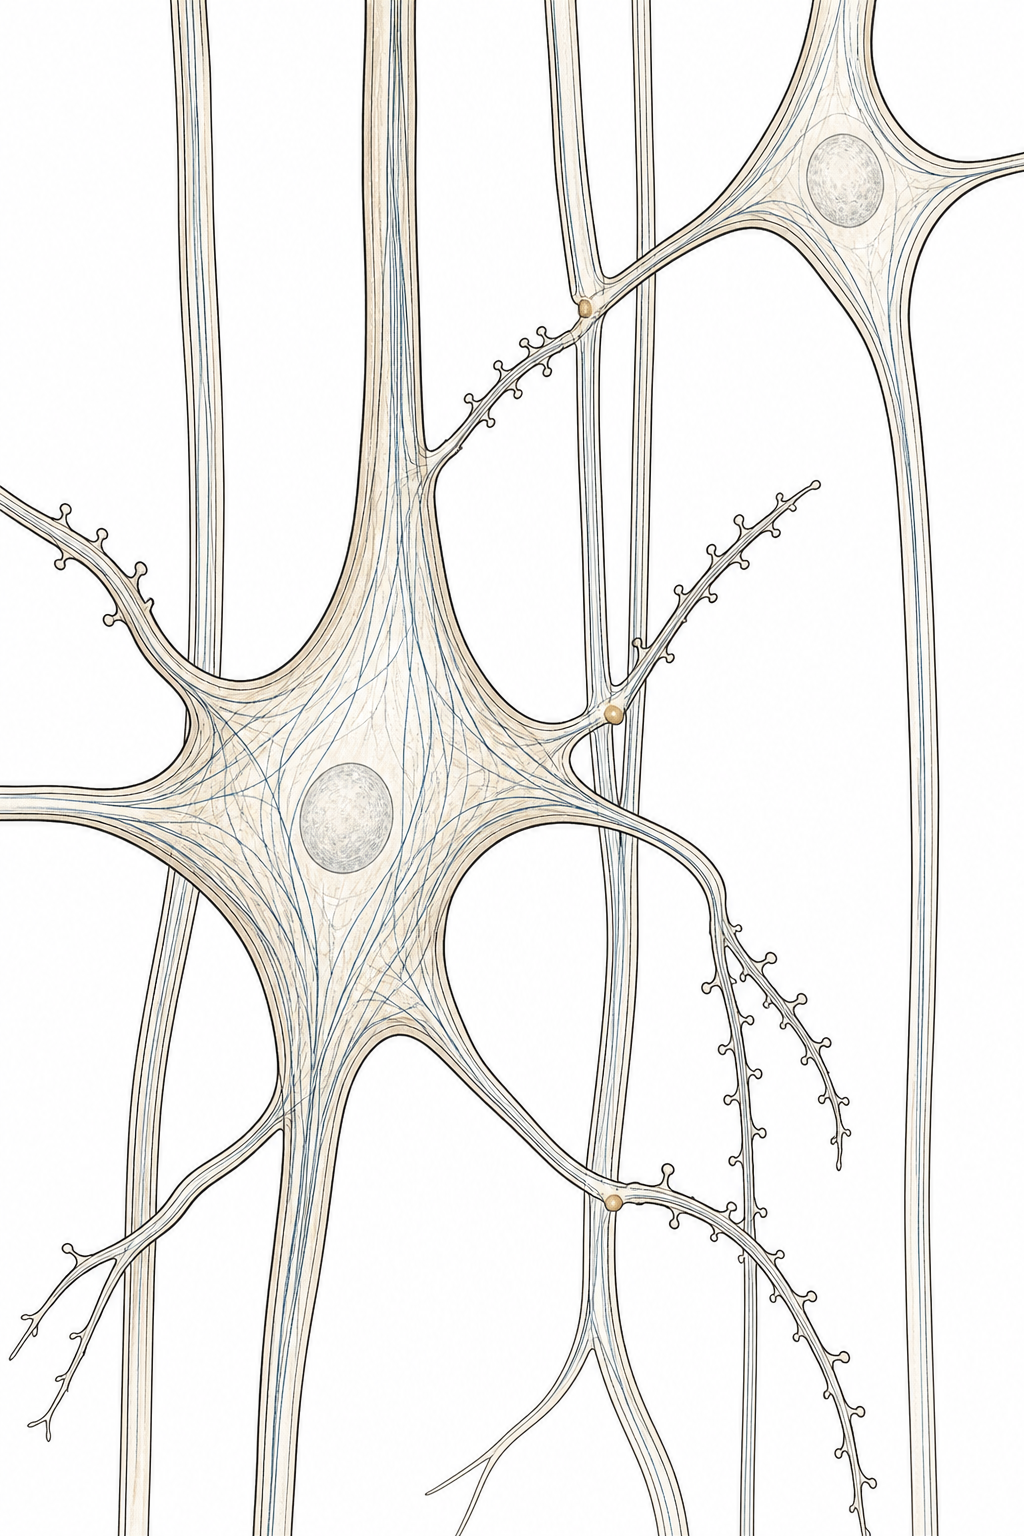
Holografía
Los hologramas pueden formarse a partir de patrones de interferencia generados por dos o más fuentes de ondas coherentes. Inicialmente una curiosidad de laboratorio, la holografía cobró importancia con el advenimiento de los láseres como fuentes de luz coherente a comienzos de la década de 1960. Un holograma registrado en una placa fotográfica parece ser mero galimatías hasta que se lo reilumina con una de las fuentes de ondas coherentes originales, y entonces proyecta imágenes espaciales tridimensionales. Dos propiedades de los hologramas han atraído interés y comparaciones con la conciencia y la imaginería mental. Una es que los hologramas tienen una enorme capacidad de almacenamiento de información, aunque son necesarias ondas coherentes de referencia para la recuperación. La segunda es que mucha información de un holograma dado está contenida en cualquier pequeña porción de él, aunque con menor resolución y menor relación señal/ruido. Recientemente se ha desarrollado holografía dinámica en tiempo real mediante el uso de cristales fotorefractivos (Gower, 1985).
Denis Gabor (1948), quien recibió el Premio Nobel de 1969 por su invención de la holografía, comentó:
desde hace algunos años esta propiedad de los hologramas ha atraído el interés de neurofisiólogos desconcertados por la dificultad de localizar el “engrama” en la memoria humana o animal. Como ahora es bien sabido, especialmente desde los famosos experimentos de Lashley, grandes partes del cerebro pueden a veces destruirse sin borrar un patrón aprendido de conducta. Esto ha llevado a especular que el cerebro puede contener un mecanismo holográfico.
Gabor era escéptico, sin embargo, respecto de la “existencia de ondas o resonadores afinados en el cerebro”. El manto de la teoría holográfica del cerebro fue tomado por Karl Pribram (1986), de Stanford, quien ha sostenido que el cerebro percibe información sensorial mediante el análisis de la interferencia de frecuencias de disparo neural. Lo que resulta dentro del cerebro, según Pribram, es un dominio holográfico en el que espacio y tiempo están plegados. En consecuencia, pueden lograrse transformaciones hacia dominios ordinarios desde cualquier parte de los registros codificados. Esta es la propiedad de distributedness de la información que caracteriza a los hologramas y a las funciones cerebrales. Los modelos holográficos del cerebro se han basado en interferencia de ondas coherentes al nivel de actividades neuronales, particularmente interacciones dendrítica-dendrítica. Ha faltado verificación de coherencia entre neuronas, y el holograma de nivel neural sigue siendo apenas un modelo matemático interesante. Sin embargo, el citoesqueleto dentro de las neuronas (y de todas las células) puede estar bien adecuado para mecanismos holográficos debido a su coherencia espacial (es decir, periodicidad de 8 nanómetros) y su potencial acoplamiento temporal (oscilaciones coherentes de nanosegundos, véase Capítulo 6). Así, el citoplasma intracelular que rodea al citoesqueleto puede ser el sustrato de la conciencia holográfica.
El concepto holográfico de la conciencia tiene implicaciones psicofísicas (Weber, 1975). El físico David Bohm ha señalado que nuestras percepciones de la realidad están condicionadas por lentes (ojos, cámaras, microscopios, etc.) que enfocan, objetivan, forman fronteras y particularizan. Los hologramas sin lentes son distribuidos, carecen de fronteras y son “holísticos”. Bohm sugiere que la realidad del universo es matemáticamente similar a un holograma (el dominio “implicado”), que trata con el dominio de frecuencia y propiedades de forma de onda fluctuante, en oposición a nuestras impresiones euclidiano-newtonianas condicionadas por lentes. Este enfoque parece consistente con visiones de la física moderna sobre la dualidad onda/partícula y el principio de incertidumbre. Experiencias reportadas por místicos, esquizofrénicos y experimentadores con drogas alucinógenas describen pérdida de fronteras espaciales y temporales, y una característica holográfica (“fractal”) del todo representado en cada parte. Puede discutirse si las percepciones místicas/esquizoides/inducidas por drogas son aberraciones o realidad clarificada, pero ciertas propiedades de los hologramas (distributedness de la información, vasta capacidad de almacenamiento, imaginería espacial tridimensional) tienen alguna semejanza con la conciencia.
Base citoesquelética de la conciencia

Figure 18: Figura 2.4 Interior de una neurona que muestra la red citoesquelética. Los cilindros rectos son microtúbulos, de 25 nanómetros de diámetro. Las interconexiones ramificadas son filamentos de la retícula microtrabecular. No se muestran neurofilamentos. Por Jamie Bowman Hameroff.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica la red citoesquelética neuronal de microtúbulos rectos y filamentos ramificados de la retícula microtrabecular.
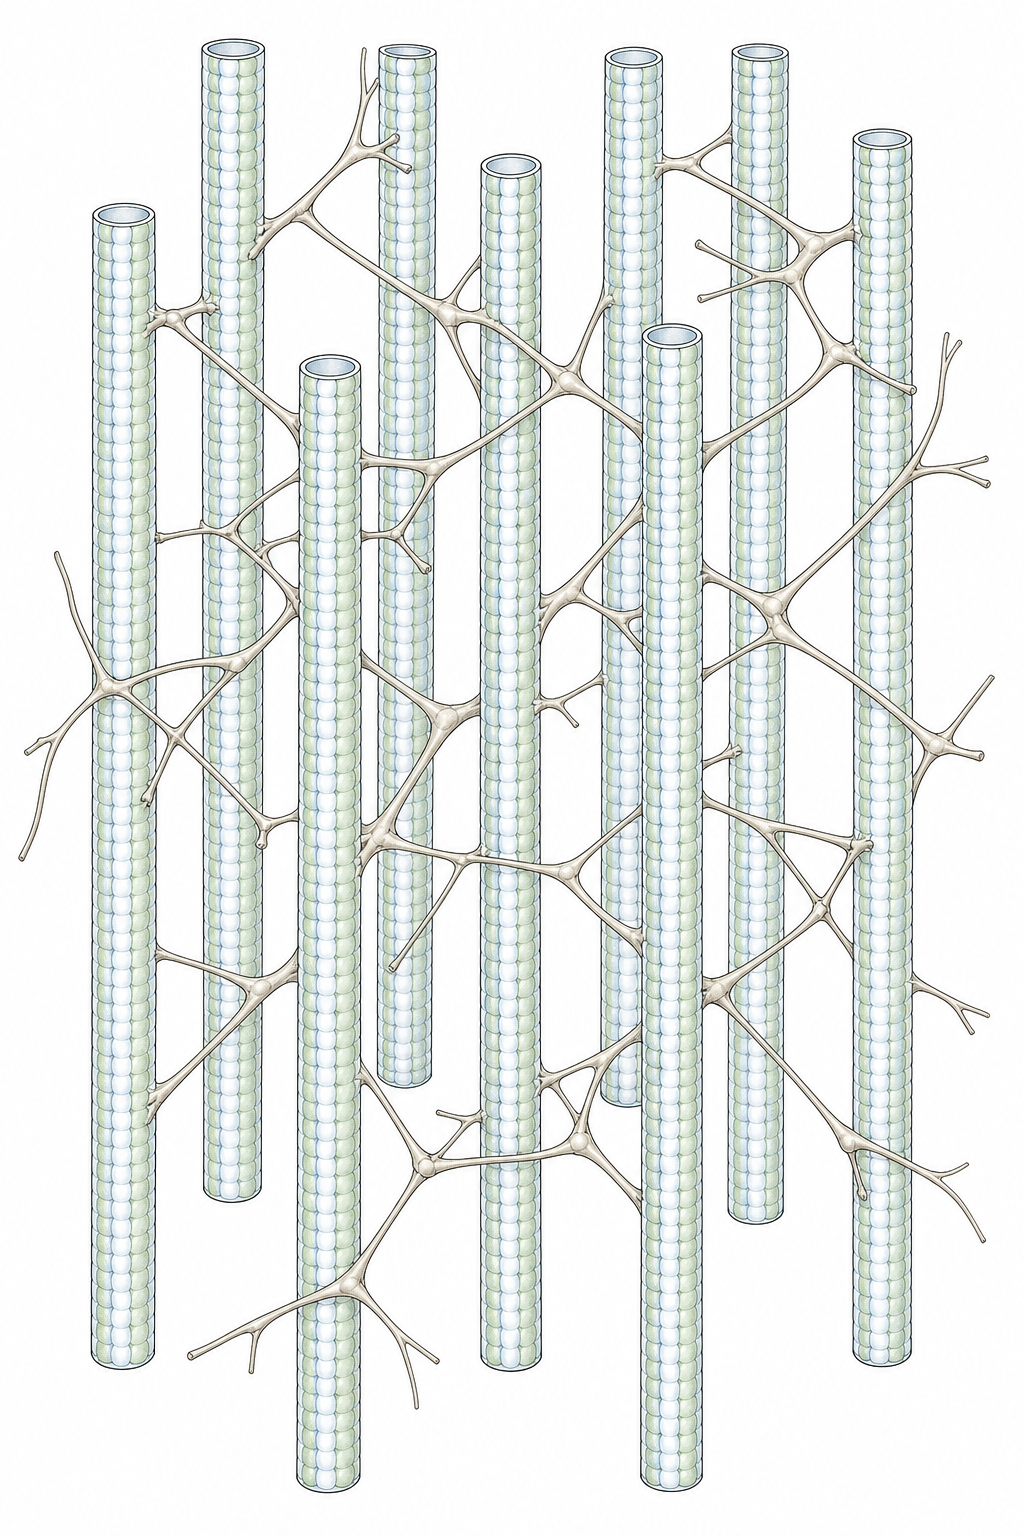
Los enfoques clásicos para comprender el cerebro/mente han supuesto una jerarquía de organización en la cual las sinapsis interneuronales son los sustratos indivisibles de transferencia de información (Figura 2.2). Sin embargo, las neuronas parecen demasiado complejas para ser simples interruptores o compuertas digitales y deben contener sistemas intrínsecos de procesamiento de información.
La neurona es descrita a menudo, y erróneamente, como un dispositivo simple que compara una suma ponderada de señales dendríticas “analógicas” de input con algún nivel umbral por encima del cual se transmite un pulso “digital” de output a lo largo de un axón. La estructura de las neuronas, en la que vastas arborizaciones de fibras dendríticas pueden aceptar unos 100.000 inputs sinápticos por neurona, indica un sistema muy complejo. Mientras algunos han visto el árbol dendrítico como un transmisor pasivo de impulsos, los datos sugieren potenciales de acción en dendritas grandes, ondas lentas de despolarización en otras, y la posibilidad de operaciones lógicas elementales en puntos de ramificación (Scott, 1977). Cada punto de ramificación dendrítica puede actuar como una compuerta lógica “OR” si un pulso en cualquiera de las ramas hijas puede suministrar carga suficiente para excitar un pulso en la rama madre; de otro modo puede actuar como un “AND” lógico. Las dendritas también pueden estar transmitiendo información presináptica a otras neuronas mediante potenciales graduados en sinapsis dendrodendríticas, un proceso llamado “whispering together” (Adey, 1977). La extensión y significación de vías de corriente “electrotónicas” entre glucoproteínas de membrana dendrítica, parches de membrana y espinas dendríticas son desconocidas, pero también podrían ser importantes. La suma neta de potenciales dendríticos en la corteza cerebral se registra en el cuero cabelludo como electroencefalografía (EEG). Del lado axonal o de output, las fibras madre no necesariamente excitan todas las hijas en cada punto de ramificación, y los puntos de ramificación de algunos axones contienen regiones donde pueden ocurrir filtrado de alta frecuencia, disparo alternante y otras formas de procesamiento de información (Scott, 1977). La conductancia de los puntos de ramificación puede estar influida por pequeños cambios en la geometría local y el acoplamiento eléctrico, proporcionando así regulación intraneural de la transmisión neural. La composición de membranas, la distribución espacial de glucoproteínas, canales iónicos, brechas de mielina (“nodos de Ranvier”) y agrupamiento de receptores también han sido vistos como codificación de información. Todos los modos potenciales de procesamiento neural de información (plasticidad sináptica, morfología de axón y dendrita, distribución de proteínas de membrana) dependen de las funciones citoesqueléticas dinámicas del transporte axoplásmico y el trofismo (Capítulo 5).
La complejidad de la neurona puede ser, de hecho, más parecida a un computador que a una sola compuerta. Pero ¿cuáles son las compuertas? ¿Cuál es el sustrato indivisible de la función neuronal? ¿Dónde está la neurona de la neurona? ¿Cómo realiza una ameba o un paramecio tareas complejas sin beneficio de una sinapsis, una neurona o un cerebro? Relativamente hace poco, con el perfeccionamiento de la fijación para microscopía electrónica, la inmunofluorescencia y otras técnicas, se ha revelado el interior de las células vivas. Se ha mostrado que posee redes complejas, altamente paralelas e interconectadas, de retículas de proteínas citoesqueléticas que se conectan con membranas y todos los demás componentes celulares y los regulan. La estructura de estos polímeros proteicos, sus actividades dinámicas y la falta de una comprensión alternativa clara de la cognición han llevado a la consideración teórica de actividades citoesqueléticas dinámicas como modos funcionales de procesamiento de información, tales como autómatas celulares y hologramas.
Esta visión citoesquelética, desarrollada en detalle más adelante en este libro, es consistente con muchas de las escuelas anteriores para comprender la conciencia. Desde la perspectiva citoesquelética, la conciencia es una propiedad del protoplasma (relacionada específicamente con proteínas citoesqueléticas), pero la variedad vertebrada de conciencia es un efecto colectivo no lineal, una evolución emergente, de aquello que existe en organismos simples. Un salto no lineal temprano en la evolución de la conciencia puede haber ocurrido con la introducción de centriolos y microtúbulos citoesqueléticos, y la transformación concomitante de células procarióticas en células eucarióticas hace alrededor de mil millones de años (Capítulo 3). Quizá, a medida que las redes citoesqueléticas y niveles organizacionales superiores como las redes neurales alcanzaron suficiente complejidad en los cerebros de mamíferos, propiedades colectivas emergieron no linealmente debido a cooperatividad, resonancia, transiciones de fase y fenómenos coherentes que permitieron autómatas, holografía o algún otro mecanismo de procesamiento de información. La teoría de redes neurales, el paralelismo, el conexionismo y el enfoque de IA sobre la conciencia han proporcionado esclarecimiento respecto del cerebro/mente. Muchos de estos enfoques pueden aplicarse al citoesqueleto, una subdimensión fractal de las redes neurales (Figuras 2.3 y 2.4). Niveles de conexiones de red neural como el sistema activador reticular o circuitos hipocampales pueden depender de dinámicas citoesqueléticas intracelulares para su regulación. Por ejemplo, el aprendizaje en teorías de neural net se basa en la sugerencia de Donald Hebb (1949) de que circuitos de neuronas conectadas desarrollan sinapsis más conductivas que facilitan la activación de ese circuito. Se piensa que el disparo a lo largo de patrones dados tras un estímulo específico representa un concepto, pensamiento o memoria-información específicos. Se piensa entonces que el aprendizaje ocurre por refuerzo o fortalecimiento de conexiones sinápticas, o formación de nuevas sinapsis a lo largo de patrones dados de neural net. La fuerza sináptica y la conexión neuronal dependen de reordenamientos citoesqueléticos intracelulares y transporte axoplásmico para mantener la eficacia sináptica y formar nuevas sinapsis y espinas dendríticas. Los ingredientes para sinapsis, proteínas de membrana, receptores, canales iónicos, enzimas y aparatos para mecanismos de liberación de neurotransmisores se sintetizan en cuerpos celulares y son transportados a las sinapsis a lo largo de longitudes relativamente grandes por transporte axoplásmico, un esfuerzo coordinado de microtúbulos citoesqueléticos. La modulación sináptica puede representar un mecanismo por el cual capas dinámicas separadas en una jerarquía de información se comunican y se “afinan” unas a otras.
Una docena de modelos de procesamiento citoesquelético de información han sido publicados y serán revisados en el Capítulo 8. Las actividades de nanoescala en retículas citoesqueléticas pueden ofrecer un puente futuro entre la conciencia y la nanotecnología emergente. Tan complejas y altamente conectadas como son las ramas neuronales (es decir, los árboles dendríticos), el citoesqueleto dentro de todas las neuronas puede ser un bosque dentro de esos árboles.
Origen y Evolución de la Vida
Sopa vs Barro, Gallina vs Huevo
¿Qué es la vida? Los organismos vivos tienen ciertas propiedades que son casi sinónimas del rasgo de estar vivo: organización, crecimiento, reproducción, actividades dinámicas con propósito y (al menos en organismos superiores) inteligencia y conciencia. Las formas de vida que hemos llegado a conocer se basan todas en el mismo tipo de planos genéticos (DNA, RNA) y bloques de construcción (proteínas), lo que sugiere una ascendencia común. Esa ascendencia, la emergencia de la vida, se ve generalmente como un reordenamiento de materia cósmica originalmente producida en el “Big Bang”, que se presume dio nacimiento al universo hace unos 14 mil millones de años. La emergencia molecular de la vida puede verse en el contexto de dos preguntas básicas relativas al lugar de origen (“soup vs mud”) y a causa y efecto moleculares (“chicken vs egg”).
En la década de 1920, el bioquímico ruso A. I. Oparin (1938) y el biólogo británico J. B. S. Haldane (1947) describieron su concepto de una “sopa primordial” de moléculas orgánicas existente en los océanos de la Tierra hace apenas 4 mil millones de años. Se pensaba que su sopa era producto de procesos geoquímicos y fuentes de energía que actuaban en una atmósfera de gases no oxidados como metano, amoníaco e hidrógeno, similar a lo que existe actualmente en Júpiter. Esta atmósfera primordial era la visión del eminente químico Harold Urey (1939), cuyo estudiante graduado Stanley L. Miller llevó a cabo un experimento clave a comienzos de la década de 1950. Miller creó un ambiente cerrado que contenía tal atmósfera primitiva e hizo pasar chispas eléctricas, simulando relámpagos, a través de ella. Detectó moléculas orgánicas relevantes para procesos vivos. Quince por ciento del carbono original del metano se encontró en moléculas que incluían cuatro aminoácidos, los bloques de construcción de las proteínas. Miller también encontró precursores de DNA y azúcares ribosa a partir de los cuales se forma RNA. Debido a que las moléculas más centrales de la vida son idénticas en todos los organismos de la Tierra, se ha considerado que la sopa primordial de Miller representa las condiciones de las que emergió la vida. Otras investigaciones han cuestionado la atmósfera rica en hidrógeno sobre la que Urey y Miller basaron su experimento, y otros trabajos han mostrado que al menos algunos precursores orgánicos de la vida pueden generarse en muchos tipos de atmósferas.
Hay otros candidatos para el sitio del origen de la vida. Se cree que las condiciones sobre las fumarolas térmicas descubiertas recientemente en el fondo oceánico son conducentes a la formación de compuestos orgánicos, lo que ha llevado a algunos a proponer estos lugares, antes que los estanques o pozas de marea imaginados tradicionalmente, como la cuna de la vida (“deep soup”). Las fumarolas térmicas son hogar de formas de vida extrañas y exóticas, como gusanos tubulares gigantes que prosperan bajo las grandes presiones del océano profundo. También se han encontrado comúnmente compuestos orgánicos en polvo interestelar, en cometas y en meteoritos que caen a la Tierra. Muchos creen que el suministro de precursores orgánicos de la vida fue aumentado desde el espacio, mientras pocos admiten creer que células primitivas fueron trasplantadas a la Tierra desde el espacio.
Una explicación alternativa ha sido propuesta por A. Graham Cairns-Smith (1982), de la Glasgow University, quien sugiere que organismos tempranos utilizaron plantillas de información preexistentes en forma de cristales de arcilla húmeda (“mud”). Los materiales inorgánicos cristalinos parecen tener muchas propiedades “tipo vida”, tales como la capacidad de almacenar y replicar información en forma de defectos cristalinos, dislocaciones, límites gemelos y sustituciones. Minerales de arcilla como la caolinita cristalizan a temperaturas ordinarias a partir de soluciones acuosas de roca común. Sus superficies catalíticas y su morfología compleja sugirieron a Cairns-Smith un ambiente no distinto del material vivo. Observó que los defectos en cristales podían suministrar configuraciones alternativas múltiples y estables que pueden almacenar y procesar información de modo muy parecido a los computadores modernos. Los defectos cristalinos que pueden moverse son muy similares a autómatas celulares primitivos, patrones dinámicos que ocurren en vecindarios de retícula capaces de computar. Cairns-Smith razonó que ciertas arcillas proliferaron con sus defectos replicantes (que representaban información) actuando como información genética primordial y resultando útiles en la alineación de aminoácidos y la síntesis de proteínas. A medida que se desarrolló una síntesis orgánica más eficiente, argumenta Cairns-Smith, la maquinaria de arcilla se volvió prescindible y fue descartada en favor de una nueva biotecnología: DNA y RNA.
Sea correcta o no la teoría de la arcilla de Cairns-Smith, demuestra la capacidad de almacenamiento de información en defectos cristalinos. Los cristales perfectamente ordenados, repetitivos y homogéneos, no tienen capacidad de almacenamiento de información, pero además son extremadamente raros o no existen en absoluto. Los cristales reales tienen estructuras de defecto superpuestas. Simplemente ser finito, tener una forma y tamaño, es un defecto, pero muchas otras características están casi invariablemente presentes. A menudo faltan unidades o son reemplazadas por otras, y secciones de la estructura cristalina pueden estar desalineadas de diversas maneras. Aunque tales rasgos pueden ser de escala muy pequeña, proporcionan a los cristales reales una gran capacidad potencial de información. Ciertas clases de cristales podrían tener estructuras de defecto que se replican a medida que el cristal crece, al tener la combinación correcta de características estructurales, patrones de crecimiento y propiedades de clivaje. Cairns-Smith (1982) concluye planteando un desafío: descubrir genes cristalinos de diversos materiales. Pregunta:
… Imagina hacer experimentos con cristales que pudieran evolucionar, poniéndoles problemas, aplicando presiones de selección, y viendo cómo se las arreglan. Sería algo interesante de hacer en cualquier caso, sea lo que sea aquello de lo que estén hechos los cristales. Pronto descubriríamos si las versiones minerales de sistemas replicantes son plausibles, aunque quizá perdiéramos interés en nuestros ancestros últimos una vez que tuviéramos en nuestras manos los primeros organismos de otro tipo: los primeros organismos de nuestra propia invención.
Las implicaciones de las ideas de Cairns-Smith incluyen la posibilidad de formas de vida alternativas a partir de estructuras cristalinas propagantes y la sugerencia de que DNA y RNA no son necesariamente los únicos portadores de información genética. Esto está en concierto con una desmitificación de la vida en general. En una reunión internacional sobre los orígenes de la vida (Eckholm, 1986), el Dr. Cyril Ponnamperuma, de la University of Maryland, sugirió que “la división entre vida y no vida es quizá artificial”. Ve lo animado y lo inanimado como situados en un continuo, tanto a lo largo del tiempo evolutivo como entre sistemas actualmente existentes. En tal escala, prions, proteinoides y algunos virus quedarían cerca del medio, como también podría quedar alguna protocélula antigua desconocida que se convirtió en el ancestro de la vida en la Tierra. Hablar de química avanzada antes que de creación divina seguramente perturbará a los fundamentalistas religiosos. Equiparar la vida con oscilaciones en cristales tiene una resonancia casi bíblica, y estrecha la brecha conceptual entre moléculas de vida y dispositivos tecnológicos.
Independientemente del ambiente preciso en el que emergieron moléculas relacionadas con la vida, otras preguntas mayores incluyen si los portadores de información genética, DNA y RNA, precedieron a las proteínas cuyas secuencias de aminoácidos determinan, o si las proteínas, incluidas enzimas y elementos estructurales aparentemente necesarios para la replicación genética, vinieron primero. Así se ha desarrollado un acertijo de gallina (DNA, RNA) vs huevo (proteína) respecto de los orígenes de la vida. Un flujo primario de información desde ácido nucleico a proteína (gallina antes que huevo) fue un “dogma central” en biología molecular. Fox y Dose (1972) desafiaron esta convicción proponiendo un continuo evolutivo alternativo desde el comienzo del cosmos material hasta los primeros organismos. En su visión de “huevo antes que gallina”, la secuencia de organización de la vida fue desde gases interestelares, a aminoácidos, a polímeros, a microsistemas organizados. Como evidencia citan la autoorganización de aminoácidos y proteínas en microesferas “proteinoides” que pueden establecer enlaces de comunicación y realizar otras funciones “tipo vida”. Evidencia para una visión de “gallina antes que huevo” ha sido encontrada por el químico Leslie Orgel y colegas (Schwarz y Orgel, 1985), del Salk Institute en La Jolla, California. Recientemente descubrieron una molécula tipo DNA, de 15 nucleótidos de longitud, que se había formado espontáneamente a partir de compuestos de carbono mucho más simples y zinc, en ausencia de células vivas o enzimas proteicas. Otros trabajos han sugerido que el RNA puede funcionar enzimáticamente para facilitar reacciones, y el grueso de los hallazgos recientes se inclina hacia la primacía de los ácidos nucleicos.
Manfred Eigen (1971) ve este problema de causa/efecto como un “bucle cerrado” cuyo punto de partida original carece de importancia. Lo importante, en la visión de Eigen, es cómo la autoorganización molecular ocurre a partir de acontecimientos aleatorios y feedback que conducen a organización funcional macroscópica, autorreproducción, selección y evolución: “hiperciclos”. Eventualmente, según Eigen, tales sistemas pueden escapar de los prerrequisitos de su origen y cambiar el ambiente en su propio beneficio.
Una visión de organización primaria de ácidos nucleicos (gallina) en un ambiente acuoso primordial (sopa) es resumida y elaborada en los escritos de la bióloga Lynn Margulis y Dorion Sagan (1986). Ven como lógicos los hechos de que RNA y DNA se formaron espontáneamente en los mares someros de la Tierra temprana y también se volvieron capaces de autorreplicar copias perfectas de sí mismos. Comparan las moléculas de RNA con la mitad de una cremallera abierta. Con los ingredientes complementarios adecuados, la mitad faltante se forma usando el RNA existente como plantilla.
Margulis y Sagan (1986) señalan:
Una molécula de RNA puede hacer más que copiarse a sí misma. La secuencia de sus nucleótidos también puede servir como señal para que una hebra vecina de RNA una los aminoácidos de su ambiente, formando así una porción de una proteína que a su vez acelerará el emparejamiento de otras moléculas de RNA, produciendo más RNA, más fragmentos tipo proteína, y así sucesivamente.
Esto sugiere que en un nivel crítico de la evolución ocurrieron aceleraciones no lineales debido al nivel de interrelaciones asociativas entre moléculas en evolución. Esto puede ayudar a explicar cómo los sistemas biológicos pueden producir “orden a partir del caos”, y así violar aparentemente la segunda ley de la termodinámica, que afirma que los sistemas ordenados deben disiparse hacia el desorden.
Margulis y Sagan describen el siguiente escenario para el desarrollo de la vida en la Tierra. La formación de RNA en la sopa primordial condujo a la evolución de DNA de doble hebra eones más tarde. Esto, a su vez, permitió toda la variedad de la vida, tal como se manifiesta en la riqueza de estructuras y funciones de proteínas y otras macromoléculas. La capacidad de supervivencia fue aumentada por el encierro de moléculas dinámicas dentro de membranas, aparentemente formadas cuando hidrocarburos fosfolipídicos se alinearon y, debido a que estaban cargados en un extremo, formaron gotas esféricas que secuestraron biomoléculas. Con el advenimiento de canales iónicos y otras proteínas de membrana llegaron voltajes regulatorios y un microcosmos discreto: la célula bacteriana “procariótica”.
Salto Simbiótico de Procarionte a Eucarionte
La proliferación de procariontes literalmente cambió la faz de la Tierra. Según el escenario Margulis/Sagan, equipos colectivos de bacterias reunieron nutrientes, eliminaron toxinas, reciclaron materia orgánica convirtiendo desechos en alimento y estabilizaron la atmósfera. Las bacterias procarióticas produjeron amoníaco, que ajustó la acidez de océanos y lagunas y aumentó la temperatura de la Tierra mediante un efecto “invernadero” similar al del dióxido de carbono (que deja entrar más radiación solar de la que puede escapar). Hace unos dos mil millones de años, bacterias fotosintéticas púrpuras y verdes comenzaron a usar agua para fabricar compuestos ricos en hidrógeno, desprendiendo oxígeno, que era venenoso para la mayoría de los procariontes (“anaeróbicos”). Esta “crisis de desechos tóxicos” presionó adaptaciones que incluyeron sistemas de motilidad para escapar de la exposición al oxígeno, detoxificación y, finalmente, respiración de oxígeno. Las bacterias procarióticas “aeróbicas” tempranas resultantes florecieron durante unos pocos cientos de millones de años, pero a medida que aumentó el oxígeno atmosférico, bacterias aeróbicas y anaeróbicas engendraron una nueva forma de vida mejorada: la célula eucariótica o nucleada.
Todos somos eucariontes, como lo son todos los animales y casi todas las plantas que existen hoy en la Tierra. Las células eucarióticas difieren de sus ancestros procarióticos por tener interiores celulares organizados (citoplasma o protoplasma), incluidos compartimentos separados encerrados por membranas (núcleos) que contienen, entre otras estructuras, cromosomas: bibliotecas de DNA y sus proteínas de soporte. El citoplasma eucariótico usualmente contiene mitocondrias, fábricas de energía química que utilizan oxígeno para generar ATP y alimentar actividades celulares (respiración) y, dentro de plantas verdes, cloroplastos que convierten energía solar en alimentos de energía química (fotosíntesis).
Las células eucarióticas son enormemente sofisticadas comparadas con sus predecesoras procarióticas. Los registros fósiles indican que los eucariontes aparecieron abruptamente, sin forma intermedia aparente que indicara mutación genética progresiva desde procariontes. Esta brecha evolutiva, que separa bacterias y algas verdeazules de todas las demás formas celulares de vida actuales, es una dicotomía misteriosa, un abismo evolutivo. Explicaciones basadas en simbiosis, una asociación mutuamente beneficiosa, fueron propuestas por Marishkowski en 1905 y Wallen en 1922 (Margulis y Sagan, 1986). Propusieron que las células eucarióticas resultaron de una asociación simbiótica de dos tipos de procariontes: una “monera” primitiva y una bacteria más avanzada de tipo cocci. Se piensa que la ingestión de los cocci por la monera llevó a una simbiosis estable en la que los cocci más evolucionados se convirtieron en el material nuclear y la monera se convirtió en el citoplasma. Marishkowski propuso otros ejemplos de simbiosis, como la emergencia de plantas verdes a partir de una unión de células nucleadas incoloras y diminutas cyanophycae que se convirtieron en cloroplastos especializados para fotosíntesis. Esta unión propuesta es similar a la simbiosis de algas verdes y hongos para formar liquen, y a la de cloroplastos en metazoos como la hidra. Wallen propuso que las mitocondrias se originaron como bacterias simbióticas que entraron, y quedaron indispensablemente atrincheradas, dentro de células animales.
Una teoría “endosimbiótica” más completa del origen eucarionte fue introducida por la bióloga Lynn Sagan (más tarde Lynn Margulis) en 1967. Sugirió que células procarióticas (específicamente bacterias heterotróficas anaeróbicas) atravesaron una serie de tres acontecimientos simbióticos que condujeron a los primeros eucariontes. Durante el período de adaptación a la respiración de oxígeno, un heterótrofo aeróbico fue engullido por un heterótrofo anaeróbico. Las bacterias aeróbicas se convirtieron en el ancestro de las mitocondrias, convirtiendo oxígeno en ATP, y permanecieron como orgánulo intracelular. El siguiente acontecimiento simbiótico, según Sagan-Margulis, fue la ingestión de una espiroqueta, un organismo móvil que viajaba por el batido tipo látigo de su flagelo, compuesto de proteínas citoesqueléticas. Se piensa que la ingestión de flagelos y sus anclajes intracelulares, los cuerpos basales, llevó a cilios, centriolos y microtúbulos: elementos estructurales y organizacionales citoesqueléticos que trajeron las capacidades de movimiento celular, organización citoplasmática y (aparentemente) procesamiento de información (Figura 3.1). Múltiples cilios unidos a membranas celulares y extendidos hacia afuera permitieron a organismos unicelulares como el paramecio nadar por su medio acuoso, expandiendo enormemente su capacidad de encontrar alimento, evitar depredadores y aumentar sus horizontes. En otros organismos estacionarios, los cilios podían hacer fluir el medio ambiental más allá del organismo, logrando los mismos resultados. Dentro del citoplasma, estructuras citoesqueléticas como centriolos, cuerpos basales y microtúbulos organizaron, orientaron y transportaron orgánulos y materiales. El citoesqueleto eucariótico asumió funciones afines al andamiaje mecánico, la retícula transportadora y el propio sistema nervioso de la célula.
Cuerpos basales, cilios, flagelos y centriolos son ensamblajes de microtúbulos, ellos mismos ensamblajes cilíndricos complejos de subunidades proteicas, y son ubicuos en toda la biología eucariótica. En estos orgánulos, nueve pares o tripletes de microtúbulos están dispuestos en un supercilindro, que puede tener un par adicional de microtúbulos en su centro (arreglos 9+2 o 9+0, Figura 3.2). La implicación de estas estructuras en casi todas las instancias de actividades celulares dinámicas (mitosis, crecimiento y diferenciación, locomoción, ingestión de alimento o fagocitosis, movimiento citoplasmático, etc.) aceleró enormemente las capacidades de las células eucarióticas. Utilizando la energía química del ATP mitocondrial, estos elementos citoesqueléticos parecen haber proporcionado no sólo estructura y motilidad estables, sino también un sofisticado sistema de procesamiento de información “tipo computador”.
La tecnología microbiana eucariótica era tan diferente de la bacteria básica como un computador mainframe de un ábaco. Los eucariontes florecieron, evolucionaron y resolvieron problemas ambientales mezclándose y fusionándose. Formando nuevos colectivos, eventualmente encontraron su camino del agua a la tierra y el aire, y se ramificaron en las innumerables formas de vida vegetal y animal que desde entonces han poblado la biosfera. El cerebro y el sistema nervioso humanos son innovaciones recientes; Homo sapiens aparentemente apareció hace unos 50 mil años.
La teoría endosimbiótica puede explicar el salto no lineal en la evolución que ocurrió con el advenimiento de los eucariontes, pero tiene sus detractores. Por ejemplo, Hyman Hartman (1975), del MIT, ha señalado que, aunque se acepta que mitocondrias y cloroplastos se originaron como células procarióticas de vida libre, hay alguna cuestión respecto del pedigrí de cuerpos basales y centriolos. Sagan-Margulis (1967) había afirmado que:
al entrar en un huésped, tal simbionte puede perder desde ninguna hasta todas sus capacidades sintéticas excepto la capacidad de replicar su propio DNA y sintetizar RNA complementario desde ese DNA: la sine qua non de cualquier organismo.

Figure 19: Figura 3.1 Ingestión simbiótica de espiroquetas móviles por una bacteria primitiva, resultando en las primeras células “eucarióticas”. Las proteínas filamentosas de la espiroqueta se convirtieron, según Sagan-Margulis (1967), en los centriolos y el citoesqueleto que proporcionan movimiento y organización del citoplasma. Por Paul Jablonka.
Esto implica que orgánulos simbióticos que se originaron como organismos separados deben retener sus capacidades de síntesis de nucleótidos. Se ha mostrado que mitocondrias y cloroplastos tienen su propio DNA; sin embargo, no se ha aislado DNA con centriolos o cuerpos basales. De hecho, estos orgánulos citoesqueléticos se autorreplican rutinariamente sin DNA, aunque Hartman ha mostrado que puede existir RNA en asociación con cuerpos basales. Quizá el DNA centriolar se perdió en la baraja evolutiva, o el citoesqueleto posee otros mecanismos de transferencia de información. Evidencia de información citoplasmática transmitida a lo largo de cientos de generaciones de paramecio sin implicación genética (Aufderheide, Frankel y Williams, 1977) sugiere que los centriolos y otros elementos citoesqueléticos pueden tener cierto grado de independencia (Figura 5.27). El procesamiento de información en tiempo real está en la provincia citoesquelética, de modo que la replicación de DNA puede no ser la “sine qua non” de los organismos vivos. Actividades dinámicas y colectivas de centriolos, microtúbulos y otras proteínas citoesqueléticas pueden manifestar inteligencia biológica y estar más cerca de la esencia de la vida que los mecanismos genéticos. Las formas de vida ambiguas pueden ser particularmente importantes en el futuro.
Centriolos-Los Secuestradores de la Evolución
La aparición de centriolos y estructuras citoesqueléticas relacionadas como organizadores móviles e inteligentes en la escena evolutiva hace mil millones de años puede haber sido la clave del éxito de los eucariontes, y el inicio del linaje que ha conducido a la conciencia humana.
Los centriolos son el aparato específico dentro de las células vivas que dispara y guía reorganizaciones mayores de la estructura celular que ocurren durante la mitosis, el crecimiento y la diferenciación. Los centriolos están compuestos de dos cilindros similares (cada uno de los cuales también se denomina “centriolo”) cuyos diámetros son de 0,2 micrones (200 nanómetros). Cada cilindro posee una simetría radial de nueve partes y consiste en tripletes de microtúbulos fusionados longitudinalmente. Una estructura filamentosa tipo rueda de carro (o “pinwheel”) parece mantener unido el extremo de cada cilindro centriolar. Un centriolo engendra otro por replicación que ocurre en ángulo recto respecto del eje largo de los cilindros. Esta replicación perpendicular, que inicia la mitosis, es contraintuitiva comparada con la replicación longitudinal o la fisión, y sigue siendo uno de los misterios que rodean a los centriolos.

Figure 20: Figura 3.2 Los centriolos son cilindros de 9 tripletes de microtúbulos, mostrados aquí en sección transversal. Pares de centriolos se asocian en ángulos rectos entre sí, mostrados aquí abajo. Por Paul Jablonka.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica la simetría centriolar de nueve tripletes y la asociación en ángulo recto de los pares de centriolos.
Los centriolos residen dentro de una porción del citoplasma conocida como centrosoma (o centrosfera), adyacente a la membrana externa del núcleo celular. Al disparar y guiar la polimerización de microtúbulos y otros elementos citoesqueléticos, los centriolos organizan temporal y espacialmente el citoplasma (“centro organizador de microtúbulos”-MTOC, Figura 3.3 y Capítulo 5). Por ejemplo, centriolos y microtúbulos (husos mitóticos) separan cromosomas y establecen la arquitectura de las células hijas (Figura 3.4), rasgos que tuvieron enormes ventajas para acelerar la evolución eucariótica.

Figure 21: Figura 3.3 Centriolos del polo del huso en célula mitótica renal PtK2. Centriolos perpendiculares se ven en el denso material pericentriolar desde el cual irradian MT, punteados por inmunooro. Una red filamentosa se ve a la derecha y por encima del centro organizador de microtúbulos (MTOC). Escala: 3,3 milímetros en la micrografía = 100 nanómetros. Con permiso de Geuens, Gundersen, Nuydens, Cornelissen, Bulinski y DeBrabander (1986), cortesía de Marc DeBrabander y Janssen Pharmaceutica Research Laboratories.
Cuerpos basales tipo centriolo, actuando cerca de membranas celulares, inducen la formación de cilios como apéndices que sobresalen de las superficies externas de las células. Los cilios tienen estructuras virtualmente idénticas a los centriolos, salvo que están cubiertos por membrana y, en el caso de los cilios motores, tienen un par central de microtúbulos e interconexiones contráctiles que actúan para doblar y ondear cilios en una variedad de funciones de control. Estas van desde la propulsión del paramecio unicelular hasta la expulsión de polvo y partículas de las vías respiratorias humanas. De modo similar, los cilios sensoriales permiten comunicaciones con ambientes externos a través de un amplio rango biológico, desde organismos unicelulares hasta los oídos internos de seres humanos, transduciendo sonido mecánico hacia el sistema nervioso. Generaciones de cilios móviles y sensoriales permitieron a células eucarióticas como el paramecio deambular por cantidades más vastas de su medio acuoso, sirviendo para maximizar su suministro de alimento así como percibir información sensorial de su ambiente. Esto dio como resultado actividades complejas que implican lógica y procesamiento de información, lo que llevó a científicos del siglo XIX a atribuir conciencia rudimentaria a tales organismos.
Otro misterio que rodea a los centriolos es su dominio de la orientación en el espacio y su capacidad de transmitir esa información a otras estructuras citoesqueléticas. Se ha sugerido que la navegación y la sensación de gravedad representan una función “giroscópica” de los centriolos (Bornens, 1976), que también han sido descritos como detectores de señales perfectamente diseñados (Albrecht-Buehler, 1981). Estos y otros modelos de procesamiento de información e inteligencia en centriolos y el citoesqueleto serán cubiertos en el Capítulo 8.
Relevante para la evolución es que los centriolos proporcionaron a los eucariontes un sofisticado sistema celular de procesamiento de información y comunicación. Las consecuencias de tal sistema sobre la biología son quizá análogas al impacto potencial de los computadores sobre las sociedades. El misterio y la elegancia estética de los centriolos, así como el hecho de que en ciertos casos parezcan superfluos, han creado un aura enigmática alrededor de este maravilloso orgánulo. En el prólogo al libro de Wheatley (1982), Centrioles: The Central Enigma in Cell Biology, el bioquímico B. R. Brinkley afirma:
Antes de que el telescopio de Galileo desafiara sus visiones, los eruditos antiguos argumentaban que la Tierra era el centro del universo alrededor del cual giraba el sol. Tras su descubrimiento por microscopistas de luz, a los centriolos se les dio un papel igualmente permanente en el citoplasma de las células eucarióticas. Se pensaba que este diminuto orgánulo era el centro del universo citoplasmático … .
La belleza estructural de los centriolos, su geometría insondable, su conducta intrincada, su dominio navegacional y su aparente origen como invasor del reino procariótico añaden a su mística. Escribiendo en el libro de Wheatley, Patelca afirma: “los biólogos han sido acechados desde hace mucho por la posibilidad de que se les haya escapado la significación primaria de los centriolos”.
Una conclusión posible es que los centriolos son nano-motores inteligentes que “saltaron del barco” desde una especie previa para ampliar simbióticamente su estilo de vida. Al hacerlo, han cooptado la biología y, en concierto con otras estructuras citoesqueléticas dinámicas, han empujado la inteligencia hasta su etapa actual de evolución. El próximo acontecimiento simbiótico puede tener implicaciones igualmente profundas. Las tecnologías de nanoescala pueden interactuar directamente con la inteligencia biomolecular.

Figure 22: Figura 3.4 Centriolos en división celular. 1) Sección transversal de un triplete de microtúbulos centriolares. 2) Sección transversal de un centriolo con 9 tripletes de microtúbulos, 9 cuerpos satélite y estructura central “pinwheel”. 3) Pares de centriolos cerca del núcleo celular, antes de la división celular. 4) Los pares de centriolos se han separado y migrado; cromosomas listos para separación. 5) Husos mitóticos, compuestos de microtúbulos, se han formado desde centros centriolares (MTOCs), con cromosomas en el medio. 6) Microtúbulos anclados en centriolo separando un par de cromosomas duplicados. Por Paul Jablonka.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica la secuencia de seis pasos desde los tripletes centriolares hasta la separación por husos mitóticos.
Evolución Biotecnológica-La Próxima Simbiosis
Hay varias indicaciones de que la evolución de la tecnología forzará otra aceleración no lineal en la evolución biológica, que ha lidiado con crisis como el oxígeno tóxico hace dos mil millones de años, ha utilizado nuevas fuentes de energía, habitado nuevos ambientes, desarrollado nuevas formas y engendrado tecnologías que ellas mismas han evolucionado. Muchos observadores se han alarmado por la evolución tecnológica. El científico/satírico del siglo XIX Samuel Butler (Margulis y Sagan, 1986) consideró la posibilidad de que las máquinas suprimieran a los humanos y asumieran la supremacía de la Tierra:
el hombre se volverá para la máquina lo que el caballo y el perro son para el hombre: podrá continuar existiendo, incluso mejorar, y probablemente estará mejor en un estado de domesticación bajo el gobierno benéfico de las máquinas que en su presente estado salvaje. Después de todo, tratamos a nuestros caballos, perros, ganado y ovejas, en conjunto, con gran bondad. Les damos aquello que la experiencia nos enseña que es mejor para ellos. De igual modo, es razonable suponer que las máquinas nos tratarán bondadosamente, pues su existencia depende tanto de la nuestra como la nuestra depende de animales inferiores.
Por supuesto, nos comemos a algunos animales y experimentamos con otros. Parece que cada nueva tecnología es un arma de doble filo, con capacidad para el bien o para el mal: el escenario básico de “Frankenstein”. Pero depender de nueva tecnología es probablemente necesario e inevitable para la adaptación y la supervivencia en un mundo cada vez más abarrotado y progresivamente tóxico. Margulis y Sagan (1986) citan al teórico de sistemas generales John Platt, estudioso de la aceleración evolutiva, quien cree que la vida en la Tierra puede estar acercándose a un punto de inflexión enormemente importante. La computación y comunicación global que emergió después de la Segunda Guerra Mundial se ha convertido, según Platt, en “un sistema nervioso social colectivo para gestionar millones de nuestros problemas, y su importancia para el futuro de largo alcance puede ser tan grande como la del primer sistema nervioso de aprendizaje”.
Nuevas tecnologías pueden ayudar a la biología a lidiar directamente con crisis actuales y futuras. En su libro Microcosmos: 4 Billion Years of Evolution from our Microbial Ancestors, Margulis y Sagan (1986) describen algunas posibilidades sorprendentes. Consideran que el hombre actual es poco más que comunidades de bacterias, manifestaciones modulares de la célula nucleada, y que nuevas formas de vida “artificiales” emergerán de la fusión simbiótica de biología y tecnología. Ven que esto ocurre a lo largo de tres líneas: biotecnología genética, robótica computacional y biochips:
… un día cercano, trajes enteros de genes, proteínas y hormonas podrán ensamblarse en el laboratorio para crear nuevas especies de microbios. A medida que ganemos una mayor comprensión de la embriología y la inmunología, seguramente clonaremos células en organismos progresivamente más grandes y complejos, destinados a intervenir en nuestra propia evolución.
A medida que la robótica computacional evolucione hacia lo pequeño para convertirse en nanotecnología, interacciones colectivas con la biotecnología genética y los biochips naturales podrían precipitar la siguiente transición de fase evolutiva: mind/tech symbiosis.
Margulis y Sagan (1986):
Robótica y bacteria [pueden llegar a estar] … finalmente unidas en biochips basados no en silicio, sino en compuestos orgánicos complejos. … Moléculas manufacturadas intercambiarían energía con su ambiente … para convertirla en información [y] abrir puertas a la “cybersymbiosis”, la mezcla de partes humanas y manufacturadas en nuevas formas de vida, y finalmente permitirnos rehacer nuestra especie. … Homo sapiens podría sobrevivir sólo como un órgano rudimentario, un sistema nervioso delicadamente disecado unido a brazos plásticos impulsados electrónicamente.
Hans Moravec (1986), del Robotics Laboratory de Carnegie-Mellon University y autor de Mind Children, tiene su propia visión de la simbiosis mente/tecnología, en la que cirujanos cerebrales robóticos ultraprecisos transfieren el software de la conciencia humana a un supercomputador. Describe ventajas de existir en silicio o arseniuro de galio con cuerpos robóticos. Estas incluyen ser impermeable a ambientes severos, transporte electrónico a través de galaxias e inmunidad a la enfermedad. Max Headroom es una personalidad televisiva hipotética cuya conciencia existe únicamente dentro de computadores y equipo electrónico. El contenido mental de un motociclista con lesión craneal (“Max. Headroom 2.3m” fue su última imagen antes del choque) es de algún modo transferido, recogido y existe activamente en circuitería electrónica. Algo así como una figura de culto en video, Max Headroom puede ser el primero de una raza de entidades tecnocognitivas.
La mezcla de mente y tecnología sería un truco elegante, cargado de beneficios y peligros potenciales. Ciertamente dependería de una comprensión del mecanismo de la conciencia que actualmente no está disponible. Quizá nanosensores disponibles de manera inminente podrán interactuar dinámicamente al nivel de retículas de proteínas citoesqueléticas dentro de todas las células vivas. Esta interacción puede conducir a la siguiente simbiosis, una que tendrá efectos sobre la biología tan profundos como los tuvo la conversión de procarionte a eucarionte. Si nanotecnología y biología se vuelven simbióticas, la conciencia puede ser una mercancía.
Del Cerebro al Citoesqueleto
Evolución del Sistema Nervioso
El filósofo alemán Nietzsche escribió:
“Entonces debes ser un científico cuyo campo es la sanguijuela”, dijo Zaratustra, “¡y debes perseguir a la sanguijuela hasta su último fondo rocoso, hombre concienzudo!”. “¡Oh Zaratustra!”, respondió el hombre, “eso sería una enormidad, ¿cómo podría asumir una tarea tan enorme? Aquello de lo que soy maestro y conocedor es el cerebro de la sanguijuela: ese es mi campo y es todo un universo”.
El cerebro humano parece haber evolucionado a partir de predecesores de lombrices de tierra y sanguijuelas, cuyo desarrollo fue un hito en la evolución eucariótica (Somjen, 1983). Los sistemas nerviosos de estos organismos probablemente consistían en una cadena de grumos organizados de células nerviosas llamados ganglios, o quizá dos cadenas de ganglios emparejados simétricamente, con un ganglio cefálico agrandado en el extremo frontal. La polaridad y el eje preferido de orientación que definían estos sistemas nerviosos básicos están relacionados con la polaridad y la asimetría dentro de sus células nerviosas componentes, o neuronas, cada una un “universo” propio. Como se describirá en los próximos capítulos, la orientación y la asimetría neuronales están determinadas por el citoesqueleto que, de muchas maneras, es el sistema nervioso dentro de todas las células superiores de plantas y animales.
A lo largo de la evolución, el ganglio cefálico de la sanguijuela primitiva comenzó a dominar otros miembros de su cadena, realizando “decisiones” que requerían cooperación del ensamblaje entero. Cada ganglio segmentario aún retenía cierta autonomía de acción y, al ser cortada en pedazos, tal criatura puede haber sido capaz de regenerar organismos individuales completamente nuevos como sus descendientes actuales. Pares de cadenas ganglionares de sanguijuela se parecen a las cadenas ganglionares simpáticas de los vertebrados, que retienen una medida de autonomía. Por ejemplo, el sistema nervioso autónomo humano puede regular eficientemente corazón, intestino, vasos sanguíneos y otros sistemas de órganos incluso cuando está desconectado del cerebro y la médula espinal.
La transición de un organismo segmentado a un sistema nervioso como el nuestro probablemente ocurrió debido a la fusión de las cadenas pares de ganglios en una estructura tubular de tejido nervioso. Raíces nerviosas pares emergieron entonces del sistema central primitivo, similares a las raíces espinales de los vertebrados actuales. Estas raíces conectaron el sistema nervioso central con los órganos sensoriales periféricos, músculos y glándulas. Eventualmente, el extremo cefálico del tubo neural aumentó en tamaño e importancia hasta dominar la mayoría de las funciones del sistema nervioso, un proceso denominado “encefalización” por el famoso neurólogo inglés Hughlings Jackson (Somjen, 1983). La encefalización, que ocurrió a lo largo de eones y puede estar continuando actualmente dentro del hombre, refleja el desarrollo de una organización jerárquica en un sistema por lo demás paralelo y distribuido. Los componentes cerebrales más altamente organizados y capaces de funciones más complejas son generalmente más nuevos en la escala evolutiva (por ejemplo, “neocorteza”). Una jerarquía colectiva de sistemas paralelos de procesamiento de información basada en organización funcional que incluye elementos subcelulares (citoesqueleto y sustancia fundamental citoplasmática) se muestra en la Tabla 4.1.
Organización del Sistema Nervioso
Las actividades cerebrales han sido estudiadas intensivamente por diversas disciplinas durante muchos años. En las secciones siguientes se presentan elementos esenciales de la organización cerebral. El propósito es proporcionar un trasfondo suficientemente comprehensivo para justificar la afirmación de que el citoesqueleto es un medio subyacente de procesamiento de información dentro de las neuronas cerebrales.
Arquitectura
El sistema nervioso central (SNC) de los vertebrados, incluido el hombre, está organizado en una jerarquía ascendente de estructuras paralelas: médula espinal, tronco encefálico y cerebro. El sistema nervioso periférico consiste en nervios periféricos y los ganglios del sistema nervioso autónomo. Los cerebros humanos contienen alrededor de cien mil millones de neuronas. La evolución ha causado un desplazamiento “cefálico” de importancia, tamaño relativo y control hacia los centros superiores o neocorteza, que en el hombre es más grande y más compleja que en otros mamíferos. Hay similitudes generalizadas en estructura, composición y funcionamiento de los sistemas nerviosos centrales en todos los vertebrados. Las neuronas dentro de todos los sistemas nerviosos están ellas mismas organizadas por sus citoesqueletos componentes.
| Cerebro/Mente |
|---|
| Sistemas, Homúnculos, “Centros” |
| Redes Sinápticas Neurales, Carteles, Módulos |
| |
| Neurona |
| Citoesqueleto |
| Sustancia Fundamental Citoplasmática (“Infoplasma”) |
Dos tipos de células componen el tejido nervioso: neuronas y células satélite. En el sistema nervioso central, las células satélite se llaman neuroglía y, en la periferia, células de Schwann. Estas células satélite envuelven capas y capas de vaina de mielina alrededor de las neuronas, formando lo que generalmente se considera meramente aislamiento que aumenta la velocidad de las señales propagantes.
Las partes de una neurona son las dendritas, el cuerpo celular (o pericarion) y el axón, que también se denomina “fibra” nerviosa. Las dendritas y el cuerpo celular generalmente reciben señales entrantes y el cuerpo celular las transforma en una señal saliente transportada por el axón (Figura 4.1). La “materia blanca” del sistema nervioso central consiste en tractos de fibras y sus células gliales mielinizantes, mientras que la “materia gris” se refiere a grumos de cuerpos celulares y dendritas conocidos como “núcleos”. Un diagrama esquemático de la organización funcional cerebral se muestra en la Figura 4.2.
Señalización Neuronal
Las señales que transmiten información entre células nerviosas consisten en cambios de potencial eléctrico producidos por corrientes iónicas que fluyen a través de sus membranas superficiales. Las corrientes son transportadas por iones como sodio, potasio, calcio y cloruro, y ocurren debido a la apertura y cierre de canales iónicos de proteínas de membrana. El nervio mantiene una polarización eléctrica a través de su membrana bombeando activamente iones de sodio hacia fuera e iones de potasio hacia dentro. Así, cuando los canales iónicos se abren (por cambio de voltaje, neurotransmisores, fármacos, etc.), sodio y potasio fluyen rápidamente a través del canal, creando una despolarización. Dependiendo de la ubicación espacial y la secuencia temporal de los canales, la activación puede resultar en ondas usadas como señales.
Las neuronas llevan sólo dos tipos obvios de señales: potenciales localizados “gated”, que son más antiguos en la escala evolutiva y analógicos, y potenciales de acción propagantes “todo o nada”, que son más nuevos y digitales. Los potenciales gated localizados pueden extenderse sólo uno o dos milímetros, son atenuados y distorsionados por resistividad local, y son esenciales donde se requiere suma espacial y temporal (“integración”). Esto ocurre en terminaciones nerviosas sensoriales (“potenciales receptores”), uniones sinápticas neuronales donde se integran potenciales excitatorios e inhibitorios (“potenciales sinápticos”), y como ondas lentas que surgen como despolarizaciones rítmicas en dendritas. Los potenciales gated en dendritas también se integran en el cuerpo celular para iniciar (cuando corresponde) potenciales de acción propagantes a lo largo de axones. Un papel primario para los potenciales dendríticos localizados en el procesamiento de información de neuronas cerebrales ha sido enfatizado por varios autores, incluidos Alwyn Scott (1977) y Ross Adey (1966), quienes consideran que los potenciales dendríticos de onda lenta permiten a las neuronas cerebrales “whisper together”.
Los potenciales de acción (“impulsos nerviosos”) se propagan como ondas de despolarización de membrana a lo largo de axones. Ocurren debido a la apertura secuencial de canales de membrana que permiten la difusión pasiva de iones. Brechas en la mielinización (“nodos de Ranvier”) a lo largo de axones contienen abundantes canales iónicos, de modo que los impulsos se propagan rápidamente entre nodos, donde son ralentizados y susceptibles a modulación (“conducción saltatoria”). Con esta excepción, los potenciales de acción ocurren sobre una base “todo o nada” (es decir, digital) a partir de la integración de input dendrítico (es decir, analógico) en la región del cuerpo celular de la neurona. La frecuencia de disparo está relacionada con la intensidad del estímulo; un nervio sensorial que responde al estiramiento muscular dispara a una tasa proporcional al grado de estiramiento. La velocidad del potencial de acción es fija para axones dados, dependiente del diámetro axonal, el grado de mielinización y la distribución de canales iónicos. Velocidades típicas de potencial de acción de unos 100 metros por segundo permiten comunicación efectiva dentro de sistemas nerviosos relativamente grandes.
Sinapsis Interneuronales
Los potenciales de acción y axones terminan en conexiones sinápticas con otras neuronas o células efectoras como músculo o glándula. Las porciones finales de ramificación de axones son delgadas, con terminales sinápticas hinchadas conocidas como boutons. Algunos axones pueden tener múltiples boutons, cada uno formando una sinapsis. Generalmente, las sinapsis se forman entre la terminal axónica y la dendrita de otra neurona, aunque también ocurren sinapsis axón-cuerpo celular, axón-axón y dendrita-dendrita. Muchas, incluso la mayoría, de las sinapsis dendríticas ocurren en “espinas” dendríticas, protuberancias dendríticas nudosas.
Se han reconocido dos modos de señalización sináptica: eléctrica y química. En sinapsis eléctricas, corrientes generadas por un impulso de la terminal nerviosa presináptica se extienden directamente a la neurona siguiente a través de una vía de baja resistencia (que puede ser redes de filamentos proteicos extracelulares conocidas como “synapsin”). Los sitios de comunicación eléctrica entre células han sido identificados en micrografías electrónicas como uniones gap, en las que el espacio intercelular usual de varias decenas de nanómetros se reduce a unos dos nanómetros. Parece haber una enorme cantidad de sinapsis eléctricas en el cerebro mamífero (estimada hasta en 80 por ciento de todas las sinapsis), pero debido a dificultades de aislamiento, caracterización e incapacidad para estudiarlas por manipulación farmacológica, su significación sigue siendo desconocida. Las sinapsis químicas han sido extensamente estudiadas.
En sinapsis químicas, la brecha fluida entre membranas presináptica y postsináptica impide una extensión directa de corriente y la falta de una conexión eléctrica entre neuronas. El bouton sináptico contiene grandes cantidades de vesículas esféricas (de unos 50 nanómetros de diámetro) que contienen moléculas neurotransmisoras. Acetilcolina, norepinefrina, serotonina, dopamina, ácido gamma-aminobutírico (GABA) y diversos péptidos y aminas han sido identificados como neurotransmisores. Algunos son excitatorios, mientras que otros (por ejemplo, GABA) son inhibitorios.

Figure 23: Figura 4.1 Organización neuronal: 1) Dendritas ramificadas (arriba) entrando en el cuerpo celular o pericarion; axones ramificados saliendo abajo. 2) Axones formando sinapsis sobre dendritas y cuerpo celular. 3) Axón rodeado por 100 capas de mielina que aumentan la velocidad de conducción; las estructuras visibles en el axón incluyen mitocondrias, vesículas neurotransmisoras y microtúbulos. 4) Hendidura sináptica; vesículas neurotransmisoras (arriba a la derecha) se fusionan con la membrana al ser liberadas. Por Paul Jablonka.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica los cuatro niveles de organización neuronal, desde dendritas y axones hasta mielina y hendidura sináptica.

Figure 24: Figura 4.2 Diagrama esquemático de componentes funcionales cerebrales. Por Paul Jablonka.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; redibuja el mapa textual de componentes funcionales cerebrales con jerarquía más clara y etiquetas fuente preservadas.
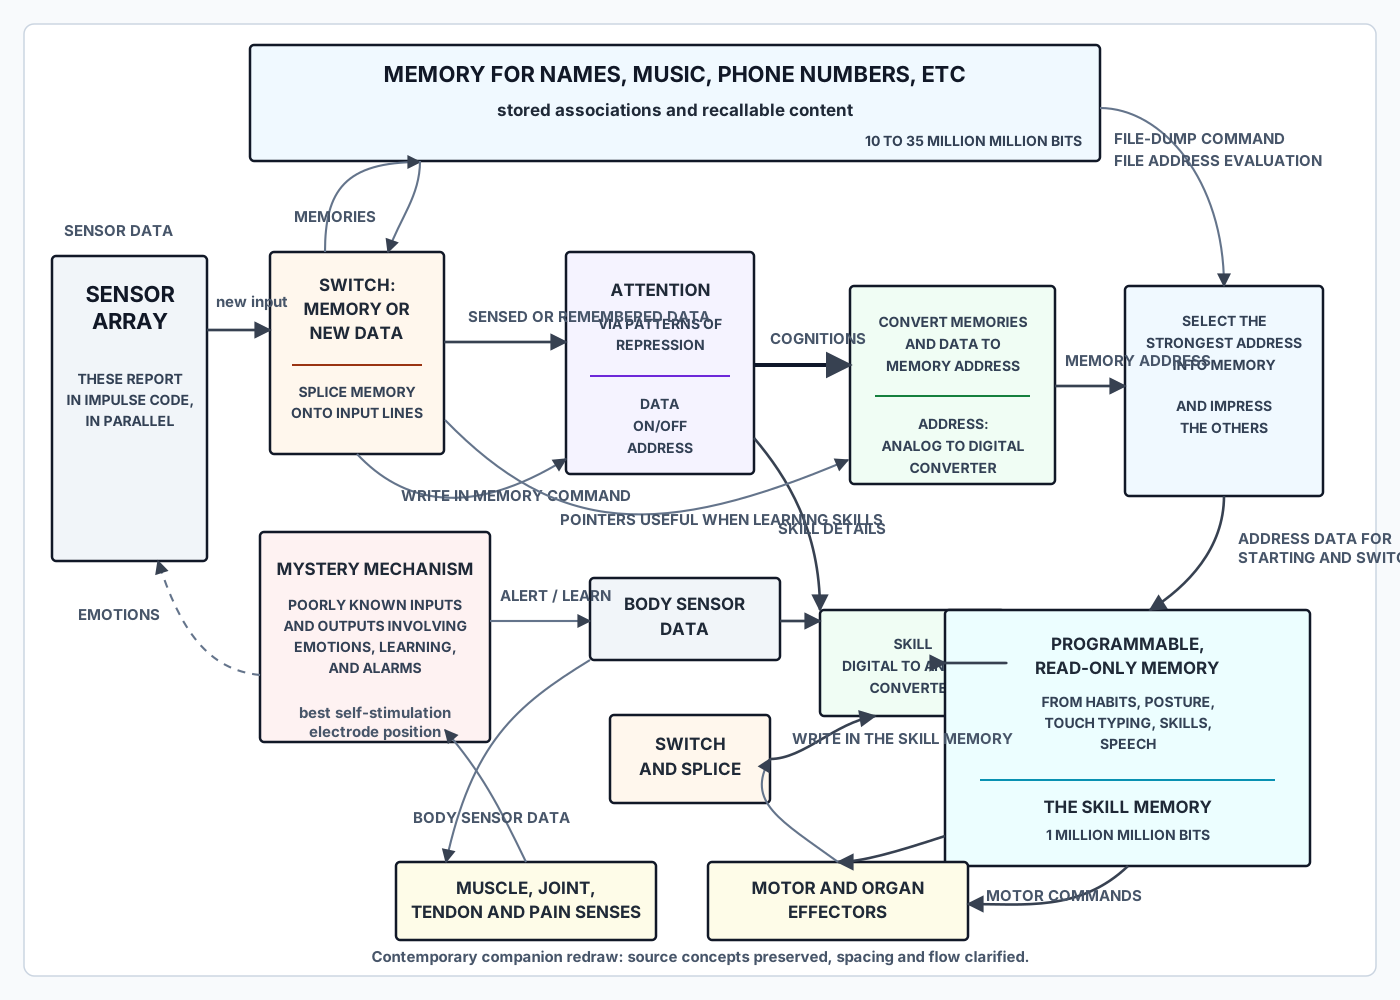
La secuencia de acontecimientos que libera moléculas neurotransmisoras desde terminaciones nerviosas es notablemente uniforme en todas las sinapsis. Las moléculas transmisoras se almacenan dentro de terminales nerviosas presinápticas en pequeñas vesículas que son análogas a los gránulos secretorios de células glandulares. La cantidad de neurotransmisor en una vesícula se considera un “quantum” y, en sinapsis neuromusculares, cada quantum consiste en mil a cinco mil moléculas de acetilcolina. Cada potencial de acción que alcanza la terminal presináptica libera un número de quanta vesiculares que va desde unos pocos hasta varios cientos. El mecanismo de acoplamiento entre el potencial de acción y la liberación vesicular implica tanto calcio como el citoesqueleto. Cuando un impulso de potencial de acción llega a la terminal nerviosa presináptica, iones de calcio entran al citoplasma a través de la membrana por canales gated por voltaje. En terminales nerviosas presinápticas, la corriente iónica entrante del potencial de acción es llevada así parcialmente por sodio y parcialmente por calcio. El calcio libre en el citoplasma de la terminal causa que las vesículas se fusionen con la membrana superficial y expulsen sus contenidos. Los mecanismos por los cuales el calcio dispara la liberación de vesículas desde la terminal presináptica no se comprenden claramente; sin embargo, proteínas citoesqueléticas, incluidas actina contráctil, miosina y otras proteínas filamentosas, están implicadas. El calcio media actividades contráctiles dinámicas en flagelos y músculo esquelético, y parece disparar la expulsión citoesquelética de neurotransmisores desde terminales nerviosas.
Después de la liberación, las moléculas transmisoras difunden a través de la hendidura sináptica y se unen reversiblemente con los receptores de la membrana postsináptica. La distancia entre las dos membranas es suficientemente pequeña como para que la difusión tome alrededor de un milisegundo, un acontecimiento relativamente lento comparado con la conmutación en semiconductores. Siempre que una molécula transmisora se une a la membrana postsináptica, causa un pequeño cambio de voltaje en la membrana postsináptica llamado potencial miniatura de placa terminal, que puede ser excitatorio o inhibitorio dependiendo de la molécula neurotransmisora y el receptor postsináptico. En estado de reposo hay liberaciones espontáneas de vesículas individuales que causan una tasa de fondo de potenciales miniatura de placa terminal que están por debajo del umbral para la despolarización de la célula postsináptica.
La unión específica de moléculas neurotransmisoras a receptores postsinápticos cambia la permeabilidad de membrana a iones específicos, que producen potenciales receptores localizados, excitatorios o inhibitorios. La membrana postsináptica “integra” los potenciales receptores locales espacial y temporalmente de modo que, cuando se excede un “umbral”, las señales se propagan en la dendrita, cuerpo celular o axón postsinápticos.
Que la respuesta sea excitatoria o inhibitoria depende de la especie de canal iónico que lleva la corriente sináptica. Por ejemplo, en la unión neuromuscular, la acetilcolina aumenta la permeabilidad postsináptica a sodio y potasio, conduciendo a un potencial de acción excitatorio y despolarizante. Los canales postsinápticos activados por acetilcolina se abren durante uno a dos milisegundos y permiten una entrada neta de unos 2 x 10⁴ iones. Otros canales sinápticos permanecen abiertos durante decenas de milisegundos y pasan 105 iones o más. Aun otros receptores postsinápticos se acoplan directamente a cambios citoesqueléticos y no implican conductancia iónica en absoluto. En sinapsis inhibitorias, GABA puede aumentar la permeabilidad al ion cloruro, alejando el potencial de membrana del umbral. La inhibición también puede ocurrir presinápticamente, en cuyo caso se impide la liberación de neurotransmisor excitatorio. Al combinar múltiples inputs, las sinapsis “computan” para determinar su output.
Las células nerviosas se influyen entre sí ya sea por excitación, produciendo impulsos en otra célula, o por inhibición, tendiendo a impedir que surjan impulsos en una célula adyacente. También ocurre inhibición lateral; la actividad en un grupo de axones activos inhibe el disparo en fibras cercanas, un aparente mecanismo de agudización o enfoque. Una neurona recibe muchos inputs excitatorios e inhibitorios de otras células (convergencia) y a su vez abastece a muchas otras (divergencia). El proceso por el cual las neuronas combinan todas sus señales entrantes se conoce como integración. Así, cada célula debe integrar una multitud de inputs sinápticos (hasta 200.000 sinapsis por neurona) para determinar su propio output. Niveles adicionales de procesamiento en puntos de ramificación dendrítica, espinas dendríticas, nodos activos entre vainas de mielina y cambios en eficacia sináptica ilustran la complejidad al nivel de neuronas individuales. Antes que un simple interruptor, cada neurona es más parecida a un computador. El citoesqueleto intraneuronal es el sistema nervioso dentro del sistema nervioso.
Representación de la Información
El enigma central en la ciencia del cerebro es cómo se representa la información dentro de los sistemas nerviosos. Comprender los mecanismos de las vastas capacidades de almacenamiento, recuperación y procesamiento de información dentro del cerebro sería de enorme beneficio no sólo para la neurociencia, sino también para trabajadores en ciencia de la computación, particularmente inteligencia artificial (IA). De hecho, se han dado grandes pasos en IA utilizando “buenas conjeturas” sobre el procesamiento cerebral de información y, a la inversa, la comprensión de funciones y capacidades cerebrales está siendo impulsada por teoría relacionada con IA, incluidas neural nets y conexionismo paralelo.
La suposición subyacente sobre la función cerebral y la base comparativa para la IA considera redes paralelas de unidades conectadas en las que las neuronas y sus conexiones sinápticas son los sustratos fundamentales. Sin embargo, las neuronas individuales realizan una cantidad significativa de procesamiento analógico tanto al nivel de dendritas como dentro de su citoesqueleto. Por ejemplo, la modificación del umbral de transmisión sináptica, la piedra angular de los modelos de aprendizaje de neural net, está regulada por el citoesqueleto y sus conexiones citoplasmáticas. Ver las neuronas como sustratos digitales fundamentales (interruptores o compuertas en un computador) puede estar pasando por alto una dimensión importante disponible para la organización de la inteligencia.
Integración-Centros Reflejos de Sherrington
El procesamiento de los patrones dinámicos excitatorios e inhibitorios de actividad dentro de masas de neuronas (“centros reflejos”) fue descrito como “integración” por el célebre neurocientífico C. S. Sherrington durante la década de 1930.
El cerebro se enfrenta continuamente a la tarea de tomar decisiones sobre la base de información acerca del mundo exterior proporcionada por órganos terminales sensoriales e información almacenada en memoria. En cualquier instante dado, señales entrantes desde fuentes diversas en la periferia excitan el cerebro. Los mecanismos por los cuales los diversos tipos de información son tomados en cuenta y se les asignan prioridades se llaman “integración”, que se lleva a cabo en todos los niveles de organización cerebral. En un ejemplo global de integración, un animal confrontado con peligro integra input hacia una decisión binaria de output: “fight or flight”. Nuestros centros superiores reciben continuamente información que surge en una gran variedad de fuentes en la superficie del cuerpo y en los órganos internos. Una neurona central típica enfrenta una tarea similar a la del cerebro como totalidad. Es el objetivo de señales excitatorias e inhibitorias convergentes que transforma (“integra”) en sus propios impulsos. Los principios generales de integración fueron descubiertos a comienzos del siglo XX por Sherrington (1933, 1947), quien registró tensión en músculo esquelético mediante el reflejo de estiramiento antes de que fuera posible el registro eléctrico desde células individuales. La integración parece ocurrir en todos los niveles de los sistemas nerviosos y entre diversos tipos de organismos: crustáceos, peces y mamíferos. Sherrington propuso y citó evidencia de integración por grupos de neuronas que denominó masas neurales o centros reflejos, y sugirió que se correlacionaban con “núcleos” anatómicamente identificables.
Un núcleo es una región compacta de materia gris, de arquitectura neural relativamente homogénea y fronteras reconocibles, que contiene una alta densidad de cuerpos celulares neuronales y sinapsis. (La materia blanca connota una alta densidad de fibras axonales tipo cable.) Un centro reflejo es un ensamblaje de neuronas que realiza una función específica. Un núcleo es puramente morfológico o estructural, mientras que un centro es funcional. Los núcleos pueden coincidir con centros, pero a menudo no lo hacen (Freeman, 1972).
El concepto de centros neurales puede transmitir una impresión errónea de función anatómicamente específica, pero permanece como referencia vestigial al concepto de Sherrington del sistema nervioso y ahora denota grupos de neuronas cuya destrucción conduce a pérdida de función específica y/o cuya estimulación evoca cierta función conductual o fisiológica. Las funciones cerebrales claramente no están divididas entre centros del mismo modo en que el trabajo de una gran organización o fábrica se divide entre sus diversas oficinas y talleres. La relación entre regiones anatómicas dedicadas a funciones específicas y la distribución de información a lo ancho del cerebro es desconcertante y complicada. Por ejemplo, el centro de saciedad está ubicado en el hipotálamo; si esta región general se estimula en un animal que está comiendo, el animal dejará de comer como si hubiera tenido suficiente. Si la misma estructura se destruye, el animal come demasiado y engorda como si nunca estuviera satisfecho. Así, claramente las neuronas del centro de saciedad están esencialmente relacionadas con evocar la sensación de plenitud o saciedad. La conducta alimentaria, sin embargo, está regulada por un rango mucho más amplio de muchos circuitos neuronales en diferentes regiones. El centro de saciedad integra múltiples inputs hacia un output binario: comer o no comer. Representaciones corporales como homúnculos motores y sensoriales y otra evidencia concreta de localización anatómica de función neuronal pueden integrar también amplias fuentes de input distribuido hacia representaciones de sensación y acción anatómicas. Hardware anatómico como centros de saciedad y homúnculos motores y sensoriales parecen ser adaptaciones evolutivas necesarias para sistemas nerviosos más grandes y complejos.
Sherrington es una figura clave en la historia de la neurociencia. Su concepto de integración por centros reflejos iluminó posibles modos de procesamiento de información por estructuras neurales. Ahora se aprecia que las funciones de transferencia de información ocurren en todos los niveles de organización del sistema nervioso e incluyen funciones usadas ahora en computadores, tales como suma, disparadores en rampa, conversión analógico/digital y lógica.
Lógica de Pulsos
La señalización eléctrica en el sistema nervioso fue, según la leyenda, descubierta durante una demostración dada por Luigi Galvani a una clase a fines del siglo XVIII. Mientras el maestro Galvani disecaba una rana, un generador electrostático (que descargaba chispas eléctricas) estaba siendo manipulado por un estudiante aburrido. Cada vez que sacaba una chispa, la pierna de la rana (sostenida con pinzas por Galvani) se contraía. Galvani siguió esta curiosa observación y publicó su tratado sobre Animal Electricity en 1791. Galvani consideraba que la electricidad animal era el material de la excitación de los nervios y de la contracción de los músculos. Sólo después de su muerte sus seguidores demostraron que los animales efectivamente generaban sus propias corrientes eléctricas, antes que meramente responder a electricidad aplicada (Freeman, 1972).
El desarrollo del microelectrodo y de equipo electrónico de soporte apropiado después de 1940 reveló que impulsos nerviosos eléctricos discretos eran ubicuos en todo el sistema nervioso central y periférico. Las técnicas electrofisiológicas proporcionaron un enfoque para problemas complejos al registrar la actividad de células individuales o pequeños grupos de células. Por ejemplo, los acontecimientos neurales implicados en la percepción del tacto fueron estudiados registrando señales de una neurona que termina en la piel y cuya función, sensación táctil, era inequívoca. Estas señales consisten en breves pulsos eléctricos de alrededor de 0,1 voltios de amplitud, duran cerca de un milisegundo y se mueven a lo largo de nervios a una velocidad de hasta 120 metros por segundo. Pulsos electrofisiológicos dentro de “centros sherringtonianos” habían sido correlacionados con formas apropiadas de conducta; por ejemplo, ráfagas de disparos de neuronas en la formación reticular medular estaban relacionadas con la respiración. La actividad neural fue limitada conceptualmente a la actuación de información almacenada en regiones neurales específicas. Enfoques más nuevos introdujeron las posibilidades de codificación por patrones dinámicos de disparo neural.
En 1943, McCulloch y Pitts propusieron que las neuronas podían ser descritas aproximadamente por los siguientes supuestos: 1) la actividad de output de una neurona es un proceso “todo o nada”, 2) cierto número de sinapsis de input debe excitarse dentro de un breve período para excitar el output de la neurona, y 3) el único retardo significativo dentro del sistema nervioso es el retardo sináptico. Estas “neuronas McCulloch-Pitts” conectadas en redes podrían, en teoría, realizar cualquier computación. La información conductualmente significativa (“psychons”) fue concebida como patrones de potencial de acción en neuronas individuales, muy parecido a como la descarga masiva en “centros” había sido considerada previamente. Se percibió una estructura más fina de procesamiento neural de información.
Los potenciales de acción todo-o-nada, que fueron el elemento central de la lógica de pulsos, son relativamente nuevos en el curso de la evolución comparados con acontecimientos graduados tipo onda que ocurren en redes nerviosas más primitivas. En el bulbo olfatorio, las células granulares no tienen axones y no generan potenciales de acción detectables extracelularmente en absoluto. Así, el impulso nervioso no es la única base de transmisión, ni entre neuronas ni dentro de neuronas. ¿Cuál es el sustrato básico de transferencia y procesamiento de información dentro del sistema nervioso? McCulloch (1943) consideró:
… ¿Por qué he elegido cuantizar en impulsos nerviosos? … Si pensamos (en el cerebro) en términos de sus partículas últimas, uno podría dividir esto al nivel de los átomos o podría dividirlo al nivel de las neuronas, y así sucesivamente. La pregunta es en qué nivel puede uno dividir la conducta para definir un conjunto de unidades con las cuales trabajar. Y obviamente el impulso nervioso al nivel de la neurona es una unidad bastante buena para trabajar … . Pero lo que busco es algo que realice una tarea lógica. Quisiera una cosa que tenga un grano, y quisiera tomar ese grano como mi unidad.
El grano que explicaría el procesamiento de información dentro de todos los sistemas eucarióticos es la actividad dinámica de subunidades dentro de proteínas citoesqueléticas. McCulloch, Pitts y otros habían conjeturado que la información estaba codificada en el patrón y la secuencia de impulsos nerviosos, de manera algo similar al código Morse en líneas telegráficas. Sin embargo, Adrian mostró en 1947 que la frecuencia de disparo en una célula nerviosa es una medida cuantitativa de la intensidad del estímulo. Cuando se presiona la piel, cuanto más fuerte la presión aplicada a la piel, mayor la frecuencia y mejor mantenido el disparo de la célula. La codificación por frecuencia parece limitada a información sobre la intensidad de un estímulo, y los impulsos en una célula dada parecen idénticos a los de otras células nerviosas. La significación y el significado son bastante específicos para cada célula; por ejemplo, neuronas sensoriales de la piel indican que una parte particular de la piel ha sido presionada. Aunque no parece haber razón por la cual una gran cantidad de información no pudiera ser transmitida por cualquier señal predeterminada, incluido un código compuesto de diferentes frecuencias, la frecuencia o patrón de descargas no parecen sostenerse por sí mismos como información cualitativa. Tras este reconocimiento, el significado de una señal pasó a atribuirse a los orígenes y destinos de las fibras nerviosas que la transmiten: “conexionismo”. La importancia de las conexiones se ejemplifica por sensaciones de luz producidas por estimulación no visual del globo ocular, o por el fenómeno del miembro fantasma, en el que un amputado puede tener sensación de un miembro retirado hace mucho tiempo. En cada caso, la representación mental está determinada por la localización de la estimulación.
McCulloch y Pitts elaboraron su modelo añadiendo un término que incluía la posibilidad de que una decisión de disparo dependiera de inputs de tiempos más remotos que el período de retardo sináptico (memoria dendrítica) y considerando redes neurales circulares: vías cerradas con feedback lógico y reverberación. Así, la lógica de pulsos evolucionó hacia conexionismo y redes neurales como medios de representación neural de información.
Conexionismo y Redes Neurales
La forma y estructura de las neuronas y la observación de la neuroanatomía fueron puestas al alcance de la microscopía óptica por el anatomista italiano Camillo Golgi en 1875. Encontró un método por el cual, al parecer al azar, unas pocas neuronas en una región cerebral quedaban teñidas en su totalidad, con todas sus ramas evidentes. El citoplasma de neuronas seleccionadas absorbe una tinción de color brillante y queda así expuesto contra la maraña enredada de células menos visibles. El contemporáneo de Golgi, el español Santiago Ramón y Cajal (1955), usó la tinción de Golgi para investigar casi cada parte de los sistemas nerviosos mamíferos. Sus textos de neuroanatomía siguen siendo clásicos y resolvió la cuestión de si los nervios eran entidades separadas como todas las demás células, o parte de una red continua. También demostró que las conexiones complejas entre neuronas no son aleatorias, sino altamente selectivas y específicas.
Generaciones posteriores de neuroanatomistas y neuroembriólogos, incluido Roger Sperry (1969, 1980), han enfatizado el detalle meticuloso con que se forman las conexiones neurales, y apoyaron inicialmente el concepto del sistema nervioso como un dispositivo de lógica de pulsos, superando el concepto más antiguo del cerebro como tablero de conmutación de centros reflejos. El descubrimiento de Adrian de que la codificación por pulsos neurales estaba limitada a un acoplamiento frecuencia/intensidad desplazó el énfasis al conexionismo per se. Debido a que las señales eléctricas que el cerebro usa para comunicarse entre células eran vistas como estereotipadas, o casi idénticas, se las veía como símbolos que no se parecen por sí mismos al mundo externo que representan. El consenso de opinión respecto de las funciones cerebrales se desplazó hacia un concepto en el que la forma de una neurona y los orígenes y destinos de sus fibras determinan la representación mental como parte de una red neural. Se pensaba que el significado de señales estereotipadas derivaba de conexiones específicas de neuronas.
El alto grado de precisión con que las células nerviosas se conectan entre sí y con diferentes tejidos en la periferia pasó a enfatizarse en el concepto conexionista. El ordenamiento de conexiones formadas durante el desarrollo pasó a verse como esencial para mecanismos de integración y representación de información de algún modo. El sistema nervioso parecía estar construido como si cada neurona tuviera incorporado un darse cuenta de su lugar adecuado en el sistema. La cuestión de la representación mental se reenfocó en el desarrollo embriológico durante el cual se formaban conexiones sinápticas. Durante el desarrollo, la neurona crece hacia su blanco, ignora algunas células, selecciona otras y establece contacto permanente; no simplemente en cualquier lugar de una célula, sino con una parte especificada de ella. Además, las neuronas se comportan como si supieran cuándo han recibido una conexión sináptica apropiada. Cuando pierden sus sinapsis responden de diversas maneras. Por ejemplo, neuronas o fibras musculares desconectadas de sus contactos neuronales pueden morir, pero primero desarrollan “super-sensibilidad” a su neurotransmisor químico por medio de una abundancia de nuevas proteínas receptoras de membrana sináptica. La muerte o disfunción celular inducida por denervación ocurre debido a una pérdida de “trofismo” morfológico, una función neural que transmite material e información estructural y funcional por transporte axoplásmico citoesquelético. Atrofia, distrofia y espasticidad de músculos y miembros que ocurren después de accidentes cerebrovasculares y otros insultos del sistema nervioso son ejemplos de pérdida de trofismo normal. Microtúbulos y otras proteínas citoesqueléticas responsables del trofismo y el transporte axoplásmico también permiten el crecimiento y la extensión de conos de crecimiento axonal neuronal, dendritas y espinas dendríticas, y por tanto desempeñan un papel clave en las conexiones neurales. Super-sensibilidad, espasticidad, atrofia y distrofia son ejemplos de “plasticidad sináptica”, cambios en conexiones o fuerza de conexión entre neuronas que son relevantes para la función cerebral y corporal.
La asociación del aprendizaje con la alteración continua de la función sináptica fue considerada por varios escritores de fines del siglo XIX y fue popularizada debido a las influencias pavlovianas y conductistas de las respuestas condicionadas. Pavlov (1928) propuso que los reflejos condicionados se establecen formando nuevas conexiones entre neuronas corticales que reciben un estímulo condicionado (uno acompañado por recompensa o castigo) y aquellas que reciben un estímulo no condicionado. Una vez establecida una nueva vía, el estímulo no condicionado adquiriría el mismo poder de evocar la respuesta que sólo el estímulo condicionado poseía originalmente. La idea de Pavlov de una nueva conexión se fusionó con el concepto de Donald Hebb (1949) de cambios plásticos en eficacia sináptica correlacionados con el aprendizaje. Debido a que se creía que nuevas fibras y por tanto nuevas conexiones sinápticas no podían crecer en adultos, la facilitación de largo plazo de conexiones anatómicamente preformadas, inicialmente no funcionales, se volvió la alternativa probable. Esto implicaba que al nacer existía una vasta cantidad de condiciones sinápticas redundantes e inefectivas que eran “seleccionadas” durante la vida de experiencia del individuo. Una visión alternativa es que, al nacer, excitaciones pueden pasar entre cualesquiera dos puntos del SNC a través de una red aleatoria de conexiones. A medida que ocurrían maduración, experiencia y aprendizaje, la actividad sináptica esculpía gradualmente patrones utilizables suprimiendo interconexiones no deseadas.
Así, el cerebro/mente conexionista pasó a verse como uno de dos tipos de sistemas: una pizarra en blanco (“tabula rasa”) en la que el aprendizaje adquirido y la organización interna resultan de impronta ambiental directa, o una red “seleccionista” elegida de una red potencial mucho más vasta. Los seleccionistas creen que el cerebro/mente genera espontáneamente patrones variables de conexiones durante períodos infantiles de desarrollo llamados “redundancia transitoria”, o a partir de patrones variables de actividad llamados prerrepresentaciones en el adulto. Las interacciones ambientales meramente seleccionan o estabilizan selectivamente patrones preexistentes de conexiones y/o disparos neurales que encajan con el input externo. Los seleccionistas creen además que, como correlato del aprendizaje, las conexiones entre neuronas son eliminadas (poda) y/o se reduce el número de patrones de disparo accesibles. Apoya un punto de vista seleccionista la observación de que el número de neuronas y sinapsis aparentes disminuye durante ciertas etapas importantes del desarrollo en niños. Sin embargo, esta reducción podría estar enmascarando un aumento de complejidad entre arborizaciones dendríticas, espinas, sinapsis y citoesqueleto. La visión seleccionista también es susceptible al argumento de que nuevo conocimiento parecería difícil de incorporar.
Bajo el supuesto de que el modo básico de aprendizaje y conciencia dentro del cerebro se basa en conexiones sinápticas entre neuronas (visión conexionista), se han hecho varios intentos de modelar el aprendizaje al nivel de grandes ensamblajes de neuronas interconectadas. Hebb fue pionero en este campo al proponer que el aprendizaje ocurría por fortalecimiento de conexiones sinápticas específicas dentro de una red neuronal. Esto condujo a un concepto de grupos funcionales de neuronas conectadas por sinapsis variables. Estos grupos funcionales como regiones anatómicas cerebrales han sido descritos por diversos autores como redes, asambleas, carteles, módulos o cristales. Estos modelos reciben ayuda de las matemáticas de la mecánica estadística y han sido rejuvenecidos por el trabajo de Hopfield (1982), Grossberg (1978), Kohonen (1984) y otros, quienes trazaron analogías entre redes neurales dentro del cerebro y propiedades de computadores que conducen a aplicaciones para inteligencia artificial. Enfatizaron que propiedades computacionales útiles para organismos biológicos o para la construcción de computadores pueden emerger como propiedades colectivas de sistemas que tienen un gran número de componentes simples equivalentes o neuronas con alto grado de interconexión. Las redes neurales comenzaron como modelos de cómo funciona el cerebro y ahora han engendrado chips y computadores construidos con arquitecturas conexionistas de neural net que utilizan cientos de unidades de cómputo y las enlazan con muchos miles de conexiones. Hopfield (1982) comenta que los chips de neural net pueden proporcionar computación de grano fino y masivamente paralela con:
una tolerancia tipo cerebro para hechos borrosos e instrucciones vagas. Algunas de las propiedades generales que obtienes en estos sistemas son sorprendentemente parecidas a … propiedades que vemos en neurobiología … . No tienes que construirlas; simplemente están ahí … .
Las redes neurales habían aparecido formalmente en el modelo “perceptron” de Rosenblatt (1962) de las décadas de 1950 y 1960. Los perceptrones crearon entusiasmo, pero no alcanzaron su potencial debido a limitaciones del modelo y su matemática. Los expertos de IA Marvin Minsky y Seymour Papert (1972) escribieron una reseña duramente crítica que desalentó la investigación en neural nets hasta el resurgimiento de Hopfield en la década de 1980. Hopfield introdujo una función de energía de modo que la información en un circuito de neural net se asentaría en una serie de estados de energía estables, muy parecido a como el agua de lluvia que cae sobre montañas fluye por valles hacia lagos y ríos. Dependiendo de la lluvia, un estado de información (es decir, memoria, imagen consciente, pensamiento) sería un patrón dado de cuenca hidrográfica. Las neural nets de Hopfield se basan laxamente en aspectos de neurobiología, pero se adaptan fácilmente a circuitos integrados. Las propiedades colectivas de su modelo producen una memoria direccionable por contenido (descrita por un flujo de espacio de fases del estado del sistema) que rinde correctamente una memoria entera desde cualquier subparte de tamaño suficiente. El algoritmo para la evolución temporal del estado del sistema se basa en procesamiento paralelo asincrónico. Propiedades colectivas emergentes adicionales incluyen cierta capacidad de generalización, reconocimiento de familiaridad, categorización, corrección de errores, retención de secuencias temporales e insensibilidad al fallo de componentes individuales. Las redes de Hopfield y modelos similares se categorizan mejor con la visión de “tabula rasa” del aprendizaje, en la que el estado inicial se toma como un paisaje de energía plano que se vuelve progresivamente contorneado, erosionado y complicado por interacciones directas con el ambiente.
Jean Pierre Changeux, pionero en la descripción de interacciones alostéricas entre proteínas, ha tomado un enfoque seleccionista de la teoría de neural net. Volviéndose hacia el cerebro/mente, Changeux y colegas (1984, 1985) han propuesto un modelo de aprendizaje por selección basado en los avances más recientes en mecánica estadística de sistemas desordenados, a saber, la teoría de spin glasses. Los spin glasses son materiales que no son cristalinos, pero cuyos átomos poseen un alto grado de relaciones vecinas similares y un número finito (por ejemplo, 2) de estados de spin magnético influidos por sus vecinos. Agregados de estados de “spin similar” engendran estados similares entre vecinos. En consecuencia, los estados de spin de átomos en un spin glass pueden verse como una red (o autómata celular) muy parecida a una colección de neuronas en un sistema nervioso. Changeux también usa términos de la teoría matemática del caos como cuencas y atractores para describir los estados hacia los que evoluciona el modelo de spin glass. A diferencia del enfoque de pizarra en blanco, el estado inicial del cerebro es visto por Changeux como un paisaje de energía complejo con una exuberancia de valles típica de spin glasses. Cada valle corresponde a un conjunto particular de neuronas activas y desempeña el papel de una prerrepresentación. Un patrón de input establece una configuración inicial que converge hacia un valle cuyo umbral de entrada es rebajado por modificación sináptica. Partiendo de una distribución jerárquica de valles, los valles “más bajos” (fiordos a nivel del mar) corresponderían a comprensión máxima, respuesta última, mejor correlación. El proceso de aprendizaje es visto como suavizado, jardinería y poda evolutiva a medida que la información ya almacenada influye sobre las prerrepresentaciones disponibles para el siguiente acontecimiento de aprendizaje. El modelo de spin glass de Changeux para neural nets es elegante y presenta con éxito un patrón jerárquico de clasificación estática de información. Sus limitaciones son que es unidireccional y no logra describir procesamiento de información dinámico, “en tiempo real”.
Otro modelo seleccionista de red conexionista de aprendizaje es el de George Reeke y Gerald Edelman (1984), de Rockefeller University. Describen dos redes paralelas de autómatas de reconocimiento que se comunican lateralmente. Los autómatas son patrones dinámicos de interacciones de vecindario capaces de procesamiento de información (Capítulo 1). Los dos autómatas paralelos de reconocimiento que Edelman y Reeke diseñaron tienen personalidades distintas y complementarias. Se llaman Darwin y Wallace, por los codesarrolladores de la teoría de la evolución, y utilizan enfoques diferentes para el problema del reconocimiento. “Darwin” es altamente analítico, orientado a reconocer bordes, dimensiones, orientación, intensidad, color, etc. “Wallace” es más “gestalt” e intenta meramente categorizar objetos en clasificaciones preconcebidas. Como en todos los sistemas de procesamiento paralelo, el output de los procesadores individuales debe reconciliarse si no son idénticos. Redes de comunicación lateral entre Darwin y Wallace resuelven output conflictivo y forman una memoria asociativa. Debido a que operan sobre una red conexionista inmutable, Darwin y Wallace son considerados “seleccionistas”. Autómatas de reconocimiento similares pueden estar operando en redes citoesqueléticas dinámicas dentro de neuronas.
Distributedness
La apreciación neuroanatómica de la estructura sináptica dio credibilidad a la teoría conexionista y permitió a Hebb extender la teoría de neural nets discretamente ensambladas y reguladas sinápticamente a memoria y conducta en humanos. Sin embargo, los únicos datos experimentales provenían de 30 años de trabajo de Karl Lashley (1929, 1950), quien había mostrado que memoria y percepción parecen estar distribuidas por todo el cerebro. La búsqueda de Lashley era el sitio de representación, el “engrama”, de información, memoria y conducta aprendida en los cerebros de animales de laboratorio.
Los experimentos de Lashley en busca del engrama consistieron en ablación de partes específicas de cerebros animales con pruebas cuidadosas de retención de hábitos aprendidos antes de la ablación, capacidad de reaprender y capacidad de aprender nuevas tareas. La conclusión general fue que la función de memoria se altera en proporción a la cantidad de corteza destruida, independientemente de qué parte de la corteza hubiera sido retirada. En cuanto al aprendizaje, Lashley consideraba que todas las partes de la corteza eran equipotentes excepto las áreas receptoras sensoriales específicas implicadas en esa modalidad particular de aprendizaje. Los hallazgos de Lashley fueron una decepción para los conexionistas y engendraron una perspectiva sombría, desesperanzada. En su famosa obra de vida, In Search of the Engram, Lashley (1950) escribió que después de 30 años de buscar la localización del engrama en el cerebro estaba convencido de que “el aprendizaje simplemente no es posible. Sin embargo, a pesar de toda la evidencia en contra, el aprendizaje a veces ocurre”. Lashley se recuperó de la desesperación para proponer una alternativa al almacenamiento localizado de trazas de memoria unidas a vías reflejas espacialmente fijas. Acordando que la recuperación implica reactivar un patrón previo de excitación neuronal, insistió en que el patrón que representa cualquier memoria única podía evocarse no sólo en un conjunto específico de neuronas, sino en muchos conjuntos, en muchos lugares, y quizá en cualquier parte de regiones del cerebro relacionadas con la función de memoria. Esta distribución de información en la memoria fue explicada por Lashley como patrones excitatorios en la corteza relacionados con la expansión de patrones de interferencia sobre la superficie de un líquido perturbado en varios puntos a la vez. (Su teoría de patrones de interferencia inspiró más tarde comparaciones entre cerebro, almacenamiento de información y holografía láser.)
Lashley (1929):
Los impulsos nerviosos son transmitidos … a través de conexiones intercelulares definidas, pero toda conducta parece estar determinada por masas de excitación … dentro de campos generales de actividad sin consideración por células nerviosas particulares. Es el patrón y no el elemento lo que cuenta.
Hebb (1949) comentó:
Lashley ha concluido que una discriminación aprendida no se basa en la excitación de ninguna célula nerviosa particular. Se supone que está determinada únicamente por el patrón o forma de la excitación sensorial … esto sugiere que la “traza mnémica”, el cambio neural inducido por la experiencia y que constituye memoria, no es un cambio de estructura … [es] un patrón duradero de actividad reverberatoria sin locus fijo, como alguna formación de nube o un remolino en un estanque de molino.
“Engrama” fue descrito originalmente como la traza “mnémica” del cerebro de una idea elemental, como si fuera el átomo del contenido mental. Una propuesta anterior era que un engrama se almacenaba en el patrón de disparo de una neurona cortical: un “psychon” dentro de una neurona “abuelo” en el ápice de una jerarquía neuronal. La lógica de pulsos veía “psychons” (o engramas) en los patrones de descarga de neuronas, y las neural nets conexionistas equiparaban engramas con circuitos específicos de neuronas conectadas sinápticamente. Se pensaba que la actividad dentro de esos circuitos representaba conciencia y memoria que ocuparían localizaciones específicas dentro del cerebro. La memoria se veía como bibliotecas, archivadores, computadores digitales y cajas de trastos en las que la información se almacenaba en lugares particulares y la recuperación implicaba encontrar dónde estaba almacenada. Los experimentos de Lashley sugirieron que la información no se almacena en ningún lugar particular, sino que se almacena en todas partes; la memoria estaba distribuida. Una interpretación prevalente fue que la información se almacenaba en las relaciones entre unidades y que cada unidad participaba en la codificación de muchas, muchas memorias. Así, la información podía distribuirse sobre grandes áreas espaciales. Con memoria distribuida, trazas individuales dentro de un complejo de trazas pueden encontrarse de modo muy parecido a como filtros pueden extraer componentes individuales de frecuencia de formas de onda acústicas complejas. Los filtros son capaces de detectar la presencia de frecuencias específicas incluso cuando están completamente entrelazadas con otras. En consecuencia, un sistema de memoria distribuida y filtrada puede operar como dispositivo de almacenamiento y recuperación. Si las memorias no son independientes unas de otras, el almacenamiento de una memoria puede afectar a otra. La información previamente almacenada tiende a evocar un patrón original de actividad aunque los inputs al sistema puedan diferir en muchos detalles. Esta descripción es similar al concepto de holograma, en el que ondas coherentes de referencia son necesarias para recuperar información desde un patrón de interferencia.
Lashley (1950):
No es posible demostrar la localización aislada de una traza de memoria en ningún lugar dentro del sistema nervioso. Regiones limitadas pueden ser esenciales para el aprendizaje o la retención de una actividad particular, pero dentro de tales regiones las partes son funcionalmente equivalentes. El engrama está representado por toda el área. Todas las células del cerebro deben estar en actividad casi constante, ya sea disparando o inhibidas activamente. Cada instancia de recuperación registra la actividad de literalmente millones de neuronas. Las mismas neuronas que retienen las trazas de memoria de una experiencia deben participar también en innumerables otras actividades.
La recuperación implica la acción “sinérgica” o alguna clase de resonancia entre un número muy grande de neuronas …
La visión de Hebb de la representación del engrama era un bucle cerrado de neuronas disparando en una región confinada. Los estudios de Lashley lo llevaron a sugerir una red abierta, paralela y distribuida que cubre amplias regiones del cerebro. El vínculo de Hebb entre aprendizaje y eficacia sináptica trascendió este conflicto porque se relacionaba con ambos conceptos, que también pueden operar dentro de redes citoesqueléticas.

Figure 25: Figura 4.3 Banco de memoria cerebral basado en nociones “convencionales” de sinapsis de espinas dendríticas. Las líneas de input (B1-3) son axones que se ramifican y hacen sinapsis sobre espinas dendríticas (E) conectadas a líneas de output (C). “Líneas de volcado de archivo” (A, d1-3) dirigen actividades de espinas a “copiar” o “volcar”. Tal configuración permite que cada espina contenga unos 3 bits de información, notablemente bajo comparado con las capacidades de biomoléculas como DNA o microtúbulos. Las actividades citoesqueléticas dentro de espinas dendríticas pueden contribuir. Por Paul Jablonka.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica el modelo convencional de banco de memoria con espinas dendríticas como axones de entrada, líneas de control, espinas de almacenamiento y línea de salida.
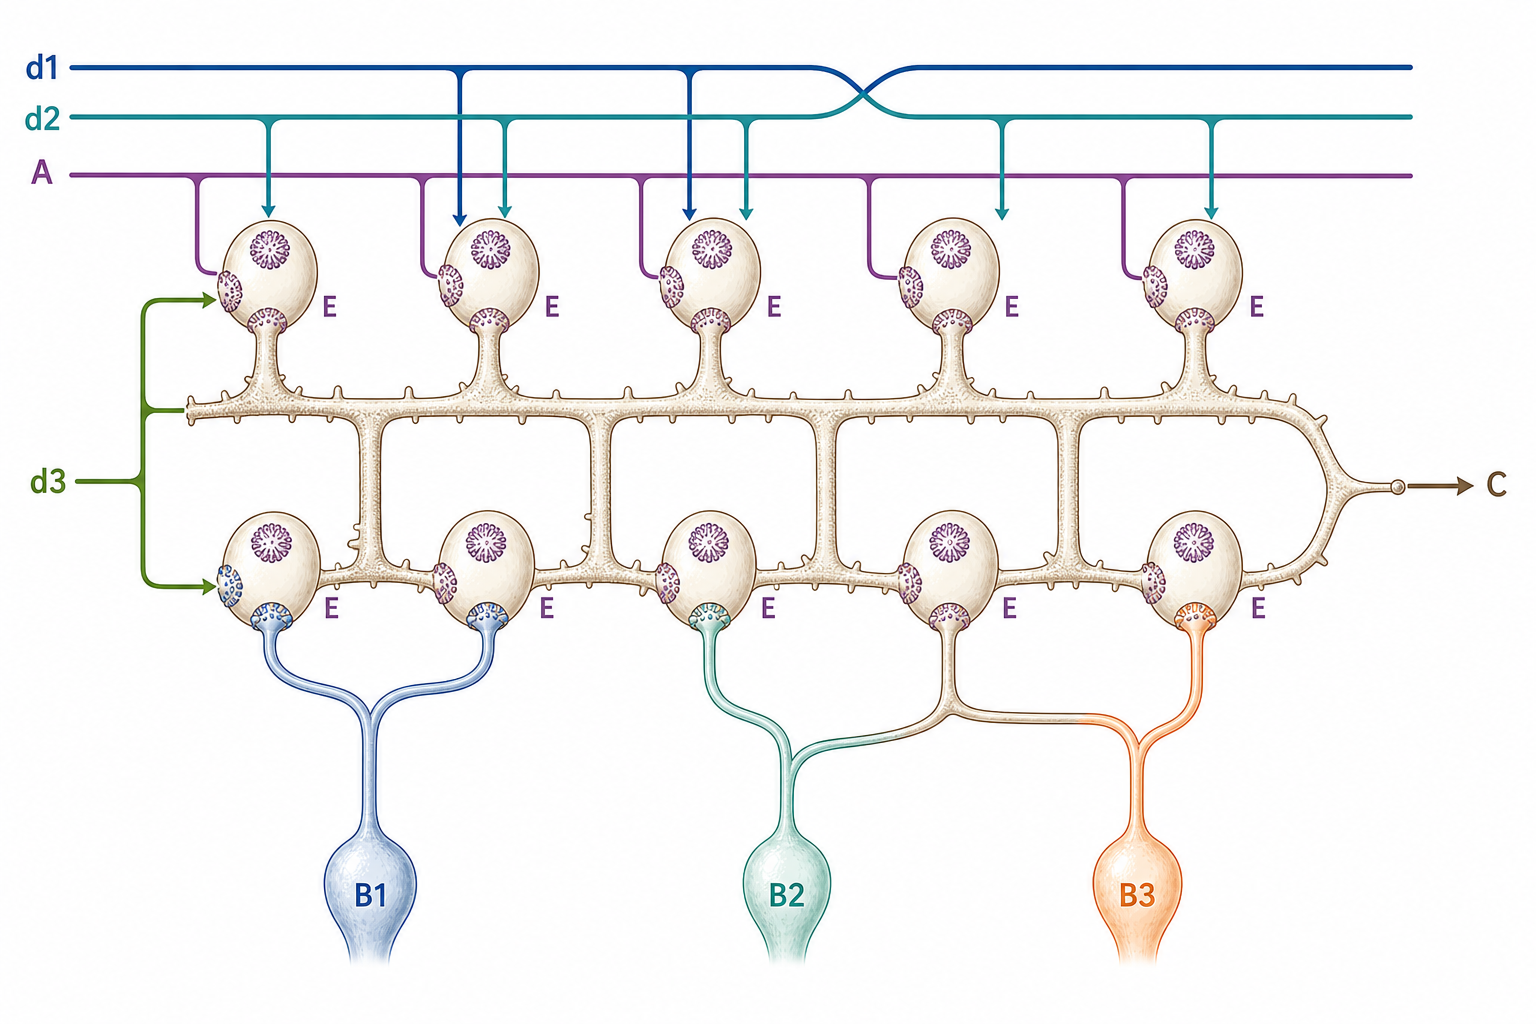
Mecanismos Sinápticos de Aprendizaje y Memoria
Los procesos de memoria se han dividido tradicionalmente en dos clases: corto plazo y largo plazo. La memoria de corto plazo, o memoria de trabajo, es aparentemente cómo recordamos números telefónicos desde que los buscamos en el directorio hasta que los marcamos. La memoria de largo plazo o memoria de referencia se usa para registrar información para referencia de largo plazo. Se piensa que la memoria de corto plazo o de trabajo es de capacidad relativamente pequeña, con un máximo de 5 a 9 ítems en cualquier momento dado. Es lábil y se interrumpe fácilmente si se desvía la atención, y se borra automáticamente en minutos. El ensayo verbal continuo contrarresta el borrado y reingresa los contenidos como memoria de largo plazo. Una vez establecida, la memoria de largo plazo puede durar mucho tiempo, quizá la vida de un individuo. La memoria de largo plazo tiene gran capacidad, y la dificultad para recordar ítems específicos surge no porque las trazas de memoria se desvanezcan, sino porque se pierde su dirección. Rutas de acceso bien practicadas hacia ítems de memoria de largo plazo incluyen “mnemónicos”, claves de referencia fácilmente recordadas. Ítems que han sido almacenados y luego no usados se volverán cada vez más difíciles de recordar. Una vez recuperadas, tales memorias aparentemente olvidadas se vuelven nuevamente accesibles. La sabiduría convencional ha sostenido que los ítems se almacenan en memoria de largo plazo sólo después de haber sido primero mantenidos en memoria de corto plazo. Este es un proceso conocido como consolidación, que se piensa requiere un período finito de tiempo del orden de 45 segundos (Cherkin y Harroun, 1971). Algunos consideran los dos procesos como funciones paralelas independientes. Si la actividad cerebral se altera marcadamente por convulsiones, trauma que resulta en inconsciencia o anestesia general, puede ocurrir el fenómeno de amnesia, en el que el sujeto no puede recordar acontecimientos ocurridos inmediatamente antes de la interrupción. Eventos más lejanos en el pasado no son olvidados por tales intervenciones. Una explicación es que la memoria de corto plazo depende de algún proceso dinámico, como la circulación continua de impulsos en un patrón que, al ser interrumpido, se borra. Según este esquema, las memorias de largo plazo se almacenan por un cambio duradero en las neuronas o en conexiones entre ellas que no sería afectado por tales conmociones. Una analogía con la jerga computacional sugeriría que un programa de software se vuelve “hardwired”. Otros modelos del proceso de memoria describen más bien un continuo en el proceso de consolidación dividido en tres o cinco etapas, o mecanismos enteramente diferentes con métodos variables de entrada, capacidades de almacenamiento, vida útil y accesibilidad. Aún otros modelos consideran todas las funciones de memoria como el mismo mecanismo básico, que difiere sólo en características secundarias.
El aprendizaje está vinculado a la memoria; aprender una tarea compleja probablemente implica generar un patrón adecuado para almacenamiento en memoria. Por ejemplo, la imagen del rostro de una persona puede recuperarse excitando neuronas en un patrón similar al generado cuando ese rostro fue realmente percibido. La capacidad de balancear una raqueta de tenis implica la existencia de un programa o patrón para activar músculos en la secuencia y grado apropiados. Adquirir tales programas neuronales se ha atribuido a cambios en el funcionamiento de sinapsis entre neuronas específicas (Figura 4.3). Cambios estructurales que conducen a alteración en la función y sensibilidad de conexiones sinápticas interneuronales son la piedra angular de los conceptos actuales de aprendizaje y memoria. Las clasificaciones de los tipos de cambios plásticos que podrían ocurrir en sinapsis incluyen habituación, potenciación de largo plazo y potenciación heterosináptica.
La habituación a una respuesta es la forma más simple de aprendizaje. Cuando un animal oye un sonido nuevo puede responder levantando las orejas, mostrando alguna forma de atención. Si ese sonido se repite continuamente, el animal aprende que el sonido o estímulo no es amenazante ni interesante y se “habitúa” a él. La habituación es diferente de otras formas de respuesta disminuida, como fatiga sináptica o desensibilización, y es específica para el estímulo y su intensidad. Si el estímulo habituante se retira por un período de tiempo y se presenta de nuevo, la respuesta reaparece (“dishabituation”). La habituación a estímulos nocivos no ocurre, y cuando estímulos no nocivos y nocivos se emparejan no hay habituación a ninguno de los dos. El mecanismo de habituación ha sido estudiado en detalle en el organismo marino aplysia, o babosa de mar. La babosa de mar tiene un “reflejo de retracción branquial” que es conveniente para estudio. Cuando se estimula la piel del sifón de la babosa, el animal retrae su branquia. Esta respuesta muestra habituación, dishabituation y otros rasgos típicos de respuestas mamíferas más complejas. La red neuronal que media esta respuesta refleja ha sido ampliamente mapeada y las sinapsis participantes estudiadas eléctricamente. La habituación de la retracción branquial podría haber sido resultado de muchos procesos, incluida inhibición sináptica, pero de hecho se ha mostrado que es resultado de una disminución del output de neurotransmisor excitatorio en las terminales axonales presinápticas que median el reflejo de retracción. El neurocientífico Eric Kandel (1976), de Columbia University, ha mostrado que la habituación es diferente de la fatiga ordinaria, no implica agotamiento del transmisor disponible y está relacionada con un flujo disminuido de iones de calcio a través de canales presinápticos de calcio. Así, una respuesta conductual ha sido elegantemente relacionada con acontecimientos de nivel molecular. La actividad de canales presinápticos de calcio y otras proteínas neurales ha sido vista como “alostérica”: una capacidad de integrar espacial y temporalmente múltiples señales convergentes hacia un estado proteico específico, o “conformación”.
La segunda forma de plasticidad neuronal es la potenciación de largo plazo (LTP). En LTP, el uso repetido de una sinapsis hace cada vez más fácil la transmisión a través de esa sinapsis. En las sinapsis del hipocampo del cerebro mamífero, el efecto dura muchas horas y la LTP ha sido clásicamente relacionada con aprendizaje y memoria. Si dos vías comparten una interneurona, entonces la LTP puede mejorar la transmisión por la vía no excitada originalmente, una forma de memoria asociativa y recuperación. La duración del efecto de LTP, de muchas horas a días, corresponde con el recambio morfológico y el mantenimiento trófico de proteínas de membrana sináptica por transporte axoplásmico, una función del citoesqueleto neuronal.
La tercera forma de plasticidad neuronal es la potenciación heterosináptica, en la que la actividad en una sinapsis cambia la eficiencia de transmisión en otra sobre la misma membrana postsináptica. Esto puede ocurrir ya sea por cambio en la sensibilidad de la neurona postsináptica al transmisor, o por cambio en la cantidad de transmisor liberado. Hay alguna evidencia de que la LTP puede deberse a números aumentados de receptores en membranas postsinápticas, y un mecanismo similar podría ocurrir en potenciación heterosináptica, en la que participa más de una neurona. Habituación, potenciación de largo plazo y potenciación heterosináptica pueden dar cuenta de plasticidad sináptica y algunos aspectos de aprendizaje y memoria. Procesos cerebrales relacionados con representación, memoria, aprendizaje y conciencia se enfocan así en alteraciones de nivel molecular en proteínas de membrana sináptica reguladas por el citoesqueleto neuronal.
Hay alguna evidencia de participación citoesquelética directa en procesos cognitivos. Se ha mostrado que actividades de microtúbulos citoesqueléticos y recambio de subunidades de microtúbulos (“tubulina”) aumentan en el cerebro durante momentos específicos de aprendizaje, memoria y experiencia. Mileusnic, Rose y Tillson (1980) han utilizado un modelo de aprendizaje en pollitos bebé que pueden ser entrenados fácilmente para no picotear una cuenta brillante recubierta con una sustancia de sabor desagradable. Estos autores han estudiado algunos de los correlatos neuroquímicos de este “aprendizaje de evitación pasiva” y señalan que la tubulina, el constituyente mayor de los microtúbulos, está presente en grandes cantidades en el cerebro en desarrollo de pollitos jóvenes. Cantidades significativas de tubulina están asociadas con membranas sinápticas, lo que lleva a los autores a concluir que cualquier modelo de aprendizaje y memoria que postule modulación de estructura sináptica, como es consistente con los postulados de Hebb, debe implicar tubulina en el aprendizaje. Otros trabajos de su laboratorio y otros han mostrado que tanto la incorporación de aminoácidos precursores como la cantidad total de tubulina pueden ser incrementadas por experiencia y aprendizaje durante el desarrollo temprano.
John Cronly-Dillon y colaboradores (1974), de la Manchester University británica, han encontrado que cuando ratas bebé abren por primera vez los ojos, genes en la corteza visual comienzan de pronto a producir vastas cantidades de tubulina que presumiblemente forman microtúbulos implicados en establecer nuevas conexiones sinápticas. Cuando las ratas tienen 35 días, la fase crítica para el aprendizaje ha terminado y la producción de tubulina se reduce drásticamente. Su conclusión es que el recambio de tubulina y la actividad de microtúbulos están implicados en aspectos de plasticidad sináptica del aprendizaje y la memoria.
Otro modo dinámico de plasticidad sináptica enfocado en espinas dendríticas ha sido propuesto por Francis Crick (1982). Sugirió que las espinas dendríticas pueden “twitch” y cambiar su forma, alterando así sus umbrales sinápticos mediante cambios mecánicos. La colocación y arquitectura de las espinas dendríticas están determinadas por microtúbulos, pero las espinas mismas están compuestas mayormente de actina contráctil (Matus, Ackermann, Pehling, Byers y Fujiwara, 1982). La plasticidad dinámica de espinas, orquestada por MT dendríticos y citoesqueleto, puede ser un mecanismo importante de memoria de corto plazo, y un vínculo entre el citoesqueleto y las redes neurales de nivel sináptico. Otro vínculo es el transporte axoplásmico, que mantiene y abastece la forma y las funciones de espinas dendríticas y todas las sinapsis y estructuras neuronales.
Transporte Axoplásmico
Proteínas de membrana sináptica, incluidos canales iónicos y receptores, estructuras proteicas citoesqueléticas que expulsan vesículas neurotransmisoras, orgánulos incluidas mitocondrias, y enzimas requeridas para la síntesis y metabolismo de transmisores son fabricadas sólo en los cuerpos celulares de neuronas, donde existe maquinaria bioquímica para síntesis y ensamblaje de proteínas (aparato de Golgi y ribosomas). Estos materiales o sus precursores son luego movidos a través del axón (o dendrita) hasta la terminal nerviosa por un mecanismo citoesquelético similar a una cinta transportadora o cadena de cubos. Fotografía time-lapse de neuronas en cultivo celular muestra mitocondrias (orgánulos grandes que producen energía química en forma de ATP) flotando por axones como barcazas en un río. Tecnología reciente como microscopía de contraste mejorado por video (Allen, 1987) ha mostrado vesículas desplazándose rápidamente a lo largo de microtúbulos sobre las superficies de axoplasma extruido de neuronas de calamar. Los transmisores se sintetizan en toda la neurona a medida que las enzimas que catalizan la formación de transmisores se mueven a lo largo del aparato citoesquelético desde el cuerpo celular hasta la terminal. La mayor actividad enzimática y concentraciones de transmisores se alcanzan en los boutons terminales. Así, la plasticidad de una sinapsis, su eficacia, disposición y umbral, que parecen regular aprendizaje y memoria en neural nets a lo largo del tiempo, dependen todas del transporte axoplásmico.
Se han identificado varios procesos separados e independientes de transporte axoplásmico siguiendo el movimiento de diversos trazadores. Los más rápidos se mueven a una tasa de 400 milímetros por día (unos 500 nanómetros por segundo), los más lentos apenas un milímetro por día. Las partes mecánicas del sistema son microtúbulos y proteínas contráctiles unidas a sitios específicos en paredes de microtúbulos. Estas proteínas contráctiles (dineína o kinesina) utilizan energía química en forma de hidrólisis de ATP para contraerse en secuencias orquestadas de actividad de cadena de cubos. Lo que no se comprende es el mecanismo por el cual los microtúbulos orquestan las actividades secuenciales cooperativas de las proteínas contráctiles unidas. La corriente principal de transporte axoplásmico puede ser detenida por fármacos como colchicina, que despolimeriza microtúbulos. El transporte axoplásmico generalmente fluye desde el cuerpo celular hacia las puntas de las fibras. En nervios motores, el transporte axoplásmico fluye en la misma dirección que el tráfico de impulsos; en neuronas sensoriales primarias fluye en dirección opuesta a los impulsos sensoriales. En dendritas, el flujo principal también va del cuerpo celular a la periferia. Todos estos son ejemplos de flujo axoplásmico anterógrado. También hay transporte simultáneo en la dirección opuesta hacia el cuerpo celular, llamado flujo axoplásmico retrógrado, que aparentemente lleva información de feedback a la maquinaria celular para regular la producción de enzimas transmisoras y otros materiales. También podría devolver constituyentes celulares gastados o degradados para ser reciclados. Estos mecanismos tróficos de feedback crean neuronas dinámicas capaces de cambiar forma y función como adaptación a la experiencia en curso sin pérdida excesiva de información antigua. Sinapsis, espinas dendríticas, patrones de ramificación dendrítica y proteínas de membrana están cambiando continuamente, pero las memorias que contienen son de algún modo mantenidas por el citoesqueleto siempre presente y siempre cambiante.
Paralelismo, Cooperatividad Colectiva y el Grano del Engrama
Las sinapsis neurona-a-neurona operan del orden de milisegundos, mientras que los computadores modernos de alta velocidad operan con interruptores semiconductores que funcionan del orden de nanosegundos. Sin embargo, el cerebro es capaz, en unos pocos cientos de milisegundos, de realizar hazañas de procesamiento imposibles de emular en cientos de minutos de tiempo computacional. La suposición es que el cerebro logra esta hazaña mediante la operación simultánea de muchísimos componentes paralelos.
Modelos paralelos y distribuidos de organización colectiva de la mente han sido propuestos por dos autores notables que provienen de orientaciones diferentes. Michael Gazzaniga (1985) es uno de los primeros investigadores que trabajó con pacientes de “split brain”, en quienes un cuerpo calloso seccionado ha separado hemisferios derecho e izquierdo. Sostiene que las mentes consisten en grandes colecciones de partes más pequeñas semiautónomas, con comunicación limitada entre ellas. Gazzaniga ha desarrollado evidencia convincente de que nuestras mentes son “modulares”; están organizadas en unidades funcionales relativamente independientes que trabajan en paralelo. La mente no opera de una sola manera para resolver problemas, sino que tiene muchas unidades identificablemente diferentes que contribuyen a nuestra estructura consciente de modos que a veces pueden ser aislados por experimentos ingeniosos. Módulos específicos podrían estar dedicados al reconocimiento de rostros e imágenes visuales, interpretación del lenguaje y lo que Gazzaniga llama un “inference engine”. Ubicado en el hemisferio dominante del cerebro cerca del módulo intérprete del lenguaje, se piensa que el inference engine “coordina” la conciencia. Estos módulos pueden compararse con los descritos por Pribram o los “carteles” descritos por Freeman y representan un nivel de jerarquía organizacional cerebral justo por debajo del cerebro entero. Gazzaniga relaciona el libre albedrío con un rasgo básico de organización cerebral, y sugiere que la creencia particular en el libre albedrío misma se sigue de la teoría modular de la mente. Observa que estamos continuamente interpretando conductas producidas por módulos cerebrales independientes como conductas producidas por el “self”. Concluimos que actuamos libremente, mientras que en la raíz de ello realmente no sabemos por qué hacemos casi cualquier cosa. Esta noción puede compararse con el concepto conexionista paralelo (es decir, “Darwin” y “Wallace”), que requiere una votación o caucus para determinar un output resumido. Gazzaniga también afirma que fenómenos cognitivos básicos como adquirir y sostener creencias sociales son tanto producto de la organización cerebral humana como nuestros deseos conductistas de comer, dormir y tener sexo. Argumenta que estamos “hardwired to have beliefs”.
Una conclusión comparable ha sido alcanzada por Marvin Minsky (1986). En The Society of Mind, el patriarca de la IA discute la mente como un vasto número de “agentes”. La información se representa por “frames”, que son múltiples nodos de conocimiento conectados. Minsky arroja sobre la mente una grilla de agentes mucho más compleja que los módulos de Gazzaniga, pero ambos describen niveles de organización entre el nivel sináptico neuronal y el cerebro entero que son más o menos representativos de la teoría de redes neurales. Gazzaniga argumenta que el cerebro es más una entidad social que una psicológica. Antes que ser un todo indivisible como se creyó alguna vez, es una vasta confederación de módulos relativamente independientes, cada uno de los cuales procesa información y activa sus propios pensamientos y acciones. Pero ¿qué son los módulos? ¿Dónde está el grano de la conciencia? ¿No es la mente más que una matriz de módulos pendencieros?
John O'Keefe y Andrew Speakman (1986), en la University College of London, han completado una serie de experimentos sobre la actividad de neuronas hipocampales de rata mientras los animales realizaban tareas de memoria de trabajo espacial. Estos y otros resultados sugieren un mapa cognitivo hipocampal en el que la representación de lugar en un ambiente está distribuida a través de la superficie del hipocampo. O'Keefe y Speakman encuentran que el grano de la representación está al nivel de una célula individual o por debajo. Es decir, cada célula en un pequeño cluster participa en la representación de diferentes parches de ambiente. A la inversa, cualquier cluster de unas 8 a 10 células parece adecuado para proporcionar una representación gruesa de un ambiente entero. La adición de más células a la red aumenta la resolución, o grano de la representación, pero no la altera. La representación de un ambiente está así distribuida y la “granularidad” está en un nivel por debajo del de nervios y sinapsis individuales. E. R. John y colegas (1986), de New York University, han usado mapeo metabólico de trazas de memoria en gatos para mostrar que la información está extensamente distribuida, requiriendo que “las células (nerviosas) participen en múltiples memorias”. Implican:
… procesos cooperativos en los que la conducta no aleatoria de enormes ensamblajes de elementos neurales media la integración y el procesamiento de información y la recuperación de memorias. Memoria y awareness en sistemas neurales complejos pueden depender de propiedades actualmente no reconocidas del sistema como totalidad.
Walter Freeman (1972, 1983), de la University of California at Berkeley, está de acuerdo en que los sistemas nerviosos son más que la suma de sus partes. Según Freeman, esto ocurre porque interconexiones de números de neuronas dan lugar a propiedades colectivas pertenecientes a las poblaciones neurales en general antes que a neuronas individuales específicas. Tales propiedades colectivas relacionadas con procesos mentales son pensadas por Freeman como generadas por la interconectividad de números de neuronas de al menos diez mil o más.
Freeman y otros que defienden aspectos colectivos cooperativos de procesos mentales citan el electroencefalograma (EEG) como evidencia de apoyo. El EEG es una onda electromagnética continua que impregna el cerebro y está compuesta de frecuencias desde un hertz (= Hz = ciclos por segundo) hasta unos pocos miles de Hz, pero concentrada en el rango entre 3 y 50 Hz (Capítulo 7). El EEG se ha usado durante medio siglo para diagnosticar enfermedad cerebral, pero no fue hasta la década de 1960 que se aclaró la fuente de las “ondas cerebrales”. El EEG surge no de la suma de potenciales de acción propagantes en axones, sino más bien de los potenciales lentos y graduados producidos por dendritas y cuerpos celulares. Potenciales locales se combinan para formar patrones regionales y de todo el cerebro. Neuronas individuales y sus dendritas entran y salen de fase con el campo EEG circundante. Estudios de Adey (1977), John (1980) y muchos otros científicos han correlacionado actividades mentales en animales y humanos con cambios de patrón EEG. Debido a que el EEG es producido por grandes números de neuronas, estas correlaciones pueden sugerir que efectos neuronales colectivos son la base de actividades mentales. Freeman propone que fenómenos de onda EEG funcionalmente significativos ocurren dentro de masas neurales en las que existe conexión de feedback de una neurona con muchas otras en la misma masa. Ondas colectivas de potenciales graduados son el candidato de Freeman para el grano de la conciencia. La actividad ondulatoria localizada dentro de masas neurales o “carteles” estaría relacionada con ondas EEG del mismo modo en que ondas de temperatura y presión atmosféricas generan patrones de nubes: efectos secundarios observables que pueden rendir información sobre las dinámicas internas.
Las opiniones respecto de la significación de campos ondulatorios EEG colectivos locales varían desde epifenómenos superfluos, a transmisores de información, hasta la sustancia de la conciencia misma. E. R. John (1984) es quizá el proponente más fuerte; señala que las neuronas individuales son sensibles a los campos que generan. Adey (1984) y colegas han aplicado campos “tipo EEG” a los cerebros de animales experimentales y han encontrado que producen efectos conductuales. John propone que un campo electromagnético específico es evocado por estímulos sensoriales y “resuena” con patrones similares almacenados en memoria. Nuevos patrones traen nuevas resonancias que conducen, según John, a la corriente de experiencia consciente. Los patrones de onda modifican la estructura neuronal, formando memorias que serán evocadas por resonancias posteriores.
E. R. John (1980) afirma:
La conciencia es una propiedad de estas distribuciones improbables de energía en espacio y tiempo, así como la gravedad es una propiedad de la materia.
Hacia la Conciencia Molecular
¿Cómo se acopla la energía de ondas eléctricas a la estructura neuronal, y qué estructuras neuronales son más adecuadas para el acoplamiento y la representación de contenido cognitivo? El reconocimiento simultáneo (y el acoplamiento cooperativo) por grandes números de elementos neurales requiere cambios rápidos en el estado químico de macromoléculas ampliamente distribuidas. Candidatas probables son las proteínas “alostéricas”, que pueden transducir señales regulatorias (unión de moléculas, iones/acidez, campos de voltaje, etc.) para experimentar cambios conformacionales funcionales. Hyden (1977) propuso inicialmente que las proteínas cambian rápidamente su conformación en respuesta a campos eléctricos débiles y oscilantes. W. Ross Adey (1977) ha elaborado el acoplamiento entre conformación y función de proteínas neurales y ondas EEG. Ha sugerido que redes de glucoproteínas hidratadas (que se extienden desde membranas neurales hacia el espacio extracelular), proteínas de membrana y el citoesqueleto están preparadas para experimentar cambios conformacionales rápidos en respuesta a patrones EEG espaciotemporales localizados y selectivos, así como a señales bioquímicas. La transducción de energía electromagnética hacia estados conformacionales por proteínas ampliamente distribuidas puede representar cooperativamente información dinámica.
El hilo común de la inteligencia biológica, el “grano del engrama”, puede encontrarse dentro de dinámicas cooperativas de una red molecular cuya estructura y funciones parecen perfectamente adaptadas al procesamiento de información: el citoesqueleto. respuesta a campos eléctricos débiles y oscilantes. W. Ross Adey (1977) ha elaborado el acoplamiento entre conformación y función de proteínas neurales y ondas EEG. Ha sugerido que redes de glucoproteínas hidratadas (que se extienden desde membranas neurales hacia el espacio extracelular), proteínas de membrana y el citoesqueleto están preparadas para experimentar cambios conformacionales rápidos en respuesta a patrones EEG espaciotemporales localizados y selectivos, así como a señales bioquímicas. La transducción de energía electromagnética hacia estados conformacionales por proteínas ampliamente distribuidas puede representar cooperativamente información dinámica.
El hilo común de la inteligencia biológica, el “grano del engrama”, puede encontrarse dentro de dinámicas cooperativas de una red molecular cuya estructura y funciones parecen perfectamente adaptadas al procesamiento de información: el citoesqueleto.
Citoesqueleto/Citocomputador
Los organismos vivos son ensamblajes colectivos de células que contienen ensamblajes colectivos de material organizado llamado protoplasma. A su vez, el protoplasma consiste en membranas, orgánulos, núcleos y el medio interior masivo de las células vivas: citoplasma. Los reordenamientos dinámicos del citoplasma dentro de células eucarióticas explican su forma cambiante, el reposicionamiento de orgánulos internos y, en muchos casos, el movimiento de un lugar a otro. Ahora sabemos que el citoesqueleto, una red dinámica de proteínas filamentosas, es responsable de la organización citoplasmática (Figuras 5.1 a 5.3).
La Naturaleza del Citoplasma
La naturaleza del citoplasma ha sido estudiada científicamente durante al menos un siglo y medio. Esa historia fue descrita por Beth Burnside (1974) en una reunión histórica dedicada al citoesqueleto en la New York Academy of Sciences.
Un observador francés temprano del material celular, Felix Du Jardin, propuso en 1835 que todas las células estaban compuestas de un material móvil llamado “sarcode” que tenía propiedades tanto estructurales como contráctiles. En 1861, el austríaco E. Brucke vinculó las propiedades mecánicas y fisiológicas de las células con una organización o arquitectura fundamental del citoplasma, distinguida de propiedades puramente químicas o físicas. El microscopista neerlandés temprano van Leeuwenhoek observó que los glóbulos rojos se deformaban al pasar por capilares y luego recuperaban su forma, demostrando la elasticidad del citoplasma. La variedad de formas elaboradas que las células asumen y mantienen también requiere cierta rigidez citoplasmática, propiedades que llevaron a biólogos del siglo XIX a concluir que el citoplasma no es meramente un líquido ni una emulsión ni una suspensión acuosa de gránulos portadores de vida. Más bien, la arquitectura y contractilidad citoplasmáticas podían explicarse por la propuesta de una subestructura tipo malla, “reticular” o “fibrosa”, cuyos intersticios estaban llenos de fluido. Para algunos biólogos tempranos, la estructura del citoplasma consistía por tanto en una red reticular continua de fibrillas delicadas que se extendían por la célula (teoría reticular). Otros afirmaban que las fibrillas que formaban el sustrato citoplasmático eran no ramificadas y discontinuas (teoría fibrilar). Ambas teorías fueron inicialmente apoyadas, pero más tarde desinfladas, por técnicas de preparación microscópica de fijación y tinción que surgieron entre 1870 y 1890. Armazones fibrilares y reticulares aparecían por todas partes en muchos tipos de células fijadas, particularmente en células musculares, nerviosas, cartilaginosas y epiteliales.

Figure 26: Figura 5.1 Red citoesquelética en una célula renal de rata canguro (ptK2), ilustrada mediante anticuerpo contra tubulina y microscopía de luz. Los microtúbulos emanan de una región MTOC densa cerca del núcleo (N). Con permiso de Marc DeBrabander (1982).

Figure 27: Figura 5.2 Microtúbulos de células PtK2 doblemente marcados con anticuerpo e inmunooro bajo alta magnificación. Círculos grandes (partículas de oro de 10 nanómetros, flechas) marcan subunidades de tubulina glutamada; círculos pequeños (partículas de oro de 5 nanómetros) marcan subunidades de tubulina tirosinada. Con permiso de Geuens, Gundersen, Nuydens, Cormellisen, Bulinski y DeBrabander (1986), cortesía de Marc DeBrabander y Janssen Pharmaceutica Research Laboratories.

Figure 28: Figura 5.3 Esquema de citoesqueleto/membrana celular. M: membrana celular, MP: proteína de membrana, GP: glucoproteína que se extiende hacia el espacio extracelular, MT: microtúbulos, MF: microfilamentos (filamentos de actina o filamentos intermedios), MTL: retícula microtrabecular. Proteínas citoesqueléticas que conectan MT y proteínas de membrana incluyen espectrina, fodrina, anquirina y otras. Por Fred Anderson.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica la conexión membrana-citoesqueleto entre proteínas de membrana, glucoproteínas, microtúbulos, microfilamentos y retícula microtrabecular.
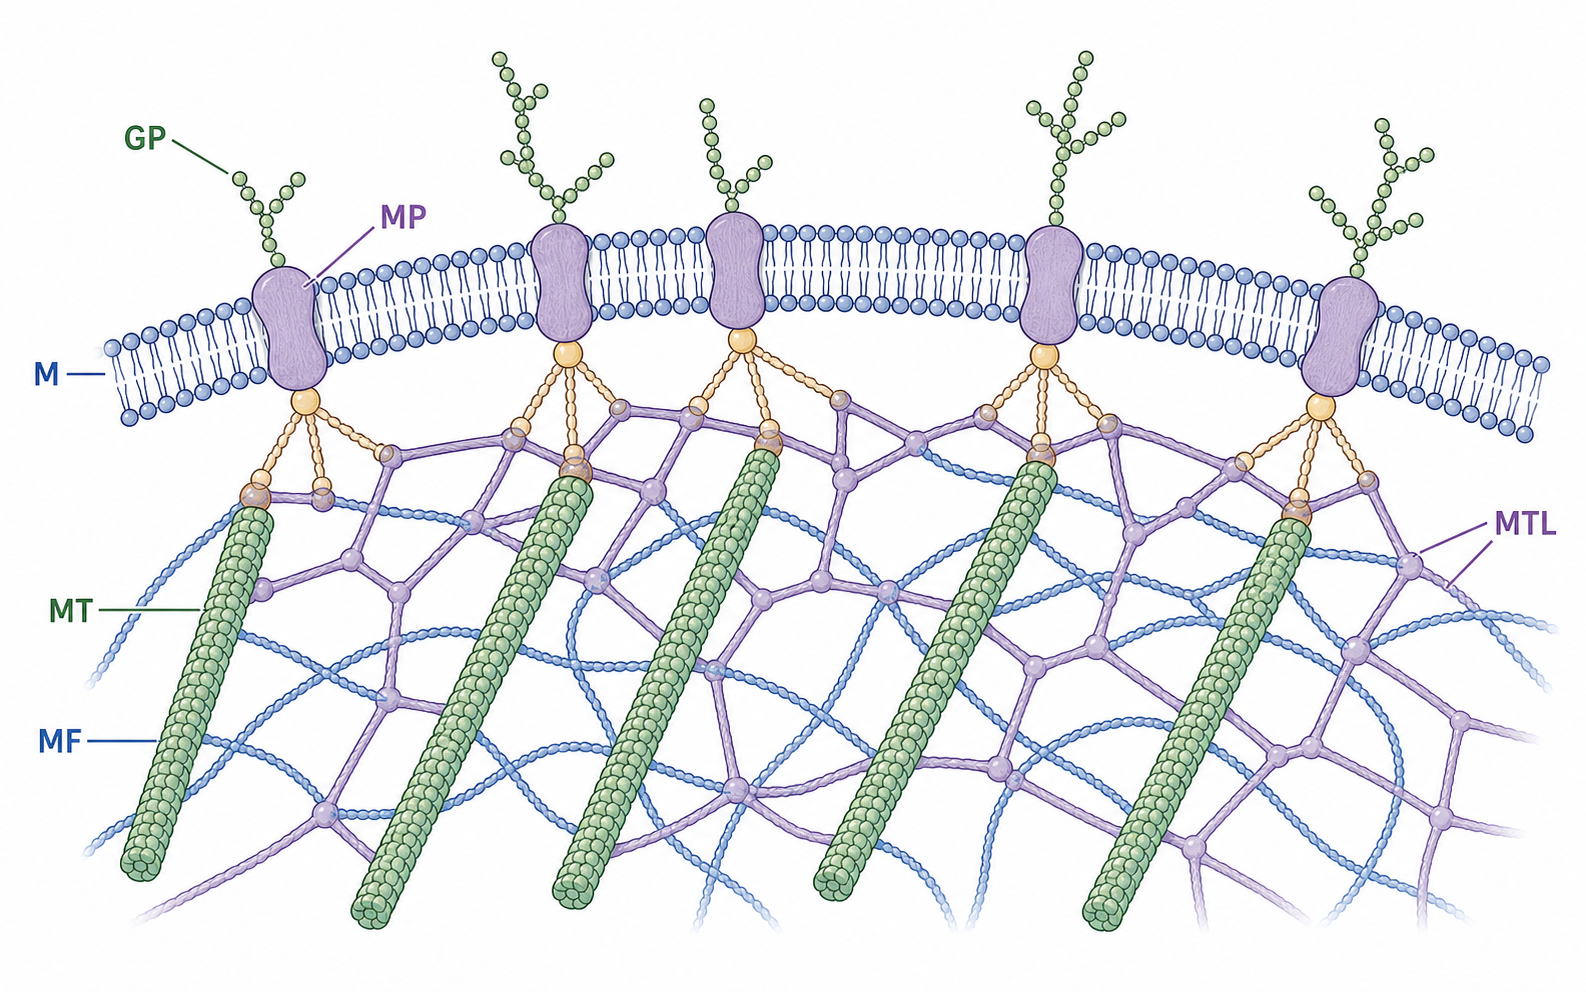
Fischer y Hardy (1899) mostraron que los nuevos fijadores y tinciones inducían coagulación artificial de gelatina, albúmina de huevo y otras proteínas. La coagulación daba lugar a bellas formaciones reticulares y fibrilares, ¡e incluso producía husos mitóticos llamativamente reales, pero falsos! Estos estudios desalentaron el apoyo a las teorías fibrilar y reticular hasta el punto de que muchos citólogos negaron que las mallas vistas en material fijado tuvieran alguna validez en la célula viva. Butschli añadió su teoría de espuma alveolar de la estructura citoplasmática, afirmando que la apariencia reticular vista en materiales fijados y a veces en células vivas resultaba de un panal de vacuolas de una sustancia apretadas en una fase continua de otra. Esta teoría murió porque no lograba dar cuenta de las observaciones de fijación y porque el citoplasma vacuolado era poco común. Mientras tanto, se acumulaban observaciones de verdadera formación fibrilar en células vivas. El uso de microscopía de luz polarizada reveló barras submicroscópicas “birrefringentes” en el citoplasma de músculo, nervio, esperma y husos de células en división. Los biólogos comenzaron a considerar el citoplasma como un “gel”, en el que filamentos en forma de barra formaban enlaces cruzados. Gel describe adecuadamente las propiedades mecánicas del citoplasma: un entramado elástico de unidades cristalinas lineales que da elasticidad y rigidez a un fluido mientras le permite fluir.
Se pensaba que las barras protoplasmáticas reveladas por birrefringencia en microscopía polarizada eran proteínas, o agregados lineales de proteínas, mantenidas juntas por enlaces de hidrógeno. Seifriz concluyó que los “artefactos” fibrilares producidos en células o soluciones proteicas al fijarlas eran significativos. Sugirió que los hilos microscópicos relativamente gruesos en materiales fijados podían ser agregados producidos artefactualmente de hilos submicroscópicos importantes, probablemente proteínas lineales. Para dar cuenta de las propiedades elásticas y tensiles del citoplasma, Seifriz propuso la “brush heap theory” de fibras entrelazadas. Él y otros sugirieron más tarde que las fibras citoplasmáticas podían existir en la forma de brush heap o podían formar asociaciones laterales por enlaces de hidrógeno en agregados paracristalinos, y que el cambio entre los dos estados daba cuenta de la conducta citoplasmática observada en células vivas. Ahora sabemos que subunidades de la proteína actina pueden polimerizarse en una variedad de formas, incluidos geles entrelazados o haces filamentosos. Los estados “gel” citoplasmáticos ocurren debido al entrecruzamiento de filamentos de actina y otras proteínas citoesqueléticas, y pueden convertirse a estados “sol” más acuosos por iones de calcio y otros factores.
El desarrollo del microscopio electrónico durante la década de 1960 inicialmente no iluminó la subestructura del citoplasma. Porciones de células que estaban ópticamente vacías por microscopía de luz persistían en estar vacías en micrografías electrónicas. La célula era percibida por muchos como una “bolsa de enzimas acuosas”. Sin embargo, en algunos casos las estructuras fibrilares vistas con microscopía de luz aparecían como finos filamentos tubulares con el microscopio electrónico. Comprendían la estructura interna de cilios, flagelos, centriolos y cuerpos basales, y eran prominentes en el aparato mitótico de células en división. Filamentos tubulares también se encontraban con frecuencia en protozoos, glóbulos rojos nucleados y dendritas de neuronas. Irónicamente, el fijador usado entonces en microscopía electrónica, tetróxido de osmio, había estado disolviendo elementos filamentosos, de modo que su presencia se observaba sólo esporádicamente. Al igual que la coagulación inducida por fijadores del siglo XIX, que inducía estructuras fibrilares superfluas, el uso de tetróxido de osmio retrasó el reconocimiento del citoesqueleto. Más tarde, con el advenimiento de la fijación con glutaraldehído, se encontró que delicadas estructuras tubulares estaban presentes en virtualmente todos los tipos celulares y se las llegó a llamar microtúbulos. Haces de microtúbulos vistos con el microscopio electrónico correspondían a fibras birrefringentes vistas en células vivas. Su ubicuidad sugería que eran la subestructura fibrilar del citoplasma previamente predicha sobre bases teóricas. Después de cierto escepticismo, los microtúbulos fueron generalmente aceptados como “orgánulos domésticos” en casi todas las células estudiadas. La caracterización posterior de actina, filamentos intermedios, la retícula microtrabecular o “sustancia fundamental”, y la estructura de centriolos condujo al reconocimiento de que las células estaban compuestas por redes dinámicas de filamentos conectores y sacó al citoesqueleto del armario.
Microtúbulos
Soifer (1986):
Cuando una célula requiere microtúbulos para una función particular, los microtúbulos se ensamblan en la parte apropiada de la célula, con la orientación necesaria. Cuando los microtúbulos ya no son necesarios, se despolimerizan.
Funciones esenciales dentro de células vivas, que van desde amebas y paramecios unicelulares hasta neuronas dentro de lombrices de tierra y académicos Nobel, son realizadas por estructuras citoesqueléticas similares. Los elementos citoesqueléticos más visibles y ampliamente estudiados son los microtúbulos (MT), cilindros delgados íntimamente implicados en funciones celulares importantes. Así como el DNA es la base de datos genética común que contiene información hereditaria, los microtúbulos son ejecutivos en tiempo real de actividades dinámicas dentro de células vivas.
Estructura y Función de los Microtúbulos
Los microtúbulos (MT) son cilindros huecos de unos 25 nanómetros de diámetro cuyas paredes son arreglos polimerizados de subunidades proteicas. Sus longitudes pueden variar desde decenas de nanómetros durante el ensamblaje temprano hasta posiblemente metros en axones nerviosos dentro de animales grandes. Las subunidades proteicas se ensamblan en cadenas longitudinales llamadas protofilamentos; trece protofilamentos paralelos se alinean lateralmente para formar los “túbulos” huecos. Las subunidades son proteínas con forma de “mancuerna” (“dímeros”) que a su vez consisten en dos proteínas globulares (“monómeros”) conocidas como tubulina alfa y beta (Figura 5.4). Los monómeros de tubulina alfa y beta son moléculas similares con orientación idéntica dentro de protofilamentos y paredes tubulares. Cada monómero consiste en unos 500 aminoácidos, pesa alrededor de 55 kilodaltons (Capítulo 6), y tiene una polaridad local u orientación de carga. Los MT que crecen desde centros celulares tienen un extremo plus (tubulina beta) que se extiende hacia afuera desde el centro celular (“centrosoma”) hacia la periferia celular. El extremo minus (tubulina alfa) permanece anclado a un centro organizador de microtúbulos (MTOC) dentro del centrosoma. Cada dímero, así como cada MT, parece tener una polaridad eléctrica o dipolo, con el extremo negativo orientado hacia el monómero alfa y el centro celular, y el extremo positivo hacia el monómero beta y la periferia celular.

Figure 29: Figura 5.4 Los microtúbulos son cilindros cuyas paredes son 13 protofilamentos, cada uno una cadena de dímeros de tubulina de 8 nm. Los monómeros de tubulina alfa y beta forman los dímeros. Cada dímero tiene 6 vecinos. Por Fred Anderson.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica la geometría del microtúbulo, los dímeros de tubulina y la pared de 13 protofilamentos.
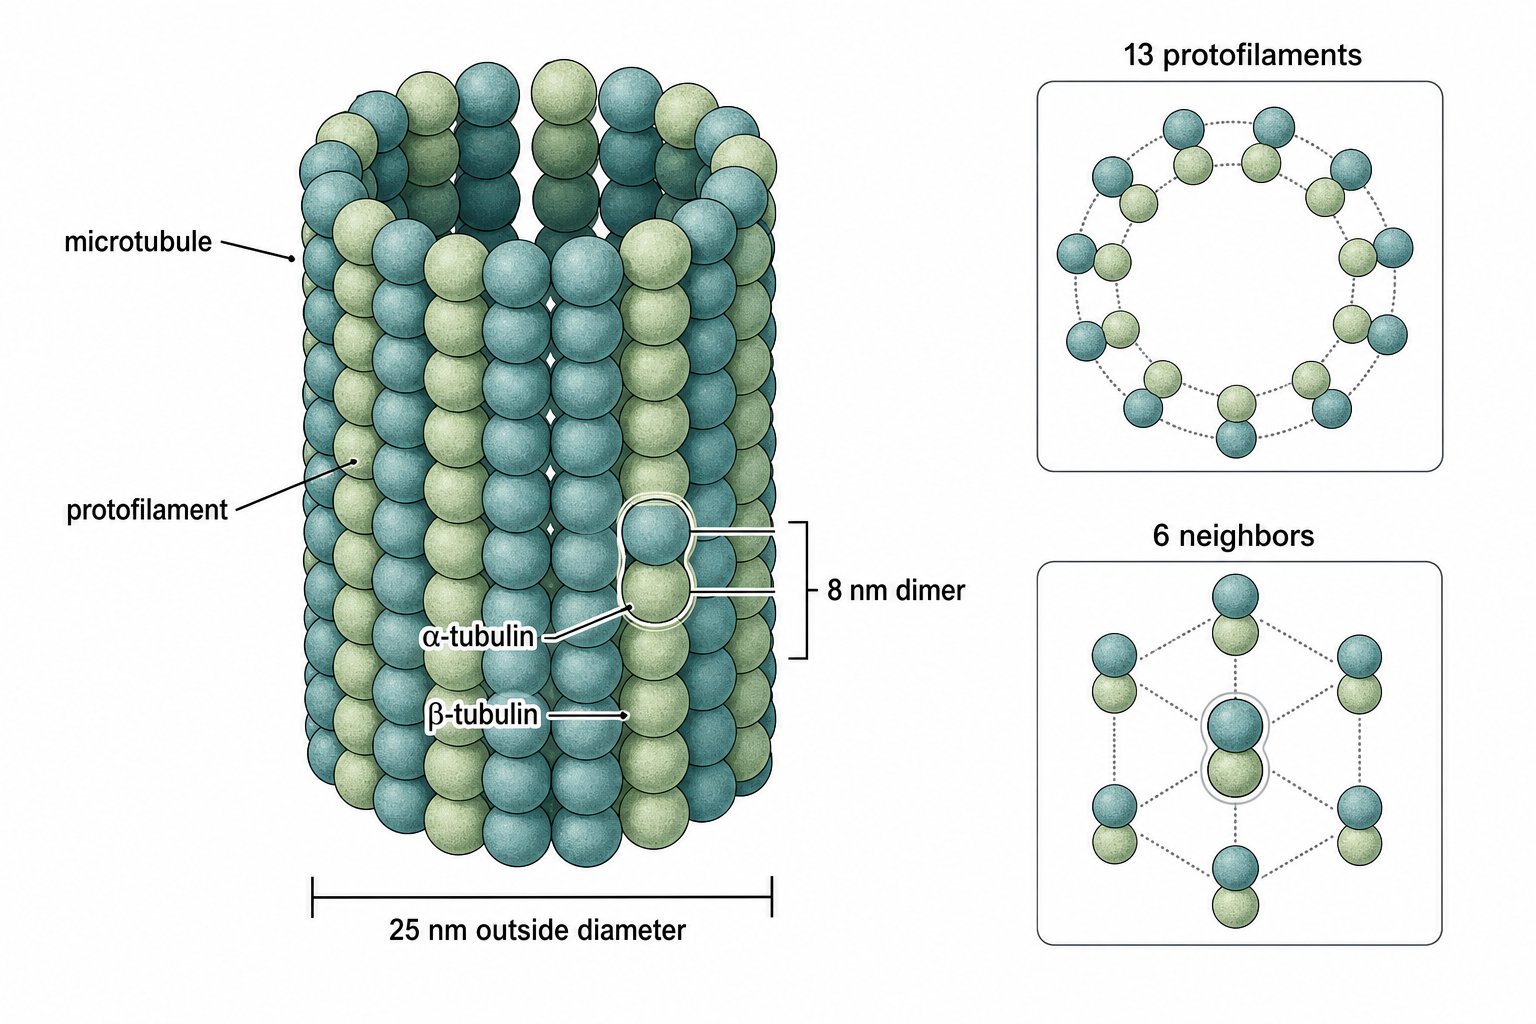
Los dímeros se mantienen juntos por fuerzas hidrofóbicas de Van der Waals relativamente débiles, tales como acoplamiento dipolar (Capítulo 6). Los dímeros vecinos forman retículas hexagonales con una inclinación hacia la “izquierda” y pueden discernirse varios patrones helicoidales en las relaciones entre dímeros. El empaquetamiento de simetría tipo cristal de la tubulina en microtúbulos ha sido evaluado por Djuro Koruga (1986), de la Molecular Machines Research Unit en la University of Belgrade, Yugoslavia (Capítulo 8).
Los MT de diferentes formas de vida tienen similitudes marcadas, pero diferencias sutiles. La comparación de MT de células nerviosas de lombrices de tierra y mamíferos muestra que los MT más primitivos de lombriz son más variables en estructura geométrica, con MT que van de 9 a 11 protofilamentos, mientras que los MT mamíferos generalmente tienen 13. Tubulinas de distintas especies, incluidos mamíferos y plantas, se unen a anticuerpos comunes y tubulinas de diferentes especies pueden coensamblarse en MT híbridos. A pesar de estos rasgos comunes, la diversidad de expresión génica de tubulina ha demostrado ser mucho mayor de lo imaginado años atrás. El análisis de tubulina por secuenciación de aminoácidos y técnicas electroforéticas avanzadas ha mostrado que múltiples tubulinas alfa y beta diferentes existen concurrentemente, con la mayor diversidad mostrada por la tubulina beta. Por ejemplo, Lee (1986) y colegas en St. Louis University han mostrado que existen hasta 11 formas diferentes de tubulina en microtúbulos de tiroides de rata y 17 formas diferentes en microtúbulos de cerebro de rata. Así, tubulina alfa y beta son familias de “isozymes”, cada una de las cuales puede tener funciones específicas o unión de proteínas asociadas a microtúbulos (MAPs). Otra variable de tubulina, detirosinación, ocurre en el citoplasma después de la transcripción de DNA. La detirosinación es la remoción del aminoácido terminal, tirosina, de la cadena polipeptídica que compone la tubulina beta. La remoción de tirosina expone un aminoácido ácido, glutamato. Factores locales en el citoplasma, independientes de programación genética, determinan si subunidades individuales de tubulina están “tirosinadas” o “glutamadas”. Marc DeBrabander (1986) y colaboradores en Janssen Pharmaceutica, Bélgica, han podido identificar subunidades específicas de tubulina dentro de microtúbulos ensamblados que están ya sea tirosinadas o glutamadas. Sus estudios elegantes muestran patrones heterogéneos de tubulina tirosinada y glutamada que podrían indicar una representación de información acoplada a funciones MT específicas por la acción de MAPs (Figura 5.5).

Figure 30: Figura 5.5 Microtúbulo doblemente marcado con anticuerpo contra tubulina e inmunooro. Círculos grandes, partículas de oro de 10 nanómetros, marcan tubulina glutamada; círculos pequeños, partículas de oro de 5 nanómetros, marcan tubulina tirosinada. Con permiso de Geuens et al. (1986), cortesía de Marc DeBrabander y Janssen Pharmaceutica Research Laboratories.
Desde los estudios tempranos de microscopía electrónica, los microtúbulos han sido descritos invariablemente como rodeados por una “zona clara” que da la impresión de un “halo” alrededor de ellos cuando se los observa en sección transversal. Una distancia de 5-10 nanómetros desde la superficie de MT está libre de sustancia fundamental citoplasmática o cualquier otro material normalmente visto en otras partes de la célula. Inicialmente se pensó que estos espacios claros eran artefactos de microscopía electrónica, o capas de proteínas filamentosas menos densas sobre la superficie de los microtúbulos. Sin embargo, técnicas más nuevas de fijación y tinción y freeze etching han confirmado que el espacio inmediatamente alrededor de los microtúbulos rara vez es invadido por otros orgánulos o sustancia fundamental citoplasmática. Stebbings y Hunt (1982) han estudiado la “zona clara” y señalan que la superficie de los microtúbulos es fuertemente “aniónica” ya que la tubulina es una proteína ácida debido a su alto contenido de aminoácidos ácidos como glutamato y aspartato. Estos aminoácidos entregan iones de hidrógeno cargados positivamente a la solución, dejando a los MT con exceso de electrones. Stebbings y Hunt proponen que campos aniónicos, o electronegativos, en superficies MT pueden explicar las zonas claras así como la tinción de MT por colorantes cargados positivamente, la unión a MT de proteínas cargadas positivamente, cationes como calcio, metales y otros compuestos. Campos electronegativos que rodean MT pueden actuar como capas excitables de carga iónica (“capas de Debye”) que también se piensa ocurren inmediatamente adyacentes a membranas celulares (Green y Triffet, 1985). Capas de carga excitables de “zona clara” junto a MT podrían facilitar mecanismos comunicativos colectivos dentro del citoesqueleto (Figuras 6 y 8).
La cuestión del núcleo hueco dentro de MT es aún más misteriosa; también parece desprovisto de sustancia fundamental. Se desconoce si los interiores de MT son también zonas electronegativas, o quizá positivas, que crearían gradientes de voltaje a través de las paredes MT. Del Giudice y colegas (1986), en la University of Milan, incluso han sugerido focalización electromagnética y “superconductividad” dentro de núcleos de microtúbulos (Capítulos 6 y 8). Aislados de los alrededores “acuosos” y mantenidos juntos por fuerzas hidrofóbicas excluyentes de agua, los MT y el resto del citoesqueleto componen una red de “estado sólido” dentro de células vivas.
¿Qué hacen los microtúbulos? Para empezar, son el citoesqueleto, siendo las estructuras más rígidas en la mayoría de las células. Para establecer el patrón del citoesqueleto y la forma y función de las células vivas, los MT se ensamblan a partir de subunidades en el momento, lugar y dirección apropiados. A menudo están anclados y guiados por centros organizadores de MT (MTOC) que contienen centriolos. Una vez en su lugar, participan en movimiento de citoplasma, orgánulos y materiales, crecimiento, reproducción, plasticidad sináptica y casi todos los ejemplos de actividad citoplasmática dinámica. Los mecanismos de organización MT son desconocidos, pero se han propuesto varias teorías de procesamiento de información basado en MT y serán descritas en el Capítulo 8.
Muchas funciones MT implican control y señalización de las actividades de proteínas adheridas, incluidas aquellas que interconectan MT en ensamblajes como centriolos, cilios y flagelos. El deslizamiento activo por puentes móviles adheridos a lo largo de MT está implicado en determinación de forma celular y extensión de proyecciones citoplasmáticas como conos de crecimiento neuronal, espinas dendríticas y lamelipodios de ameba. Estas extensiones contienen haces de filamentos de actina sin MT; sin embargo, los MT generalmente establecen la arquitectura que orienta estas extensiones, proporcionan sus materias primas, las anclan e integran sus funciones con la célula. En transporte citoplasmático, componentes que se mueven a lo largo de arreglos paralelos de microtúbulos citoplasmáticos entregan materiales celulares dondequiera que se necesiten. En procesos citoplasmáticos largos y asimétricos como axones nerviosos, mecanismos especializados de transporte axoplásmico han evolucionado para transportar constituyentes celulares a tasas de hasta cinco mil nanómetros por segundo. Los MT orquestan la fuerza motriz suministrada por brazos mecánicos de “dineína” para mover orgánulos que incluyen cromosomas, núcleos, mitocondrias, vesículas sinápticas neurotransmisoras, liposomas, fagosomas, gránulos, ribosomas y otras proteínas. El ensamblaje MT determina la forma y función de sistemas biológicos.
Los MT también participan en la percepción sensorial de los ambientes externos de la célula. Muchos receptores sensoriales son cilios modificados, ensamblajes de microtúbulos similares en estructura a centriolos. Mecanorreceptores de insectos y cilios sensoriales en nuestros oídos parecen utilizar MT para transducir fuerza mecánica a la base de cada cilio y hacia el sistema nervioso. Atema (1973) ha propuesto que la propagación de cambios conformacionales a lo largo de cilios sensoriales transmite información a la célula como totalidad. Moran y Varela (1971) han sugerido que los MT de cilios sensoriales actúan como motores impulsados hacia atrás. Cuando una fuerza externa mueve los microtúbulos del cilio mecanorreceptor, sugieren que los MT liberan iones como calcio que pueden regular actividades celulares. Transducción sensorial, guía y alineamiento son actividades MT “inteligentes” vitales para crecimiento biológico, desarrollo embriológico, secreción, formación de sinapsis y muchas otras funciones biológicas importantes. El control temporal y espacial del despliegue de MT se logra mediante dos mecanismos de formación de patrones: ensamblaje dirigido desde centros organizadores de MT (MTOC) y autoensamblaje de arreglos multitubulares por medio de enlazadores intertubulares (Figura 5.6). Los MT son los andamios, cintas transportadoras y computadores de las células vivas.

Figure 31: Figura 5.6 Arreglos de microtúbulos interconectados por puentes MAP. Los círculos huecos son arreglos MT en sección transversal. Por Paul Jablonka.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica vistas complementarias longitudinales y transversales de arreglos de microtúbulos enlazados por puentes MAP.
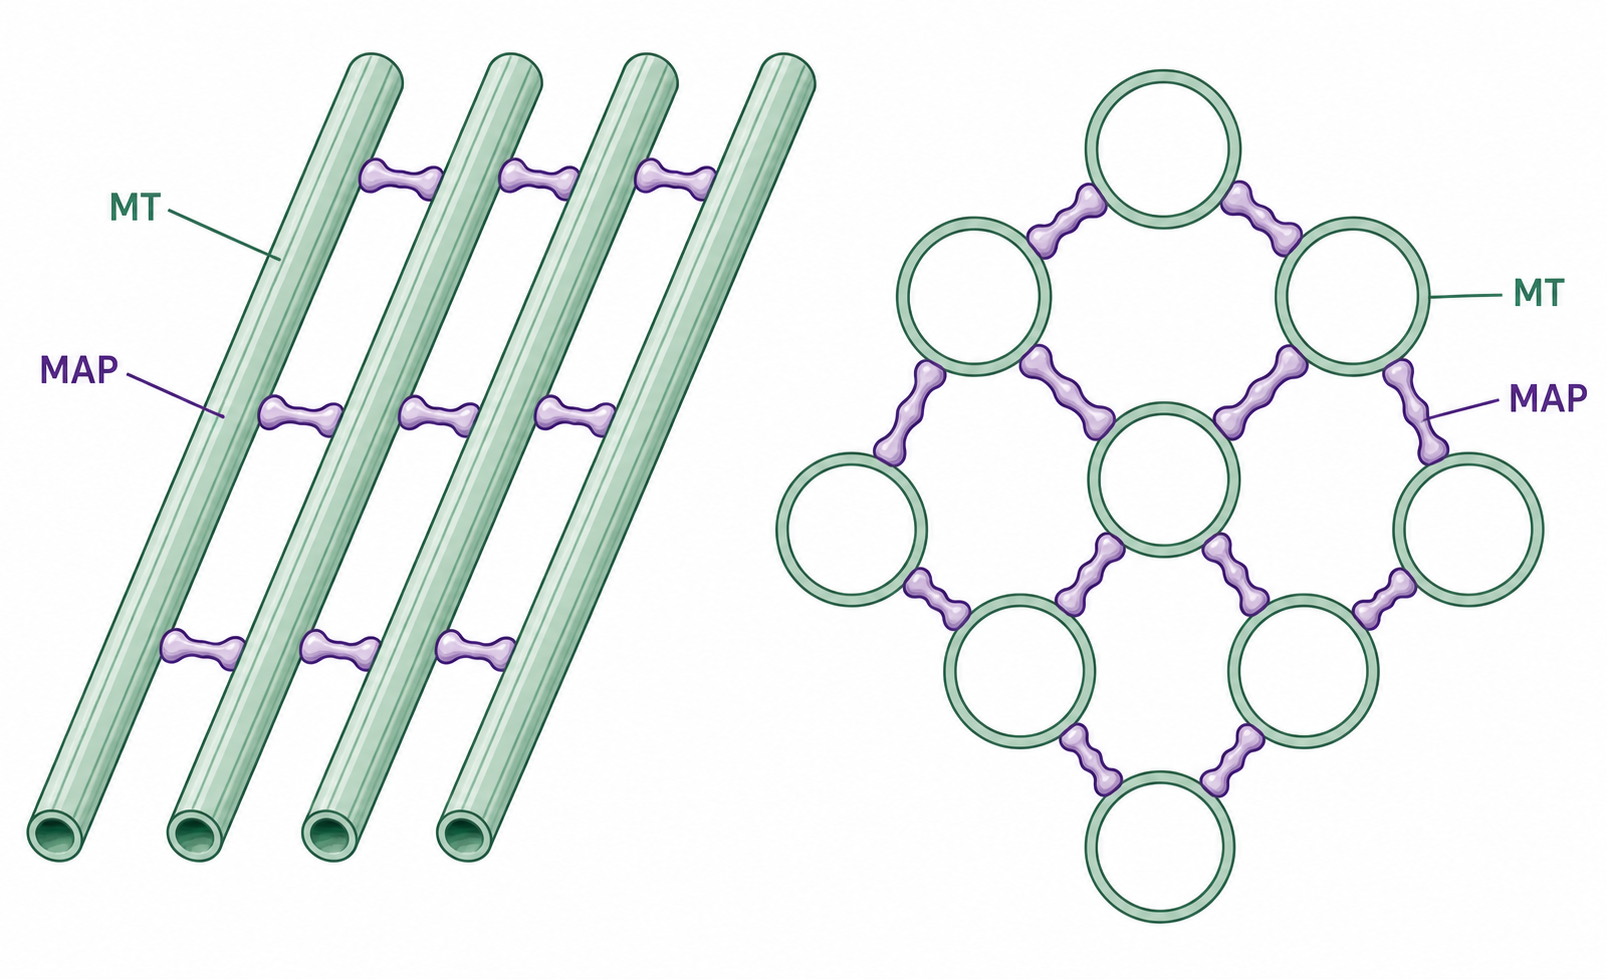
Ensamblaje de Microtúbulos y Generación de Forma
Como superestructuras celulares cambiantes, los MT pueden ensamblarse en varillas tubulares rígidas cuando y donde se necesitan, y luego desensamblarse en subunidades que pueden ser transportadas lejos por otros MT. Como muchos virus, los MT se autoensamblan a partir de sus subunidades en polímeros ordenados. El gran aumento de orden, o entropía negativa asociada con el ensamblaje MT, parecería fluir contra corriente frente a la segunda ley de la termodinámica que, en general, afirma que el orden tiende hacia el desorden. El aumento de orden observado durante el ensamblaje MT puede relacionarse con la dispersión (desordenamiento) de agua estructurada fuertemente ligada desde las subunidades a medida que polimerizan, consistente con el concepto de que las subunidades MT se asocian por interacciones hidrofóbicas (Capítulo 6).

Figure 32: Figura 5.7 Husos mitóticos de microtúbulos (filamentos tenues que separan cromosomas, barras gruesas) estableciendo polaridad de células hijas durante división celular. Centriolos y MTOC están en el nidus de cada arreglo. Con permiso de Marc DeBrabander (1982).
Los MT varían marcadamente en estabilidad y función. MT estructuralmente similares pueden ser muy estables o fugazmente transitorios. Esta variabilidad puede resultar de diferencias en química de tubulina, de efectos de proteínas secundarias adheridas en puntos específicos sobre retículas de superficie MT (proteínas asociadas a microtúbulos: MAPs), influencias citoplasmáticas locales, interacciones de membrana y muchos otros factores. MT altamente estables se encuentran en cilios y flagelos, donde se ensamblan en patrones complejos y llevan a cabo sus funciones sin desensamblaje. El otro extremo son los MT dentro de husos mitóticos que separan cromosomas y establecen la forma de células hijas en división celular (“mitosis”-Figura 5.7). Estos MT “lábiles” no sólo se ensamblan antes de la mitosis y se desensamblan después, sino que aparentemente experimentan desensamblaje/reensamblaje localizado durante la mitosis (“dynamic instability”). En algunas células animales y durante la mitosis de células vegetales, el ensamblaje de subunidades MT en MT parece ocurrir en el citoplasma sin relación alguna con un orgánulo particular. En otras células, estructuras que incluyen centriolos, cuerpos basales, centrosomas y cinetocoros facilitan el ensamblaje de microtúbulos en un sitio y orientación específicos. Estas estructuras se llaman centros organizadores de microtúbulos (MTOC), y consisten en un par de centriolos y un material granular denso. En general, los extremos cargados negativamente de MT se adhieren al MTOC, y los extremos cargados positivamente crecen distalmente al MTOC, estableciendo polaridad, forma y orientación celulares.
El proceso de ensamblaje MT puede rastrearse por parámetros que reflejan crudamente el nivel del polímero, tales como turbidez o viscosidad. Generalmente hay primero una fase de latencia cuando no se forman microtúbulos, luego una fase de crecimiento exponencial y finalmente una meseta estable. A bajas concentraciones no se forman microtúbulos. Por encima de cierta concentración crítica (Cc) de tubulina, los microtúbulos aumentan en relación con la concentración total de tubulina. Sin embargo, el ensamblaje MT es más complejo que estar simplemente en equilibrio con un pool de subunidades no ensambladas.
El ensamblaje espontáneo de dímeros de tubulina depende de condiciones fisiológicas que alteran la concentración crítica (Cc) de subunidades requeridas. El ensamblaje MT espontáneo depende así de muchos cofactores: concentración de ion calcio, temperatura, presencia de inhibidores o estabilizadores de microtúbulos (Figura 5.8), proteínas asociadas a microtúbulos (Figura 5.12), presencia de centros organizadores de microtúbulos (MTOC-Figura 5.9) y disponibilidad de GTP. Como ATP (adenosina trifosfato, requerido para ensamblaje de actina), GTP (guanosina trifosfato) es una fuente de energía bioquímica. Como se describirá en el Capítulo 6, ATP y GTP pueden donar cada uno energía de enlace fosfato al ser “hidrolizados” a sus “difosfatos”, ADP y GDP, respectivamente. En el caso del ensamblaje tanto de MT como de filamentos de actina, la presencia de GTP o ATP sin ser hidrolizado es un requerimiento importante para el ensamblaje. Análogos no hidrolizables de GTP son igualmente efectivos promoviendo ensamblaje de MT; hidrólisis e input de energía tienen lugar después de la incorporación de un dímero en un túbulo. MT formados con análogos no hidrolizables son más estables que aquellos con GTP, de modo que la energía de hidrólisis puede relacionarse con el desensamblaje. En filamentos de actina, la hidrólisis también ocurre después de la formación del polímero. Por tanto existe una paradoja: la unión de GTP se requiere para el ensamblaje de microtúbulos, pero la hidrólisis de GTP ocurre más tarde y no se requiere para el ensamblaje. Una situación idéntica ocurre con actina y ATP. El agotamiento de ATP (para actina) y GTP (para MT) inhibe fuertemente el desensamblaje, pero no obstaculiza el ensamblaje per se. Sin embargo, en células agotadas de energía prevalece ensamblaje aleatorio en vez de ensamblaje organizado. La energía de la hidrólisis de enlaces fosfato, la principal moneda energética en todos los sistemas biológicos, no está contabilizada dentro del citoesqueleto, el organizador dinámico de la función celular. Quizá la energía se usa para generar vibraciones comunicativas de retícula, excitaciones coherentes o “solitons” en MT y el citoesqueleto en general (Capítulos 6 y 8).

Figure 33: Figura 5.8 Efectos del fármaco de desensamblaje MT nocodazole en células PtK2. MT visualizados con método peroxidasa-antiperoxidasa (PAP). Arriba izquierda: MT organizados irradian desde región MTOC densa cerca del núcleo. Arriba derecha: células tratadas con nocodazole (2 x 10⁻⁵ M, 4 horas) y MT despolimerizados. Abajo izquierda: células lavadas después de nocodazole; 5 minutos más tarde MT creciendo desde MTOCs. Abajo derecha: células 20 minutos después del lavado han reorganizado el sistema MT. Con permiso de DeBrabander, Geuens, Nuydens, Willebrords y DeMey (1981).
El ensamblaje MT también requiere la presencia de ion magnesio y una baja concentración de ion calcio. El calcio es un sistema mensajero importante dentro de muchas formas de citoplasma. Ondas de calcio pueden ser causadas por actividades de membrana y citoesqueléticas, y pueden inducir cambios conformacionales en proteínas y disolver gel citoplasmático, convirtiéndolo a un estado más acuoso: “sol”. Los dímeros de tubulina unen laxamente 16 iones de calcio por dímero (Hayashi y Matsumara, 1975); un exceso de calcio, sin embargo, causa desensamblaje MT. En presencia de abundantes iones de zinc, la tubulina polimeriza en láminas planas expansivas antes que en cilindros.
Las subunidades diméricas alfa/beta tubulina están todas dispuestas en la misma dirección. La subunidad beta protruye en el extremo “plus” y contiene el sitio intercambiable de unión a GTP. La “Cc” para ensamblaje es menor en el extremo plus que en el extremo minus. En estado estacionario en presencia de GTP hidrolizable, se ve una incorporación neta de subunidades diméricas en el extremo plus, y una pérdida neta de subunidades diméricas en el extremo minus. Las subunidades se mueven así del extremo plus al extremo minus en MT, un fenómeno llamado “treadmilling”. En MT anclados en un extremo a centros organizadores, treadmilling es un movimiento neto de subunidades dentro de la retícula MT, y puede corresponder al componente lento de 1 milímetro por día del transporte axoplásmico. Los MT parecen así estar creciendo continuamente, quizá retorciéndose, a una tasa de unos 10 nanómetros por segundo. MT lábiles pueden polimerizar su camino a través del citoplasma, añadiendo GTP-tubulina en el extremo beta plus, y descargando GDP-tubulina en el extremo alfa minus. Estos tipos de MT pueden así comportarse como tractores móviles, orugas citoesqueléticas (Figura 5.10).
El desensamblaje o separación de subunidades diméricas de tubulina de MT se induce cuando dímeros terminales unen GDP. Cuando GTP se hidroliza, se pierde un grupo fosfato y guanosina trifosfato (GTP) se convierte en guanosina difosfato (GDP). Los dímeros unidos a GTP en extremos abiertos de MT (“capuchones” GTP) son estables: permanecen ensamblados. Sin embargo, cuando extremos abiertos de MT contienen subunidades que unen GDP, tienden a soltarse y acortar el cilindro MT. MT cuyos extremos distales tienen tubulina GDP expuesta, y no están anclados por estructuras como MTOC, se encogen y despolimerizan. Generalmente, los polímeros MT libres (los no anclados por MTOC) son “quiméricos”, con tramos de GTP no hidrolizado en los extremos (capuchones GTP) y GDP en el interior. Los polímeros en crecimiento tienen capuchones “protectores” de subunidades GTP en su extremo; los polímeros que se encogen pierden sus capuchones GTP y exponen subunidades GDP en el extremo, causando desensamblaje.
Los microtúbulos parecen existir así en dos poblaciones: la mayoría creciendo a una tasa apreciable y la minoría encogiéndose muy rápidamente y proporcionando nuevas subunidades para crecimiento. Este concepto ha sido llamado “dynamic instability”, con el encogimiento rápido de MT denominado “microtubule catastrophes” (Kirschner y Mitchison, 1986). Cuanto más rápida es la tasa de crecimiento, mayor el capuchón GTP y menor la probabilidad de que el capuchón desaparezca y el microtúbulo se despolimerice. Cuando el capuchón desaparece y quedan expuestas subunidades GDP, el polímero entra en una fase despolimerizante rápida (“catastrófica”). Los MT contienen trece protofilamentos paralelos y no está claro cuántas subunidades terminales de MT que contienen GTP o GDP expuestas se requieren para estabilidad o inestabilidad. Un factor esencial es la tasa de hidrólisis de GTP que resulta en tubulina GDP e induce desensamblaje. La utilización de energía de hidrólisis de GTP por MT y el citoesqueleto es una porción significativa del consumo energético biológico, aunque permanece poco apreciada. Teorías de regulación de estado conformacional proteico como solitons y excitaciones coherentes que podrían dar cuenta del consumo útil de energía de hidrólisis serán descritas en el Capítulo 6. Solitons, vibraciones coherentes de retícula y resonancia cooperativa presentan posibilidades para efectos colectivos y posiblemente inteligentes dentro de células.
Investigadores japoneses, Horio y Hotani (1986), han observado directamente MT que crecen y se encogen usando video microscópico de campo oscuro. Observaron que ambos extremos de un microtúbulo pueden existir ya sea en fase de crecimiento o de acortamiento y alternar con bastante frecuencia entre las dos fases de una manera aparentemente aleatoria. Además, extremos en crecimiento y acortamiento pueden coexistir en un solo microtúbulo: treadmilling. Un extremo puede continuar creciendo simultáneamente con acortamiento en el otro extremo. Los dos extremos de cualquier microtúbulo dado tienen características notablemente diferentes. Un extremo “activo” (presumiblemente el extremo beta, plus) crece más rápido, alterna de fase entre crecimiento y encogimiento con más frecuencia y fluctúa en longitud en mayor medida que el extremo inactivo. Las proteínas asociadas a microtúbulos (“MAPs”) suprimen la conversión de fase y estabilizan microtúbulos en la fase de crecimiento.
Hay muchos mecanismos aparentes para estabilizar microtúbulos polimerizados: pueden estar encapuchados o unidos a diversas estructuras. La unión en el extremo proximal a MTOCs estabiliza MT e impide su despolimerización en el extremo opuesto. Los MT necesitan estar estabilizados sólo en un extremo para predominar dentro de las células porque, incluso si se despolimerizan, otro se reformará en el mismo lugar y orientación (DeBrabander, 1985). Así, los MTOC proporcionan a las células un medio de retención selectiva de una subclase de MT específicamente orientados.
MTOC orientados en una dirección específica pueden determinar polaridad celular, incluida extensión de células en crecimiento embriológico, formación de apéndices exploratorios llamados filopodios en células locomotoras y crecimiento de procesos nerviosos. Señales en la periferia celular aparentemente causan una asimetría del citoesqueleto microtubular y de la polaridad celular global. ¿Cómo puede una pista periférica conducir a una reorganización profunda en la célula? Una explicación posible es que una señal sea retransmitida a través del citoesqueleto al MTOC, llevando a un cambio en su orientación y nucleación dirigida de microtúbulos. Otra es que una señal en la periferia afecte directamente la distribución MT. Puesto que todo el arreglo citoesquelético es dinámico, quizá sólo sea necesario estabilizar transitoriamente un subconjunto particular de microtúbulos para que el arreglo citoesquelético celular se transforme rápidamente. Kirschner y Mitchison (1986) han propuesto que el arreglo dinámico de microtúbulos explora muchas regiones al azar. Al estabilizar ciertas configuraciones MT a medida que surgen, creen que la célula puede llegar a una estructura que no está definida precisamente por información genética, sino que se adapta para cumplir un papel funcional particular.
El reordenamiento estructural dinámico del citoesqueleto MT parece requerir inteligencia. Como el cerebro en su totalidad, la inteligencia citoesquelética tiene rasgos de conexionismo, paralelismo, distributedness y jerarquía. Los aparentes comandantes citoesqueléticos son los MTOC, cuyas estructuras críticas son los orgánulos que pueden haber secuestrado la evolución: centriolos.
Centros Organizadores de Microtúbulos (MTOC) y Centriolos. 93
Los MTOC y sus componentes principales, los centriolos, son el aparato específico dentro de células vivas que dispara y guía la reorganización del citoplasma, como ocurre durante crecimiento, generación de forma y función (“diferenciación”) y movimiento celular. Los enigmáticos MTOC determinan dónde, cuándo y cómo ocurren estas funciones (Figura 5.11).
Los MTOC (o “centrosomas”) contienen centriolos y “sustancia pericentriolar” que facilita el ensamblaje de tubulina al bajar de algún modo Cc. Los centriolos son la estructura común en todos estos centros celulares de control. Los centriolos están compuestos de dos cilindros similares; sus diámetros son de 0,2 micrones o 200 nanómetros. Cada cilindro posee una simetría radial de 9 partes y está construido esencialmente de 9 tripletes de microtúbulos fusionados longitudinalmente. “Satélites”, proteínas electrodensas, parecen orbitar los centriolos. Una estructura filamentosa tipo rueda de carro (“pinwheel”) conecta todos los microtúbulos dentro de cada centriolo en un extremo. Un centriolo engendra otro por replicación perpendicular a la superficie cilíndrica del centriolo. El primer paso en la división celular es la maduración de la célula “madre”, seguida por separación de pares de centriolos y migración para establecer la arquitectura de células “hijas”. Los mecanismos centriolares de replicación perpendicular, orientación y guía son desconocidos.

Figure 34: Figura 5.9 Microtúbulos en célula mitótica PtK2 marcados con inmunooro de tubulina tirosina. La región del polo del huso (MTOC), a la izquierda, es un foco para MT del huso que irradian hacia cromosomas (material oscuro). Inserto arriba derecha: MT de cinetocoro fijando cromosoma. Con permiso de Geuens, Gundersen, Nuydens, Cornellisen, Bulinski, DeBrabander (1986).
Entre ciclos de división celular (“interfase”), el sistema MT es relativamente quiescente y “radial”. La mayoría de los MT celulares están anclados en un extremo al MTOC, aunque no parecen contactar ninguna estructura. Más bien, los extremos minus de MT son estabilizados de algún modo por el “material pericentriolar”. Esto favorece el ensamblaje MT y protege contra el desensamblaje al unir y encapuchar el extremo minus de MT. La mayor parte de la tubulina está polimerizada durante la interfase; sin embargo, MT libres que no irradian desde el MTOC ocurren cerca de la periferia de la célula. Excepto por MT libres, la red es bastante estable, con bajas tasas de recambio y mínimo treadmilling y dynamic instability.
Durante la “profase”, el citoesqueleto se prepara para la separación de cromosomas duplicados de modo que la célula pueda hacer una copia de sí misma. DeBrabander (1985):
Parece que la naturaleza seleccionó un mecanismo casi a prueba de fallos basado en microtúbulos para permitir que la célula eucariótica maneje bibliotecas genéticas cada vez más complejas.

Figure 35: Figura 5.10 Modelo de acción MTOC de DeBrabander. Arriba izquierda: un centriolo está rodeado por un material denso que baja Cc, la concentración crítica de tubulina requerida para ensamblaje de microtúbulos. Al comienzo de la mitosis, nuevos MT son nucleados preferencialmente cerca del MTOC. Arriba derecha: placas de cinetocoro asociadas con cromosomas también tienen el material que baja Cc, pero anclan extremos plus; se forman nuevos MT. Medio: los extremos minus de MT son estabilizados por el material denso pericentriolar y los extremos plus crecen hacia afuera. MT libres no están estabilizados y permanecen cortos debido al consumo de subunidades de tubulina por MT estabilizados por MTOC. Abajo: MT estabilizados se deslizan unos sobre otros para separar cromosomas. Con permiso de Marc DeBrabander (1982).

Figure 36: Figura 5.11 Microtúbulos en células PtK2 ilustrados por anticuerpo contra tubulina en dos magnificaciones diferentes. El núcleo (izquierda) está desprovisto de MT, que emanan densamente desde MTOC cercano. Con permiso de Geuens, Gundersen, Nuydens, Cornellisen, Bulinski y DeBrabander (1986).
A medida que los cromosomas se condensan en profase, el sistema MT cambia su despliegue y tasa de recambio. Los MT de interfase se acortan gradualmente mientras nuevos MT comienzan a crecer desde el centrosoma. En este punto, el sistema es extremadamente sensible a inhibidores de polimerización. Fármacos usados contra el cáncer son a menudo inhibidores mitóticos que impiden la rápida polimerización de MT de profase desde MTOC. Los cinetocoros son MTOC móviles que fijan cromosomas y unen MT en su extremo plus (Figura 5.10). Los MT se ensamblan entre centrosomas (que unen su extremo minus) y cinetocoros (que unen su extremo plus) y separan el material genético hacia los polos de las células hijas en el ciclo mitótico. El delicado arreglo de los dos centriolos, husos MT conectados y “proyecciones astrales tipo estrella” (MT que “sobrepasan” los centriolos) ha sugerido a muchos observadores algún tipo de campo electromagnético por la semejanza con un patrón de campo magnético. El anillo contráctil formado perpendicular al eje de la mitosis por la retícula microtrabecular establece un surco de clivaje que separa las células hijas. El material cromosómico se descondensa mientras una nueva membrana nuclear se cierra sobre él como una cremallera, y los elementos celulares asumen de nuevo un aspecto organizado. Más tarde, las células se aplanan y reasumen gradualmente su forma normal de interfase.

Figure 37: Figura 5.12 Representación esquemática de una proteína asociada a microtúbulo (MAP, líneas oscuras) que facilita el ensamblaje de un microtúbulo (MT). La unión longitudinal retarda la disociación de subunidades y estabiliza la estructura MT. Con permiso de DeBrabander, DeMey, Geuens, Nuydens, Aerts, Willebrords y Moerman (1985).
Los MTOC/centriolos están implicados en orientación, forma, timing de división y crecimiento. Con MT y otras estructuras citoesqueléticas, los MTOC/centriolos determinan qué hacen las células, cuándo y cómo lo hacen, ¡y qué clase de células son! ¿Son los MTOC los centros de mando del citoesqueleto? El Capítulo 3 describió la posición significativa de centriolos y MT en la evolución, y el Capítulo 8 describirá teorías que explican las capacidades enigmáticas de los centriolos. Estas incluyen la consideración (Bornens, 1979) de que los centriolos oscilan rotacionalmente con una inercia giroscópica que detecta y establece la orientación celular respecto de células vecinas, tejido, ambiente, campos de gradiente químico, gravedad y quizá otros factores. Los centriolos parecen ser un ancla relativamente inmóvil alrededor de la cual otros elementos citoesqueléticos se mueven y organizan. Bornens sugiere que los centriolos se comunican con redes de filamentos de actina propagando efectos conformacionales y así regulan actividades celulares. Otra teoría de centriolos ha sido presentada por Guenter Albrecht-Buehler (1977, 1985), de Northwestern University, quien propone que los centriolos detectan señales (como infrarrojo, ultrasonido, microondas) que se propagan linealmente por todo el citoplasma. Albrecht-Buehler ha considerado los principios de diseño para un detector direccional de señales en nanoescala y encuentra que los centriolos son apropiados. Los centriolos, o sus híbridos futuros, pueden tener aplicaciones tecnológicas interesantes (Capítulo 10).
Proteínas Asociadas a Microtúbulos (MAPs)
El rango completo de funciones MT se logra por las acciones de diversas proteínas que se unen en formas precisas a dímeros específicos de tubulina en retículas MT. Estas proteínas asociadas a microtúbulos (MAPs) incluyen enzimas electromecánicas que generan fuerza y movimiento, puentes cruzados comunicativos hacia otros filamentos citoesqueléticos y orgánulos, MAPs que aumentan el ensamblaje MT (Figura 5.12) y una clase de MAPs dentro de neuronas cuyas funciones no se comprenden.
En muchos casos, los patrones de adhesión de MAPs a paredes de retícula MT tienen una configuración geométrica precisa que parece relacionada con la función del complejo MAP-MT (Figuras 5.13 a 5.16). Por ejemplo, Allen (1979, 1985) y colegas mostraron que el paso suave de vesículas en transporte axoplásmico requiere MAPs contráctiles espaciadas entre 15 y 25 nanómetros a lo largo de longitudes MT. Muchos otros patrones de unión MAP son espirales que rodean cilindros MT en superhélices, y varias teorías sugieren cómo pueden determinarse estos sitios. Estas incluyen secuenciación lineal de isozymes variables de tubulina a lo largo de protofilamentos (Kim, 1986), simetría cristalina que describe cada terreno MAP (Figura 5.17, Koruga, 1986) o los pasos de retícula necesarios para ir de un sitio MAP a su vecino MAP más cercano. Por ejemplo, micrografías electrónicas de unión MAP-MT por Burns (1978) muestran claramente unión MAP que puede describirse como “over 3, up 1”. Es decir, si la subunidad de tubulina a la cual está unida la MAP es el punto de partida, moverse 3 monómeros a lo largo de la hélice de fila hacia la izquierda y luego subir 1 monómero a lo largo del protofilamento indicará el siguiente sitio de adhesión. Se han observado varios patrones superhelicoidales geométricos que coinciden con otras reglas de movimiento tipo “ajedrez”. Estos se muestran en las Figuras 5.12-5.15. En otros casos, como MAPs cerebrales, los patrones de adhesión son irregulares y heterogéneos, y por tanto son capaces de representar información.

Figure 38: Figura 5.13 Patrones de adhesión de MAP a microtúbulos observados por microscopía electrónica (Burns, 1978; Kim et al., 1986; y otros).
Puentes en forma de varilla que ocurren entre MT son de al menos dos clases. “Brazos” proteicos productores de movimiento que consumen energía de hidrólisis de ATP para generar fuerza son análogos a puentes de miosina de músculo esquelético. Brazos móviles adheridos a MT están hechos de proteínas llamadas kinesina y dineína. Brazos de dineína en MT que se contraen en secuencias organizadas para producir movimientos colectivos fueron descritos y caracterizados por primera vez en cilios y flagelos por Ian Gibbons (1968). Los brazos residen a intervalos periódicos a lo largo de los MT externos dentro de cilios y flagelos. Poseen “actividad ATPasa”, es decir, se contraen conformacionalmente debido a hidrólisis de ATP. Los brazos de dineína se contraen en ondas y median deslizamiento entre los túbulos externos adyacentes para impulsar motilidad ciliar y flagelar. Brazos de dineína adheridos a MT en axones neuronales actúan colectivamente para pasar material en transporte axoplásmico de “cadena de cubos”. Estos y otros “bending sidearms” MT serán discutidos en la Sección 5.5.2.
Otras MAPs son puentes entre MT paralelos, filamentos, orgánulos y la “retícula microtrabecular”, y parecen integrar microtúbulos con el resto del citoplasma (Figura 5.6). MAPs de neuronas de cerebro mamífero han sido caracterizadas en tres grupos principales. Estos son MAP 1 y MAP 2 de alto peso molecular (mayor que 100 kilodaltons), y un número de proteínas estrechamente relacionadas de 56-62 kilodaltons designadas como “tau”. Estudios en ratas muestran un aumento en número y una distribución alterada de las diversas formas de tubulina, MAPs de alto peso molecular y tau que se correlacionan con desarrollo y aprendizaje del cerebro de rata. Tanto MAP 2 como tau son termoestables, estimulan la polimerización MT (bajan Cc) y comparten dominios de unión en MT intactos; son familias proteicas heterogéneas cuyas funciones son desconocidas. MAP 2 está concentrada en cuerpos celulares y dendritas de neuronas, se encuentra en una proporción de MAP 2 a tubulina de uno a doce, ocurre sólo en pequeñas cantidades en axones y está ausente en glía. A la inversa, tau cerebral está confinada en gran medida a axones. Tanto MAP 2 como tau son fosforiladas por quinasas proteicas dependientes de AMP cíclico, proteínas que amplifican efectos de iones de calcio. Los niveles intracelulares de iones de calcio, a su vez, están regulados por diversas señales extracelulares, incluidos neurotransmisores, hormonas y factores eléctricos, para regular forma celular, motilidad, procesos secretorios y otras funciones. Así, estas MAPs pueden mediar inputs diversos hacia el citoesqueleto. Cada MAP adherida a un MT puede funcionar como una “sinapsis” en una red paralela lateralmente interconectada.

Figure 39: Figura 5.14 Patrones de adhesión MAP.

Figure 40: Figura 5.15 Patrones de adhesión MAP.

Figure 41: Figura 5.16 Patrones de adhesión MAP.
La heterogeneidad de tau varía durante el desarrollo cerebral y estos cambios resultan en el predominio de diferentes polipéptidos tau en corteza cerebral madura y cerebelo. Binder, Frankfurter y Rebhun (1986) proponen que los sitios de unión MAP 2 resultan de formas genéticamente determinadas de tubulina que son predominantes en cuerpos celulares neurales y dendritas, mientras que los dominios de unión tau son especificados por tubulinas axonales. Sospechan que diferentes especies de tau que aparecen durante el desarrollo pueden anunciar la diferenciación citoesquelética de subpoblaciones axonales únicas cuyos MT están comprometidos con tareas ligeramente diferentes. La variabilidad y responsabilidades de MAPs pueden ser extensas. Son apéndices funcionales, vínculos estructurales y comunicativos (“arbiters”), e integradores esenciales de función citoesquelética y celular.

Figure 42: Figura 5.17 Patrones de adhesión MAP como parte del código de información de microtúbulos de Koruga (1986) (Capítulo 8). Con permiso de Djuro Koruga.
Filamentos Intermedios
Los principales componentes filamentosos del citoesqueleto son MT, filamentos de actina, filamentos intermedios (IF) y una clase de fibrillas interconectoras delicadas llamada retícula microtrabecular (MTL), que será descrita más adelante en este capítulo. Aquí se revisan los miembros “desconocidos” del citoesqueleto, los filamentos intermedios (Lazarides, 1980). Los filamentos intermedios representan el subgrupo más nebuloso y químicamente variable dentro del citoesqueleto. Se han distinguido cinco clases de IF, construidas a partir de polipéptidos que contienen sobre todo dominios de varilla en hélice alfa (Capítulo 6). Bajo el microscopio electrónico, los IF aparecen como filamentos no ramificados, relativamente carentes de rasgos, de 8-12 nanómetros de ancho. El tratamiento con ciertos agentes fijadores puede hacer que los IF se desenrollen en varios protofilamentos de 2-3 nanómetros, o protofibrillas de 4-5 nanómetros cuyo número puede variar de filamento a filamento, e incluso a lo largo del mismo filamento. Los IF pueden formarse por enrollamiento paralelo de los dominios de hélice alfa y, bajo algunas circunstancias, pueden formar una red poligonal con una repetición de 52 nanómetros de filamentos de 8-10 nanómetros de ancho. Estos también pueden agregarse en arreglos semejantes a cristales con bandas transversales espaciadas 24 nanómetros. Como tales, los IF pueden estar implicados en estructuras descritas de otro modo como retícula microtrabecular, o citomatriz.
Lazarides (1980) ha mostrado que diferentes tipos de IF se asocian con tipos específicos de células. Por ejemplo, la estructura de subunidad define cinco clases principales de IF: 1) queratina (“tonofilaments”), que se encuentra en células epiteliales, 2) filamentos de desmin, encontrados predominantemente en células de músculo liso, esquelético y cardíaco, 3) filamentos de vimentin, encontrados en células mesenquimales, 4) neurofilamentos, encontrados en neuronas (Figura 5.18), y 5) filamentos gliales, encontrados en células gliales. A menudo dos o más de estas clases coexisten en la misma célula.
Los neurofilamentos parecen funcionar como una retícula estructural tridimensional que proporciona resistencia tensil a los axones. El axoplasma extrudido es un gel altamente estructurado rico en neurofilamentos; la exposición del gel al ion calcio resulta en degradación de neurofilamentos y conversión del gel a un estado sol más acuoso, un fenómeno atribuido generalmente a la disolución de filamentos de actina.
Todos los IF, incluidos los neurofilamentos, parecen estar fosforilados, aunque no se comprende la función que esto podría servir. Los IF son una clase distinta, separada de MT y filamentos de actina, y Lazarides argumenta que sus propiedades bioquímicas y morfológicas indican que están implicados en integrar mecánicamente los diversos componentes del espacio citoplasmático. Los IF siguen siendo mal comprendidos; su densa presencia en neuronas es misteriosa, quizá participan de algún modo en las funciones cognitivas del sistema nervioso. En el Capítulo 8, se describirá la teoría de Barnett de los neurofilamentos como bancos de memoria de “string transform” acoplados a MT.

Figure 43: Figura 5.18 Corte transversal de axón nervioso pequeño. A. Microtúbulos con MAPs radiales. B. Neurofilamentos, superando en número a los microtúbulos en torno a 10:1. C. Vesícula transportada por transporte axoplásmico microtubular. D. Gel de actina/neurofilamento entrecruzado (retícula microtrabecular). E. Capas de mielina. F. Filamin encuadrando actina. Por Paul Jablonka.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica los componentes del corte axonal: capas de mielina, microtúbulos con MAPs radiales, neurofilamentos abundantes, vesículas, retícula y detalle filamina-actina.
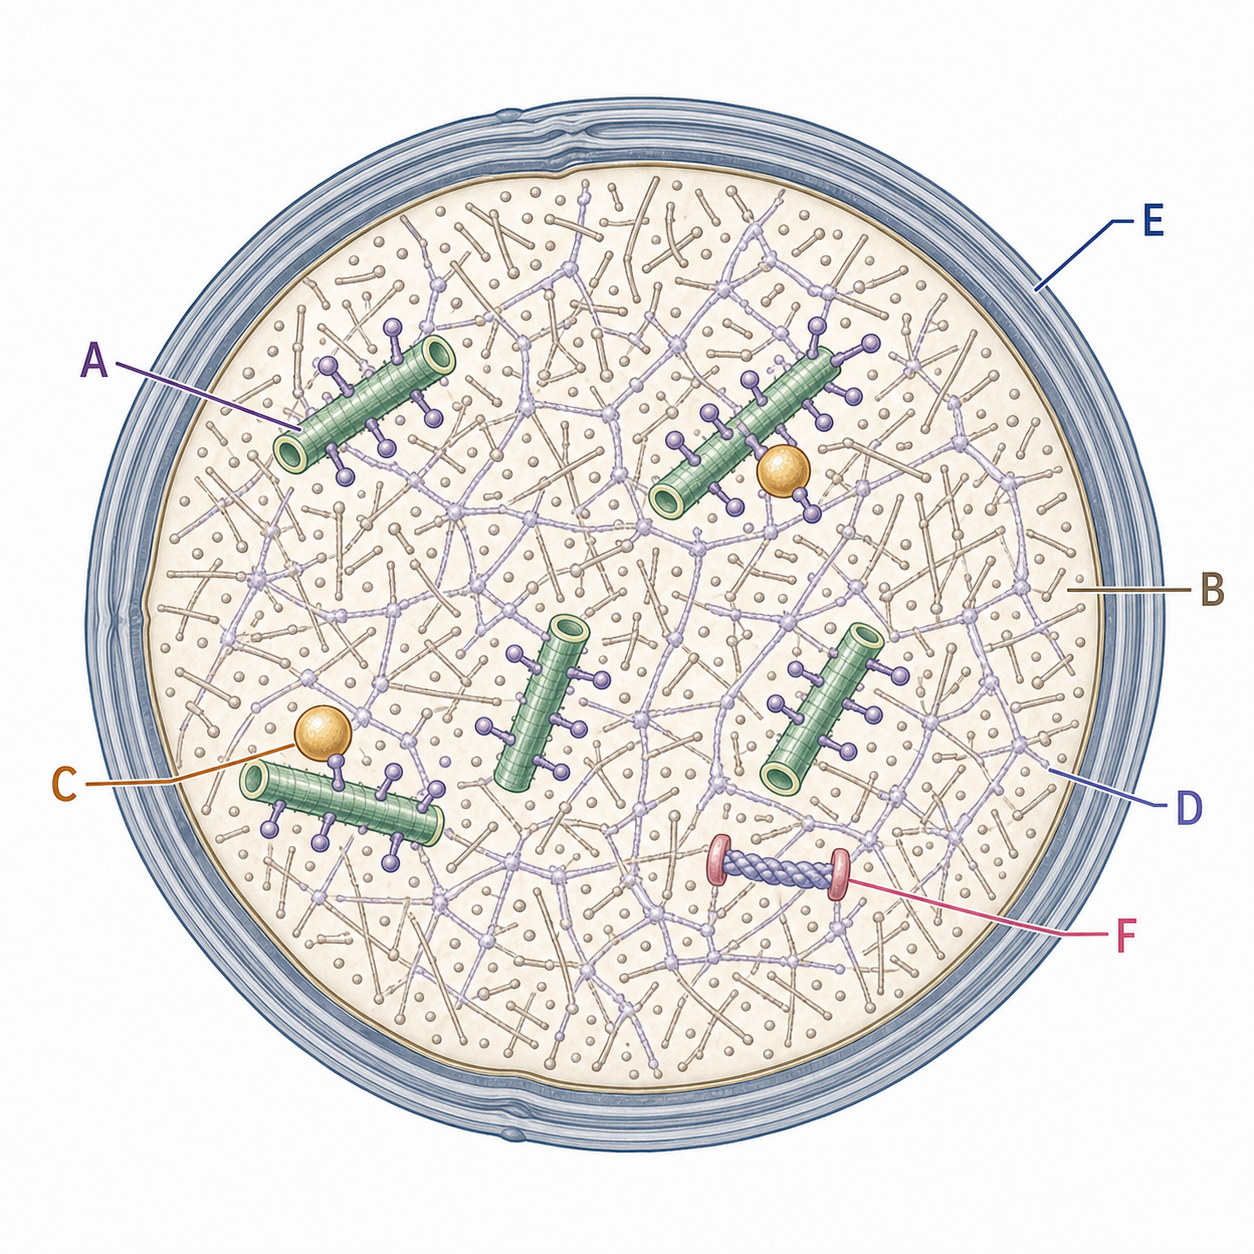
Sustancia Fundamental Citoplasmática
MT e IF no son la textura más fina de la organización citoplasmática. Estructuras más pequeñas y delicadas se ramifican e interconectan en redes de estado “gel” que componen la sustancia del material vivo.
Tres sistemas distintos de componentes citoesqueléticos han sido bien caracterizados: MT, IF y filamentos de actina. La actina es el componente más versátil. En conjunción con otras proteínas puede polimerizar en filamentos tipo cuerda, formar redes dinámicas ramificadas en nanoescala o poliedros geodésicos. Aún más evanescentes que los MT lábiles, el ensamblaje de actina y proteínas asociadas crea configuraciones transitorias de citoplasma para propósitos específicos. Las raíces de la inteligencia bien podrían estar fundamentadas en expresiones citoplasmáticas dinámicas como anillos contráctiles que dividen el citoplasma en la división celular, lamellipodia exploratorios, y espinas dendríticas y sinapsis en neuronas.
La naturaleza y estructura del “piso básico” de organización, la sustancia fundamental citoplasmática, ha sido explorada desde varias orientaciones, resultando en descripciones solapadas. Estas incluyen la retícula microtrabecular, la citomatriz y el estado sólido citoplasmático.
La Retícula Microtrabecular (MTL)
Nuevas técnicas en microscopía electrónica desarrolladas por Keith Porter y colegas (1981) en la University of Colorado at Boulder han llevado a la observación de una retícula tridimensional irregular de hebras delgadas por todo el citoplasma, interconectando casi todo en la célula. Los filamentos interenlazados parecen suspender los diversos sistemas celulares, orgánulos y elementos citoesqueléticos mayores como microtúbulos y filamentos con un material de matriz continuo con los filamentos individuales de la retícula. La retícula sugiere la estructura trabecular del hueso esponjoso y fue llamada retícula microtrabecular (MTL, Figura 5.19).
Porter y colegas aprovecharon las propiedades del microscopio electrónico de alto voltaje en Boulder. Este dispositivo masivo es capaz de acelerar electrones a través de una caída de potencial de un millón de voltios, diez veces la de los microscopios electrónicos estándar. El voltaje extra da a los electrones energía suficiente para penetrar especímenes gruesos o incluso células intactas de hasta varios miles de nanómetros de espesor. Previamente, las células tenían que cortarse en secciones más delgadas que 200 nanómetros, y los artefactos debidos a destrucción celular eran más prevalentes. El microscopio electrónico de alto voltaje proporciona más información sobre la profundidad, dando una visión tridimensional de la organización celular. Otra innovación, el método de secado de punto crítico (Ellisman, 1981), evita el efecto distorsionador de la tensión superficial que causa que las células colapsen cuando se secan al aire. La microscopía electrónica de alto voltaje y el secado de punto crítico han demostrado ahora la MTL en todas las células eucarióticas que han sido examinadas.
La MTL es una retícula tridimensional de hebras delgadas llamadas microtrabéculas. Van de 4 a 10 nanómetros de diámetro con longitudes de 10 a 100 nanómetros. La MTL es una red finamente organizada que divide la sustancia fundamental en dos fases, una fase polimerizada rica en proteína que comprende la MTL, y una fase fluida rica en agua que llena los espacios intratrabeculares. A alta magnificación, se ve que las microtrabéculas de la sustancia fundamental entrecruzan muchos elementos en el citoplasma. Por ejemplo, conectan microtúbulos con el retículo endoplasmático liso. La MTL no sólo entrecruza, sino que parece estar dinámicamente activa en mover elementos a través del citoplasma. La MTL dinámica mueve material de manera saltatoria a velocidades equivalentes al transporte axoplásmico. Un copionero con Porter en la observación de la estructura fundamental citoplasmática, Mark Ellisman (1981) de la University of California at San Diego, ha observado que MT y filamentos son análogos a elementos esqueléticos rígidos como hueso, y que la retícula microtrabecular puede equipararse apropiadamente con componentes productores de trabajo como la musculatura esquelética. Así, Ellisman sugiere que una descripción más apropiada de la MTL podría ser “citomusculatura”.
En neuronas, hebras tenues de MTL irradian desde MT y neurofilamentos en ángulo recto hacia el citoplasma, a menudo interconectando MT con otros MT y neurofilamentos con neurofilamentos. En la sinapsis, la MTL parece íntimamente implicada tanto en la liberación de neurotransmisor como en mecanismos receptores postsinápticos. Las terminales presinápticas demuestran un notable entrecruzamiento MTL entre vesículas sinápticas y entre vesículas y membranas sinápticas. En la MTL de dendrita postsináptica, son visibles enlaces entre densidades subsinápticas filamentosas y los otros elementos del citoplasma dendrítico. Donde el citoplasma axonal entra en regiones sinápticas, ocurren transiciones en la forma de la MTL. En axones, los enlaces cruzados se exhiben claramente entre MT, filamentos y otros componentes. Sin embargo, en terminales presinápticas y dendritas, la red MTL es más similar en estructura a geles aislados de actina-miosina observados en células no neuronales. Raymond Lasek (1981) de Case-Western Reserve University ha mostrado que el citoplasma de conos de crecimiento de axón nervioso, que difiere del citoplasma axonal, se convierte rápidamente desde la variedad axonal a la variedad de cono de crecimiento en axones separados de sus cuerpos celulares. Así, factores “locales” parecen capaces de transformar axoplasma en citoplasma de terminal sináptica, o axoplasma en citoplasma de cono de crecimiento. La MTL es la estructura fina y textura del citoplasma.
Las actividades de la MTL parecen depender de la concentración de ion calcio. El trabajo de Ellisman muestra que la exposición a calcio elevado causa que la MTL se acorte y deforme, dejando extremos libres o “nubbins”. En axoplasma normal, diferentes formas de MTL correspondientes a concentraciones tanto altas como bajas de ion calcio parecen encontrarse concurrentemente. Estas pueden corresponder con estados “sol” y “gel” determinados por otras técnicas. Ellisman sugiere que el calcio puede ser el agente de acoplamiento para los aspectos dinámicos de la MTL en términos de localización, extensión y forma de los puentes cruzados de constituyentes celulares. El calcio regulado por estructuras citoesqueléticas, o membranas, y la MTL misma pueden ser localmente dinámicos y pautados. Ondas estacionarias, patrones disipativos u hologramas “hardwired” en la MTL podrían ser representaciones de estados acoplados al calcio en el citoplasma.

Figure 44: Figura 5.19 Retícula microtrabecular (MTL) en citoplasma de célula PtK2. Pueden verse microtúbulos (uno ascendiendo de izquierda a derecha en la parte inferior) en el fondo de la retícula microtrabecular (MTL). Dos partículas de oro de 40 nanómetros están atrapadas en una vesícula dentro de la MTL. Con permiso de DeBrabander (1985).
Ellisman plantea la cuestión de la importancia del citoesqueleto y la MTL en el sistema nervioso. Una consideración es la modulación de eventos relacionados con membrana, como la actividad de receptores y la extrusión de neurotransmisor. Ellisman propone que la MTL es disparada por iones de calcio para liberar vesículas de neurotransmisor. Además, la MTL participa en otras funciones citoesqueléticas que también implican MT y filamentos. Estas son transporte axoplásmico, recambio y mantenimiento de proteínas de membrana y receptores, y disponibilidad de neurotransmisores y enzimas en sinapsis. Ellisman ha predicho algunas de las funciones y/o comportamiento del citoesqueleto y la MTL dentro del sistema nervioso. Estas son: 1) la MTL es un sustrato para mantener cambios de forma celular, incluida la formación sináptica, y para regular propiedades excitables de neuronas. Un ejemplo serían cambios en distribución y volumen de espinas dendríticas y sinapsis, con implicaciones para conexiones sinápticas y quizá aprendizaje y memoria. Así, la MTL y otros elementos citoesqueléticos pueden modificar la función sináptica participando en mantenimiento trófico y recambio de proteínas de membrana para modular excitabilidad de membrana y señalización neuronal. 2) La MTL, según Ellisman, también puede amortiguar pequeñas moléculas e iones, manteniéndolos en localizaciones y patrones especializados para funciones metabólicas y eléctricas. Así, la MTL puede compartimentalizar la célula, formando regiones cuyos ambientes pueden variar. El amortiguamiento y control del flujo de ion calcio puede ser particularmente importante, y relacionarse directamente con funciones cognitivas. 3) La MTL puede diferenciar zonas específicas de citoplasma y membrana, por ejemplo controlando los tipos de receptores o canales en zonas sinápticas mediante enlaces citoesqueléticos específicos. La MTL y el citoesqueleto también controlan la distribución de orgánulos, por ejemplo impidiendo que el retículo endoplasmático entre en axones, restringiendo el aparato de Golgi a zonas perinucleares y manteniendo el bouton sináptico con la composición correcta de axoplasma. 4) La MTL puede mediar desarrollo embriológico o morfogénesis a través de enlaces con receptores hormonales específicos o factores tisulares que resultan en variaciones en patrones de desarrollo. 5) La MTL puede transducir trabajo químico o mecánico para transporte intracelular y procesos como transporte axoplásmico y translocación de vesículas sinápticas a sitios de liberación en la membrana presináptica. Para Ellisman, la MTL regula el resto del citoesqueleto y la célula en general. En su visión, es la sustancia fundamental dinámica capaz de comportamiento inteligente. Uno podría argumentar, sin embargo, que los MT regulan la MTL. Lo más significativo es la cuestión de cómo se comunican.
El más lábil y transitorio de los niveles citoesqueléticos de organización, la MTL es la microfrontera actual de la organización del material vivo. La MTL es una red dentro de una red de proteínas citoesqueléticas que, en el caso del sistema nervioso, es una red dentro de una red de neuronas. En el Capítulo 8, se discutirá un modelo de procesamiento de información en el cual la MTL representa patrones de ondas estacionarias de estados sol-gel acoplados al calcio resultantes de excitaciones dinámicas del citoesqueleto. Excitaciones coherentes en el citoesqueleto podrían resultar en ondas estacionarias “holográficas” que pueden ser el nivel inferior de una jerarquía de información: “infoplasm”. Una imagen analógica en la cual la MTL es tanto pintura como lienzo podría ser la textura de la conciencia.
La Citomatriz
Otros han observado la estructura fina del citoplasma y la han descrito en términos diferentes. Entre ellos está Peter Satir (1984) de Albert Einstein University, cuyo trabajo se ha centrado en la composición proteica y organización funcional de la MTL, o “citomatriz”. Satir ve una integración funcional de la citomatriz, señalando que las interacciones proteína-proteína tienen consecuencias geométricas además de bioquímicas y biofísicas. Ciertas interacciones ocurren sólo en los extremos de polímeros citoesqueléticos, otras requieren o producen arreglos paralelos de tales elementos al interactuar sólo con sus superficies laterales, y otras aún pueden requerir arreglos ortogonales. En concierto con centriolos, MTOC y MT, las estructuras citoplasmáticas aparecen y funcionan donde y cuando se las necesita.
El bloque constructivo primario de la citomatriz/MTL parece ser la actina, una proteína ubicua cuya versatilidad describe la naturaleza misma del citoplasma. La interacción con una variedad de otras proteínas (“actin-binding proteins”) libera las capacidades completas de la actina. Cuando es entrecruzada por proteínas como fimbrin, la actina puede formar haces rígidos que proporcionan soporte estructural. Cuando se asocia con miosina (una “mecanoenzima”), ocurre una contracción útil similar a la muscular. También son importantes proteínas como talin, spectrin, vinculin, ankyrin y fodrin, que conectan la citomatriz con proteínas de membrana, y calmodulin, que media efectos de flujos de ion calcio sobre la citomatriz.
Proteínas como alpha actinin, troponin y filamin enlazan actina en redes que causan una consistencia gelatinosa al citoplasma: un “gel” (Figura 5.20). En presencia de iones de calcio y proteínas fragmentadoras de actina como villin y gelsolin, la red de gel se licúa a una solución: “sol”. Otras proteínas reguladoras de actina incluyen proteínas encapuchadoras de actina, que estabilizan actina polimerizada y promueven una condición “gel”, y profilin, que une subunidades de actina, impide la polimerización y mantiene condiciones “sol”. La capa de citoplasma inmediatamente debajo de las membranas celulares está en un estado gel continuo (“gel cortical”), pero en otros lugares pueden ocurrir transiciones dinámicas. En presencia de miosina, los geles de actina pueden sufrir contracción y flujo, que son importantes en movimientos citoplasmáticos como la locomoción ameboide. La miosina parece tirar de filamentos de actina unos contra otros. Un aumento en ion calcio causa una caída abrupta en la viscosidad de redes de actina, a través de proteínas fragmentadoras de actina como gelsolin. El mismo aumento en calcio activa la miosina para tirar de filamentos de actina unos contra otros, resultando en contracción del gel y flujo vigoroso en regiones “sol” adyacentes. George Oster (1984) de la University of California at Berkeley ha descrito un mecanismo para movimiento ameboide en el cual ondas de ion calcio disparan regiones sol/gel transitorias. El flujo neto de material es hacia el flujo de calcio, que sirve para arrastrar la célula hacia adelante.

Figure 45: Figura 5.20 Componentes de la citomatriz. El ensamblaje de actina y proteínas relacionadas forma estados “gel” citoplasmáticos. A) actina monomérica, B) filamentos de actina ensamblados que son pares helicoidales de hebras monoméricas; centro: corte transversal de filamento de actina, C) la presencia de filamin (hebras oscuras) causa entrecruzamiento de actina y un “estado gel” denso, D) calcio y/o proteínas fragmentadoras de actina causan licuefacción a un “estado sol”. Por Paul Jablonka.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica la secuencia A-D desde monómeros de actina hasta filamentos helicoidales, gel entrecruzado por filamina y sol provocado por calcio o fragmentación.
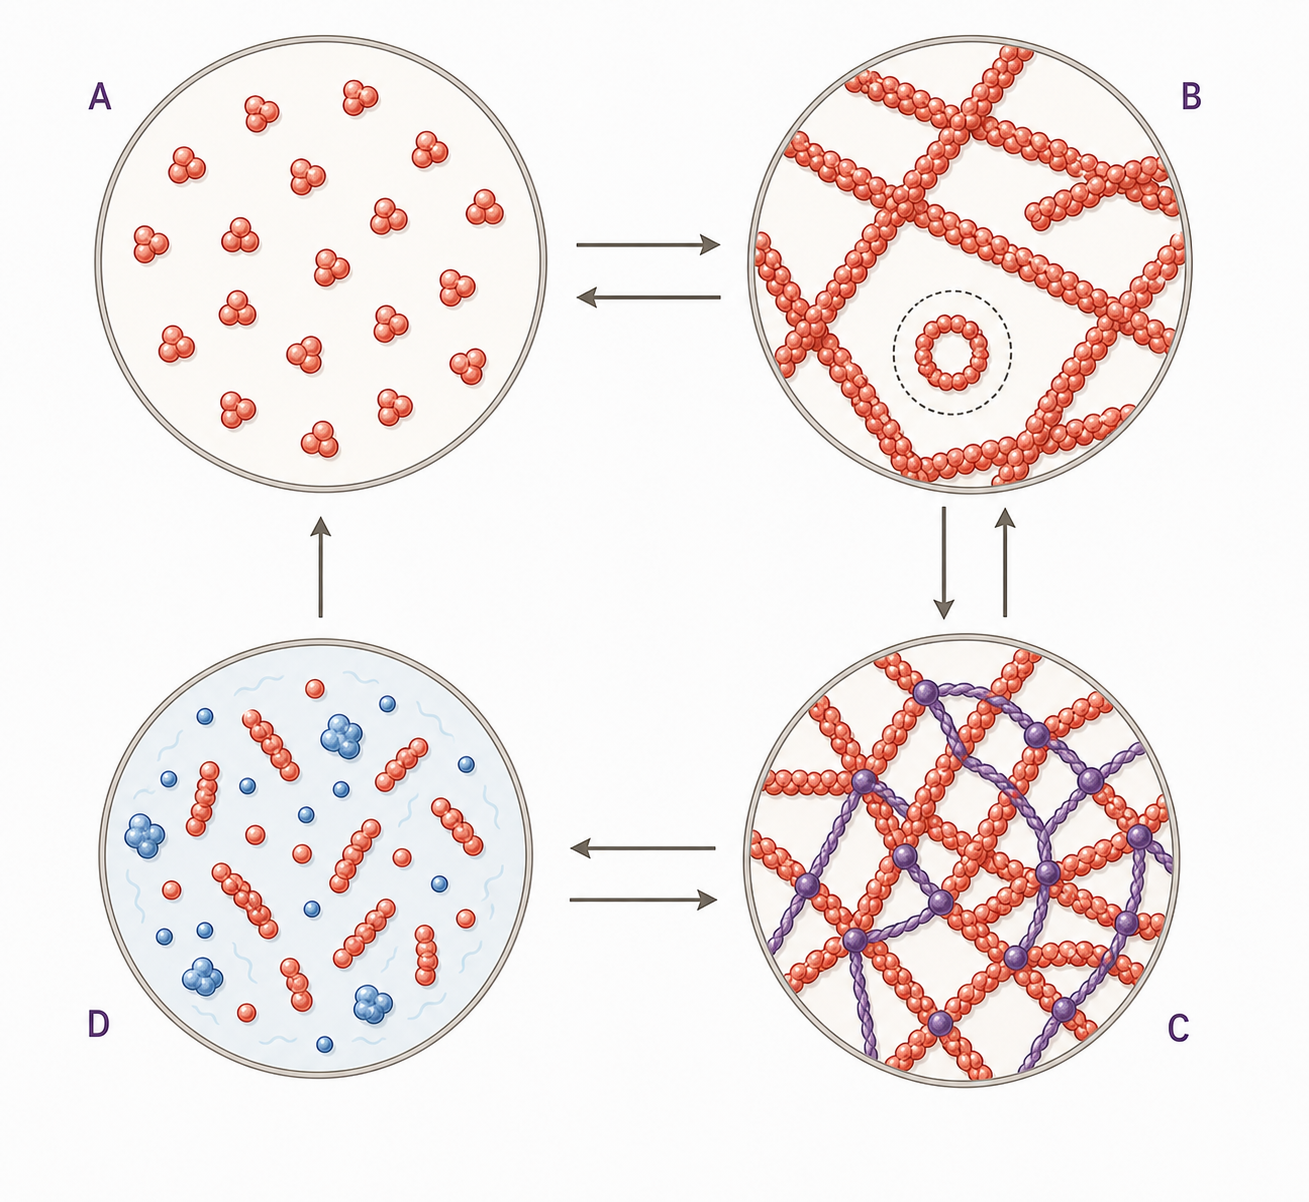
Las estructuras de la citomatriz dan lugar a movimiento ameboide y otros tipos de movimiento citoplasmático, así como a estructuras poliédricas. La transición sol-gel mediada por calcio y la contracción del gel pueden ser importantes en muchas funciones celulares, incluyendo quizá la representación transitoria de información de corto plazo y memoria dentro de neuronas.
Estado Sólido Citoplasmático
Moléculas como proteínas y RNA están heterogéneamente distribuidas por todo el citoplasma y fluyen pasivamente a tasas por debajo de lo esperado para difusión normal. Moléculas transportadas activamente, como las llevadas por transporte axoplásmico, viajan a velocidades muy superiores a la difusión. Inicialmente, la difusión lenta de biomoléculas que no son transportadas activamente se explicó sobre la base de barreras y canales de la citomatriz. Sin embargo, Gershon, Porter y Trus (1985) estudiaron la difusión molecular a través del citoplasma y llegaron a una conclusión diferente. Encontraron que el citoesqueleto/citomatriz/MTL comprendía del 16 al 21 por ciento del volumen citoplasmático, y que el área superficial del citoesqueleto/citomatriz/MTL era de 69.000 a 91.000 micrones cuadrados por célula (69 a 91 mil millones de nanómetros cuadrados). Sus datos han sido interpretados para sugerir que el “estado sólido” celular (citoesqueleto/citomatriz/MTL) no es una barrera a la difusión, puesto que la fase acuosa ocupa 4/5 del volumen celular. Concluyen que proteínas y otras moléculas están dinámicamente unidas al estado sólido, dando cuenta de la difusión lenta (Figura 5.21).
El biólogo James Clegg (1981) ha discutido cómo la unión de enzimas “solubles” al estado sólido podría dar cuenta de la eficiencia de diversos procesos enzimáticos. Una secuencia de enzimas en una vía bioquímica compleja es mucho más eficiente si está físicamente arreglada de modo que ocurra una cascada de productos de reacción. Si el producto de una enzima es el precursor para su enzima vecina, el tiempo de transferencia se minimiza y las reacciones se facilitan útilmente. Esto también permite la posibilidad de regulación dinámica de estas enzimas por las estructuras de estado sólido. Clegg también ha acumulado evidencia respecto del papel del agua dentro del citoplasma, particularmente rodeando estructuras de estado sólido. Usando difracción de neutrones y otras técnicas, Clegg ha encontrado que el agua adyacente a la citomatriz está “ordenada”, es decir, alineada con enlaces polares en las superficies proteicas. Así, una capa de agua ordenada se extiende al menos 3 nanómetros desde los miles de millones de nanómetros cuadrados de área superficial de estado sólido dentro de cada célula. Esta agua ordenada puede estar acoplada por oscilación dipolar a dinámicas del estado sólido, inhibir la disipación térmica de energía de oscilación proteica desde dentro del estado sólido y blindar calcio y otros iones frente a interacciones aleatorias de estado sólido. Clegg también sugiere que capas adicionales de agua ligeramente menos ordenada (“vicinal water”) que se extienden más lejos del estado sólido limitarían la verdadera agua “acuosa” dentro de células a estrechos “canales de aguas residuales” celulares.

Figure 46: Figura 5.21 Enzimas intracelulares “solubles” (círculos) gobernadas por la retícula microtrabecular (MTL: oscuro sólido) y la región fronteriza de agua ordenada y vicinal (dentro de la línea delgada). El círculo oscuro es parte de una vista en corte transversal. Clegg (1981) ha propuesto que la actividad dinámica dentro de la MTL puede regular la actividad enzimática. Por Paul Jablonka.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica círculos de enzimas solubles sostenidos en agua ordenada/vicinal junto a superficies sólidas de la retícula microtrabecular.
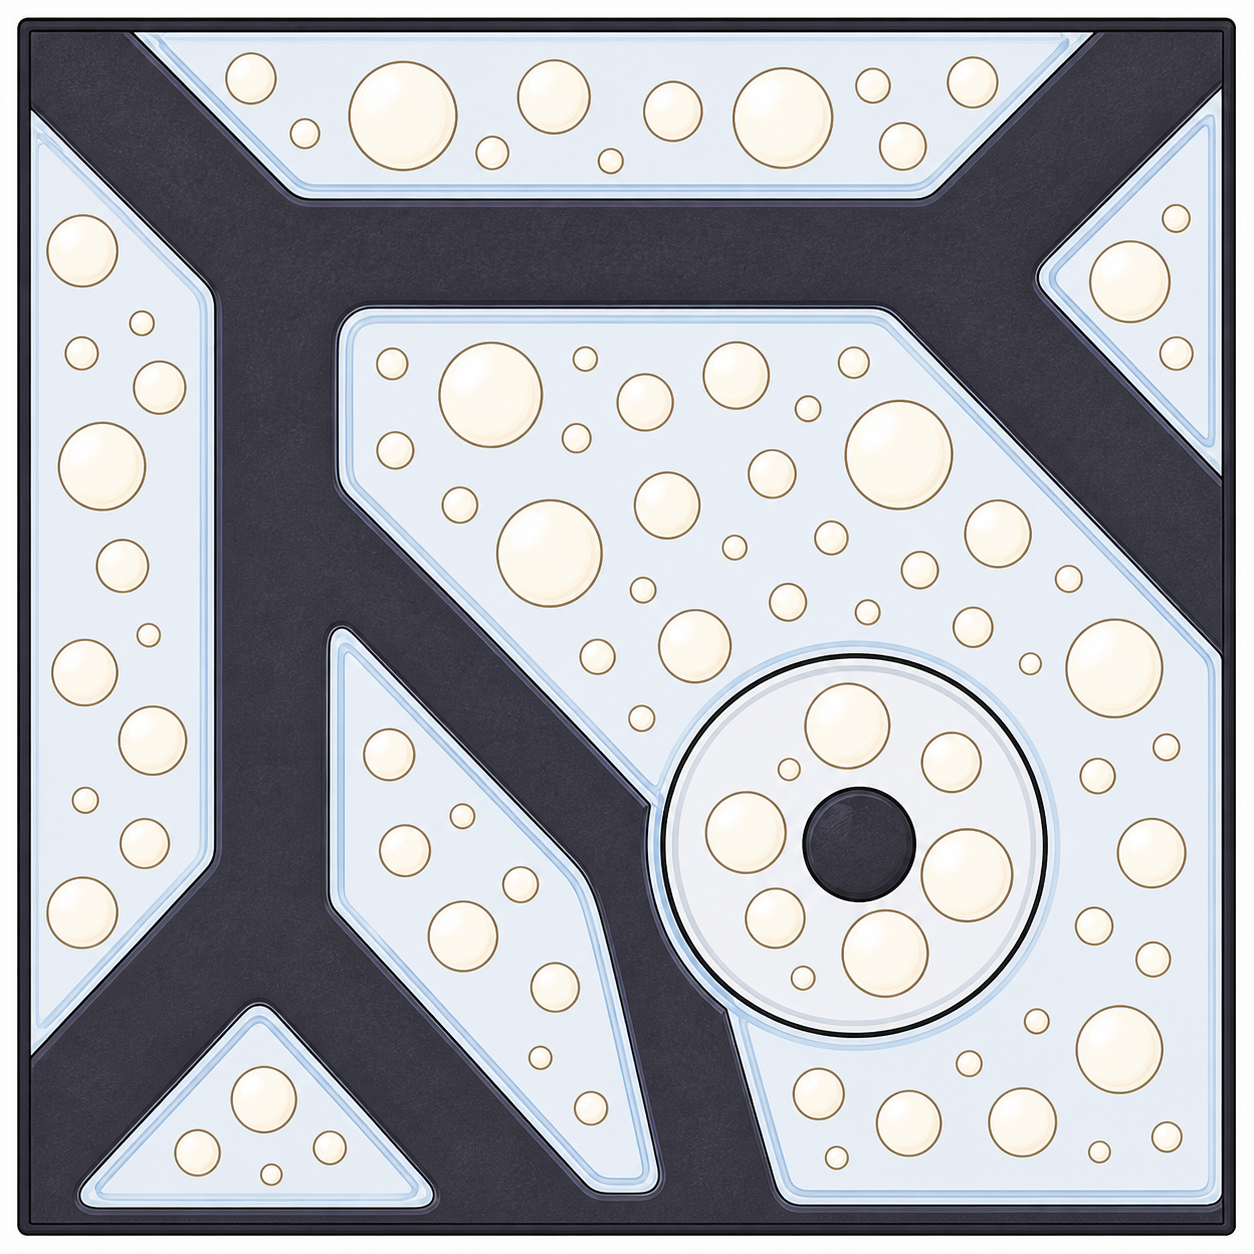
Motilidad Citoesquelética
Albrecht-Buehler (1985):
El movimiento celular … parece estar determinado por alguna clase de computador químico, cuya naturaleza está más allá de nuestra comprensión presente.
La motilidad celular fue descubierta por van Leeuwenhoek, quien observó células espermáticas impulsadas por flagelos nadando en el siglo XVII. Una variedad de movimientos citoplasmáticos incluye reptación “ameboide” sobre una superficie, flujo interno, transporte axoplásmico, contracción muscular, flexión ciliar y flagelar, y cambios de forma celular. Estas maniobras son todas diseñadas por un grupo relativamente pequeño de proteínas cuyos efectos colectivos netos pueden ser bastante espectaculares. Por ejemplo, linfocitos y macrófagos son glóbulos blancos que combaten la infección migrando desde el torrente sanguíneo a una herida abierta para engullir bacterias invasoras o material extraño. Células de embriones en desarrollo realizan movimientos precisamente coreografiados que dan lugar a diferentes tejidos. Movimientos internos como el flujo del citoplasma, la secreción de vesículas de producto celular (es decir, neurotransmisores), el engullimiento de materia y la separación de cromosomas pareados en la división celular son funciones rutinarias cuya complejidad, organización y precisión generalmente dejan perplejos a los biólogos.
También, la contracción muscular bien controlada que depende de la flexión conformacional de moléculas de cabeza de miosina puede resultar en correr esforzadamente una milla en 4 minutos, o pintar delicadamente una Mona Lisa. Se considerarán cuatro categorías de movimiento citoplasmático y generación de fuerza, con atención a sus mecanismos reguladores. Estas son: sondeo citoplasmático, bending sidearms, movimientos ciliares y colectivos, y estructuras geodésicas de tensegrity.
Sondeo Citoplasmático
A comienzos del siglo XX, W. H. Lewis, un embriólogo del Carnegie Institute of Washington, tomó películas time-lapse de células cultivadas en cultivo (Lazarides y Revel, 1979). Lewis trató los fibroblastos (células activas que reparan heridas) con enzimas de escisión proteica para romper contactos adhesivos y redes de material extracelular que mantenían juntas las células. Separó los grumos resultantes e hizo crecer células individuales en un medio nutriente. Después de unas horas, los fibroblastos de Lewis habían adquirido una forma poligonal. A lo largo del lado más corto del polígono había lamellipodia, delicadas extensiones laminares del citoplasma. Exclamó: “los lamellipodia rizados se doblan lentamente hacia atrás y hacia adelante como los volantes de un vestido en una brisa ligera” (Lazarides y Revel, 1979). Más tarde, Ingram y Abercrombie en University College London estudiaron el lamellipodium rizado recubierto de membrana, el principal órgano de locomoción de los fibroblastos. El lamellipodium forma hilos y contactos con el sustrato sobre el cual reposa la célula, estirando porciones del resto de la célula entre varias adhesiones temporales. Cuando la célula está extendida en toda su amplitud mantiene uno o dos rizos primarios, cada uno de los cuales tiende a conducir la célula en una dirección particular. La célula migra entonces con cambios de dirección que típicamente ocurren a intervalos de varias horas. Si un rizo no se adhiere y la célula se mueve en otra dirección, el rizo se pliega sobre la superficie superior de la célula, colapsa sobre ella y desaparece dentro de la célula (Figuras 5.22, 5.23 y 5.24).

Figure 47: Figura 5.22 Movimiento ameboide en una serie time-lapse por U. P. Roos en la University of Zurich. 1a) Lamellipodia exploratorios (puntas de flecha) en dirección #a del movimiento celular. Fibra de retracción (flecha) muestra el extremo posterior de la célula. b) El citoplasma ha fluido para llenar lamellipodia. c) Filopodia semejantes a dedos (flecha) sondean dirección. d) El citoplasma avanza, moviendo la célula. Con permiso de U. P. Roos (1984).
Usando el microscopio electrónico, Lazarides y Revel (1979) describieron el lamellipodium como una lámina algo irregular de citoplasma de alrededor de una décima de micrómetro (100 nanómetros) de espesor. Está decorada a lo largo del borde por pequeñas protrusiones que se parecen a dedos romos, que se fijan a la superficie de la placa y pueden extenderse rápidamente varias veces su longitud inicial en filopodia tipo varilla. Estas son estructuras altamente dinámicas que pueden cambiar de un estado fluido a uno rígido en menos de un segundo en virtud del ensamblaje repentino de filamentos de actina. Al crecer desde la superficie celular, proporcionan guías espaciales entre las cuales la membrana celular y el citoplasma fluyen para formar el rizo. Los filopodia se fijan al sustrato y se vuelven rígidos, o se funden de nuevo dentro de la célula. La célula se adhiere a la superficie bajo ella sólo en unos pocos sitios distintos, de modo parecido a una mano contactando una mesa sólo con las puntas de los dedos. Contactos permanentes del rizo con el sustrato resultan en placas de adhesión; a medida que la célula se mueve, las placas se forman y rompen continuamente. Además de su papel en adhesión y motilidad celular, los rizos y particularmente los filopodia sirven una función sensorial. En el embrión en desarrollo, cuando el filopodium de una célula nerviosa migratoria hace contacto con la superficie de otra, las células dejan de moverse una hacia la otra. Similarmente, cuando el filopodium de una célula extendiéndose en cultivo tisular toca la superficie de una célula que ya está aplanada, la membrana de la primera célula fluirá en una dirección opuesta al punto de contacto. Este tipo de regulación sensible de procesos de crecimiento es defectuoso en célula cancerosa maligna.

Figure 48: Figura 5.23 Organización citoplasmática de una célula cultivada moviéndose hacia la derecha. Microtúbulos (MT) irradian desde el centrosoma (C), localizado cerca del núcleo (N), elementos de Golgi (G) y lisosomas (L). Mitocondrias (M) y retículo endoplasmático (ER) están alineados a lo largo de MT. Vacuolas fagocíticas y pinocíticas (P) y vesículas secretoras (V) se mueven a lo largo de MT entre el centrosoma y la periferia. Filamentos intermedios (IF) aproximadamente paralelos a MT. Fibras de estrés (SF) son los anclajes citoplasmáticos para fibras de matriz extracelular (MF) que contactan el sustrato. En el borde delantero de la célula en movimiento, lamellipodia y filopodia, compuestos de haces y redes de actina, sondean el futuro. En el extremo posterior, fibras de retracción (RF) contienen haces de actina y filamentos intermedios. Con permiso de Marc DeBrabander (1982) y Janssen Pharmaceutics Research Laboratories.
El biólogo de Northwestern University Guenter Albrecht-Buehler (1977, 1980) ha estudiado citoplasma aislado y contempla comportamiento inteligente. Los ejemplos incluyen los movimientos de organismos unicelulares alternando entre movimientos de volteo y suaves (Adler, 1969), natación de bacterias móviles en ambientes quimiotácticos (Macnab y Koshland, 1972), natación hacia atrás de paramecium después de colisionar con un objeto, y la locomoción ameboide dirigida de células 3T3 de ratón cultivadas. Albrecht-Buehler clasifica tres tipos principales de movimiento ameboide: 1) generación de fuerza (contracción de un complejo actina-miosina, ensamblaje-desensamblaje de polímeros filamentosos, deslizamiento dineína-MT, rotación de filamentos), 2) transmisión de fuerzas motiles al armazón de una célula (citoesqueleto en general, anclaje de elementos fibrosos a la superficie celular en particular) y 3) generación de tracción (placas de adhesión, matriz extracelular, membranas basales).

Figure 49: Figura 5.24 Célula tratada con fármaco inhibidor de ensamblaje de microtúbulos. La célula ha perdido su polaridad. Lamellipodia se forman alrededor de la periferia de la célula “blob”ular. Los centriolos (C) están separados del núcleo. Elementos de Golgi (G), lisosomas (L), mitocondrias (M) y retículo endoplasmático (ER) están dispersos desordenadamente por todo el citoplasma. Con permiso de Marc DeBrabander (1982) y Janssen Pharmaceutica Research Laboratories.
Albrecht-Buehler divide además el control de la migración celular en tres subtemas: 1) generación de un eje frente-posterior (la polaridad implica MTOC y MT), 2) coordinación del cuerpo celular: cómo los cuarenta mil millones de moléculas proteicas que componen cada célula actúan cooperativamente para moverse como una unidad, y 3) lógica de migración: las reglas de cambio de dirección. Las células migratorias toman decisiones y evalúan globalmente su ambiente. Albrecht-Buehler afirma que el control de la migración celular ameboide proporciona evidencia de inteligencia citoplasmática porque requiere coordinación de muchos dominios celulares y navegación que implica evaluación del ambiente.
Pero la célula no es la unidad indivisible de comportamiento inteligente. Albrecht-Buehler sostiene que hay estratos jerárquicos de procesamiento de información dentro de las células. Ha mostrado que pequeños fragmentos de citoplasma que comprenden alrededor del dos por ciento del volumen celular pueden ser arrancados de fibroblastos vivos (Albrecht-Buehler, 1980). Estos “microplasts” carecen de cualquier input genético, y sin embargo pueden mover filopodia, rizar lamellipodia y producir blebs. Algunos fragmentos son tan pequeños que aparecen como filopodia, rizos o blebs activos aislados, y sugieren que las células contienen dominios citoplasmáticos capaces de movimiento ameboide autónomo. Albrecht-Buehler afirma que estas actividades citoplasmáticas dentro de las células son controladas por un estrato superior de organización para permitir locomoción coherente. Este nivel de control no está localizado en los genes, puesto que células con sus núcleos retirados todavía exhiben comportamiento migratorio. Hay inteligencia en el citoplasma. La célula tiene licencia de conducir.
Bending Sidearms
Varios movimientos citoplasmáticos importantes ocurren debido a la flexión de proteínas contráctiles fijadas a lo largo de filamentos citoesqueléticos rígidos. En músculo, arreglos de filamentos “delgados” paralelos e interdigitados (actina) interactúan con filamentos “gruesos” (miosina). Pequeños sidearms o puentes cruzados (“cabezas de miosina”) fijados a los filamentos gruesos de miosina se extienden a través de una brecha de unos 13 nanómetros y “reman cíclicamente como bancos de diminutos remos” para mover los filamentos unos respecto de otros. La energía de hidrólisis de ATP impulsa los cambios conformacionales que hacen que las moléculas de miosina se curven. La utilización precisa de energía de hidrólisis de ATP para causar contractilidad y otros cambios conformacionales sigue siendo mal comprendida, pero será discutida en el Capítulo 6.
Cada filamento de miosina lleva unas 500 cabezas, cada una de las cuales cicla unas 5 veces por segundo. Hay cierta evidencia de cooperatividad en que, una vez que una cabeza de miosina se ha desprendido, es llevada por la acción de otras cabezas de miosina a lo largo del filamento grueso. El remo de las cabezas de miosina es iniciado y coordinado por ondas de ion calcio liberadas desde un reservorio (el retículo sarcoplásmico), disparadas por actividad eléctrica de membrana. Los aumentos de ion calcio causan que una proteína reguladora unida a actina, llamada troponin, desplace su posición y permita el trinquete actina-miosina.
Muchas actividades relacionadas con MT generan fuerza, locomoción y movimiento de vesículas y otro material; el transporte axoplásmico es un ejemplo bien estudiado (Lasek, 1981; Ochs, 1982). MT paralelos dentro de axones están polarizados con sus “plus-ends” de crecimiento rápido distales al cuerpo celular y mirando hacia la sinapsis. Sidearms generadores de fuerza ocurren aproximadamente cada 16-18 nanómetros a lo largo de longitudes MT. Estos puentes cruzados contráctiles generan movimiento direccional de material a lo largo de MT al atravesar una secuencia de cambios conformacionales que implican fijación de puentes cruzados a vesículas, generación de fuerza dependiente de ATP por los puentes cruzados, y desprendimiento de puentes cruzados de vesículas. El desprendimiento ocurre sólo en extremos “plus” cerca de sinapsis. El proceso es similar al remo de cabezas de miosina para deslizar filamentos de actina y miosina unos junto a otros y acortar fibras musculares. Las actividades de dineína basadas en MT, sin embargo, son mucho más variables, flexibles e interactivas que los eventos repetitivos en nanoescala del músculo. Por ejemplo, en transporte axoplásmico dependiente de MT se transporta simultáneamente material diferente en dirección opuesta, desde la sinapsis al centro celular. Se piensa que este transporte axoplásmico “retrógrado” proporciona feedback a la maquinaria de síntesis proteica sobre qué enzimas o material son requeridos, y/o permite el “reciclaje” de algunas moléculas (Figura 5.25).
Robert Allen (1985) estuvo entre los primeros en sospechar que MT y MAPS servían como cintas transportadoras intracelulares. Él y sus colegas estudiaron MT aislados y fragmentos de MT que, con energía bioquímica disponible en forma de ATP, “glide” a lo largo de cubreobjetos de vidrio a velocidades de 150 a 450 nanómetros por segundo. La velocidad es independiente de la longitud del fragmento MT, ocurre esencialmente en una trayectoria recta y está en la dirección del transporte axoplásmico retrógrado. Las trayectorias rectas de segmentos MT deslizantes sugieren que las enzimas generadoras de fuerza están desplegadas en trayectorias lineales, antes que helicoidales, a lo largo del MT, y que el golpe que causa el deslizamiento es paralelo al MT con un intervalo de espaciamiento de unos 17 nanómetros. Reducir la concentración disponible de ATP enlentece significativamente la velocidad de deslizamiento, pero no afecta el número o comportamiento de MT deslizantes. Los MT deslizantes casi nunca interactúan cuando sus trayectorias se cruzan, y cuando el avance hacia adelante de un MT deslizante es bloqueado por un obstáculo, “fishtails” lentamente de lado a lado a través de una serie de maniobras serpentinas. Allen y colegas concluyeron que las fuerzas observadas en sus MT libres reptantes así como en transporte axoplásmico y flexión ciliar se deben a “enzimas generadoras de fuerza” directamente fijadas a MT. Dineína, que funciona para causar flexión en cilios y flagelos, es una enzima generadora de fuerza MT, y kinesina es otro motor para transporte de orgánulos a lo largo de microtúbulos. Perlas de látex recubiertas con kinesina se translocan a lo largo de microtúbulos de modo similar a orgánulos, aunque a una velocidad menor. Kinesina purificada puede aumentar la frecuencia de movimiento de orgánulos axoplásmicos a lo largo de MT purificados.
Allen y colegas propusieron la “backstroke hypothesis”, que afirma que la enzima generadora de fuerza (dineína o kinesina) hace un golpe elíptico que imparte alguna fuerza en ambas direcciones. El modelo de backstroke de dineína de Allen es capaz de transportar vesículas en direcciones opuestas simultáneamente a través de rutas suficientemente separadas para que rara vez colisionen. Además, el movimiento generado puede ser continuo, no interrumpido por ciclos de fijación y desprendimiento. El ciclo mecánico de cada sidearm incluye un golpe radial que mueve vesículas en dirección anterógrada hacia el extremo plus del microtúbulo. Esta parte del ciclo también causa que MT aislados se deslicen “retrógradamente”. El golpe de retorno es tangencial a la superficie MT y transporta los orgánulos mayores en una ruta retrógrada, e impulsa MT deslizantes hacia su extremo plus “anterógrado”.
Los mecanismos por los cuales los brazos proteicos generadores de fuerza pueden usar energía ATP para contraerse serán discutidos en el Capítulo 6. Aún menos comprendidas están la señalización y comunicación que orquestan actividades contráctiles de filas de brazos arregladas espacialmente en retículas MT. La comunicación colectiva entre subunidades de retícula MT (solitons, excitaciones coherentes, vibraciones de retícula) podría explicar esta orquestación.
El modelo de backstroke es actualmente más favorecido que otro modelo: microstreams. Shimizu y Haken (1983) habían propuesto una cooperatividad dinámica de elementos citoesqueléticos que generaba microcorrientes hidrodinámicas que transportaban materiales celulares. Se enfocaron específicamente en interacciones actina-miosina para generar estas microstreams. Nuevas técnicas como Nanovideo Microscopy, desarrollada por Marc DeBrabander y colegas (1986) en Janssen Pharmaceutica Research Laboratories en Bélgica, muestran seguimiento directo de partículas inmunomarcadas a lo largo de MT, cuestionando la significación de microstreams. Se ve que las partículas viajan en direcciones opuestas a lo largo del mismo MT, pasándose unas a otras como dos trenes en vías adyacentes. Microstreaming no parece dominante en transporte axoplásmico, pero podría ser importante en otros fenómenos. El sitio primario de transporte coordinado y su compleja orquestación parece descansar exclusivamente en la provincia de MT.
Movimiento Ciliar y Colectivo

Figure 50: Figura 5.25 El transporte axoplásmico ocurre por actividades coordinadas de proteínas contráctiles sidearm (“dineína”), que pasan cooperativamente material en una “cadena de cubos”. El mecanismo de orquestación es desconocido, pero se muestra aquí como consecuencia de señalización por ondas “soliton” de estados conformacionales de tubulina. Por Fred Anderson.
La estructura de cilios y flagelos es un núcleo de microtúbulos paralelos en un arreglo cilíndrico “9+2” de microtúbulos dobles o tripletes. El arreglo es similar a centriolos, que también son cilindros de 9 tripletes MT, pero sin el par central adicional. Cilios motores y flagelos tienen actina enrollada alrededor de su par central de MT. Las proteínas de brazos laterales que conectan los microtúbulos paralelos se llaman links, spokes o sidearms y están compuestas de dineína, la proteína contráctil que utiliza energía ATP para producir fuerza. Cilios y flagelos están anclados dentro de la célula a cuerpos basales que también están compuestos de microtúbulos paralelos y forman un cilindro corto con el mismo diámetro exterior y simetría de nueve partes que cilios, flagelos y centriolos. Se ha mostrado claramente que los mecanismos ciliares pueden funcionar sin influencia de la célula a la que están fijados. Flagelos o cilios separados de células por haces láser continúan propagando movimientos normales de flexión, si el medio circundante contiene ATP e iones de magnesio o calcio. Los cilios funcionan para mover fluido sobre la superficie de una célula o para propulsar células individuales a través de un fluido. Organismos unicelulares usan cilios para la recolección de partículas alimentarias y para locomoción. En el pulmón y tracto respiratorio humanos, el revestimiento epitelial contiene alrededor de mil millones de cilios por centímetro cuadrado que actúan para barrer capas de mucosidad, partículas atrapadas y células muertas hacia la boca, donde pueden ser expulsadas con tos o tragadas. Los cilios se flexionan en ondas unidireccionales coordinadas en las cuales cada cilio se mueve como un diminuto látigo. Hay un golpe hacia adelante en el cual el cilio está extendido y ejerce fuerza máxima sobre el medio líquido circundante, seguido por una fase de recuperación cuando vuelve a su posición inicial. El movimiento es un movimiento rodante que minimiza el arrastre viscoso y requiere alrededor de 0,1 a 0,2 segundos. Los ciclos de cilios adyacentes no están exactamente en sincronía, y el pequeño retraso produce patrones semejantes a ondas de todo el complejo ciliar. Flagelos simples de esperma y organismos unicelulares son muy parecidos a grandes cilios en su estructura interna, pero suelen ser más largos y se propagan en ondas cuasi-sinusoidales antes que en movimientos más rápidos tipo látigo. El mecanismo del batido flagelar en eucariotas (pero no de bacterias) es muy similar al de los cilios.
Contracción muscular, transporte axoplásmico y movimiento ciliar y flagelar ocurren todos por la flexión contráctil de proteínas sidearm fijadas a lo largo de filamentos citoesqueléticos. En el caso de la contracción muscular, los filamentos citoesqueléticos estables son miosina con apéndices llamados cabezas de miosina que reptan a lo largo de filamentos de actina paralelos. En el caso del transporte axoplásmico y la flexión ciliar y flagelar, los microtúbulos son los filamentos estables desde los cuales sidearms contráctiles de dineína reptan o reman a lo largo de otros MT (en el caso de cilios y flagelos), o pasan material o vesículas (en el caso del transporte axoplásmico). La energía para todos estos mecanismos es suministrada por la hidrólisis de ATP, pero su utilización precisa, transferencia de estados conformacionales y la orquestación temporal requerida para controlar estos apéndices sidearm son desconocidas. La Figura 5.25 muestra un posible mecanismo de control cooperativo en el cual una onda de estados conformacionales de tubulina (soliton) viaja a lo largo de la retícula de superficie cilíndrica MT para disparar las actividades de dineína.
Geles Geodésicos de Tensegrity
La contracción actina-miosina también ocurre en células no musculares. Poco después de que actina y miosina fueran identificadas en músculo, Loewy encontró que extractos de citoplasma de moho mucilaginoso respondían a ATP con una disminución de viscosidad. Hipotetizó que ATP proporcionaba energía química que era convertida en trabajo mecánico requerido para la locomoción del moho mucilaginoso. Después de que H. E. Huxley y colegas en University College London mostraran que la contracción muscular se lograba por deslizamiento dependiente de ATP de filamentos de actina y miosina unos junto a otros, Hatano y Osawa en Nagoya purificaron actina de moho mucilaginoso. Investigaciones subsecuentes descubrieron miríadas de proteínas de citomatriz, incluida miosina, que estaban relacionadas con la contractilidad y su regulación (Lazarides y Revel, 1979).
Usando anticuerpos fluorescentes para “iluminar” proteínas específicas, Lazarides y Revel (1979) han observado filamentos de actina organizados en redes llamativamente regulares que se parecen notablemente a domos geodésicos. Describen redes geodésicas icosaédricas que abarcan el área por encima y alrededor de núcleos celulares y otras regiones celulares después de que las células son tratadas con anticuerpos fluorescentes que iluminan actina, alpha actinin y tropomyosin. Alpha actinin está localizada principalmente en los vértices de la red geodésica y tropomyosin está localizada a lo largo de las fibras de actina que conectan los vértices. Fibras más largas se fijan a vértices de la red y se extienden hacia filopodia, lamellipodia y membranas. La red geodésica y los vértices actúan como centros de organización implicados en mantener la estructura celular (Figura 5.26).

Figure 51: Figura 5.26 Gel de citomatriz de actina geodésica rodeando el núcleo celular, de Lazarides y Revel (1979). Los vértices del domo nuclear icosaédrico fijan filamentos que se extienden hasta la membrana celular. Por Paul Jablonka.
Algunas redes de actina son estructuras dinámicas transitorias que sirven funciones fugaces, pero vitales, durante el ciclo celular. Durante las etapas finales de la división celular, después de que cromosomas duplicados han sido separados por el huso mitótico, un anillo de constricción rodea el ecuador de la célula madre perpendicular al eje del huso. El trabajo de este “surco de clivaje” constriñe el citoplasma hasta que se divide en dos células hijas. La tensión constrictiva ha sido estimada a partir de observaciones en huevos de dólar de arena y erizo de mar como de unos 3 x 10⁵ dinas por centímetro cuadrado, un valor comparable a la fuerza generada en músculo (Lazarides y Revel, 1979). El anillo contráctil del surco de clivaje es una estructura temporal que existe sólo unos 10 minutos; se ensambla y desensambla rápidamente. Aunque la anchura y espesor del anillo contráctil permanecen constantes durante la constricción, el volumen disminuye. El anillo debe desensamblarse incluso mientras se contrae, lo que significa que cualquier interacción deslizante de los filamentos de actina y miosina debe ser seguida por desagregación de algunos de los filamentos. Este desensamblaje debe tener lugar uniformemente a través del anillo durante toda su breve vida. Por tanto, un simple modelo de filamento deslizante es insuficiente para explicar la función de clivaje celular del anillo contráctil.
Steve Heidemann y colegas (Joshi, Chu, Buxbaum y Heidemann, 1985) en Michigan State University han examinado propiedades compresivas y tensiles del citoplasma. Encuentran que microtúbulos semirrígidos están bajo fuerzas compresivas generadas por filamentos contráctiles de actina entretejidos. Un equilibrio entre fuerzas compresivas y tensiles paralelas conduce a una propiedad autoportante caracterizada por Buckminster Fuller (1975) como “tensegrity”. Tensegrity puede proporcionar soporte celular incluso si los elementos rígidos paralelos no están en contacto directo. Tensegrity en el citoesqueleto podría explicar las propiedades estructurales autoportantes del citoplasma en las cuales los elementos rígidos paralelos no están en contacto directo.
Robert Jarosch (1986) ha propuesto que actina contráctil enrolla y desenrolla microtúbulos mediante un “torque drive”, causando oscilaciones rotacionales y quizá afinación y desafinación del sistema de microtúbulos. La compresión/tensión dinámica también puede ser importante en la regulación de receptores de membrana cuya movilidad está limitada por MT de anclaje. A la inversa, filamentos contráctiles de actina pueden redistribuir los receptores a menos que estén restringidos.
Dynamic tensegrity (Capítulo 8) puede ser un mecanismo importante en muchas funciones biológicas. En el citoplasma, estructuras complejas se ensamblan, actúan y se desvanecen en subunidades solubles.
El Citoesqueleto y el Desarrollo
El citoesqueleto realiza funciones críticas en reproducción y desarrollo. Estas incluyen meiosis (división de cromosomas duplicados en células de esperma y óvulo), motilidad espermática, mitosis, proliferación celular, migración celular y cambios en la forma celular que acompañan la diferenciación, la expresión de forma y función celulares. Todas las células en un organismo dado tienen las mismas capacidades genéticas, pero asumen los roles de tejidos específicos mediante los procesos misteriosos de trofismo y diferenciación. Células dentro de organismos o embriones en desarrollo pueden ser movidas y crecerán y asumirán las características del nuevo tejido en el cual son colocadas.
El citoesqueleto es crucial para todos los pasos de reproducción, crecimiento, trofismo y diferenciación. Si los cromosomas se distribuyen mal en meiosis o mitosis, puede ocurrir descendencia no viable o anormal. Tal mala distribución puede estar relacionada con disfunción citoesquelética, una teoría temprana para la causa del cáncer (Boveri, 1929). La variabilidad en isozymes de tubulina y MAPs podría explicar especificidad tisular y celular basada en diferencias en la composición molecular y actividades del citoesqueleto.
Los orígenes de la forma, patrones de crecimiento y diferenciación comprenden la ciencia biológica de la embriología, abordada primero por el griego Aristóteles. Aristóteles consideró dos explicaciones posibles para el desarrollo de forma y patrones a partir de lo que aparecía como nada. La primera noción era que los embriones derivan de diminutas masas sin forma a través de un proceso de despliegue continuo que llamó “epigenesis”. La segunda noción era que patrones individuales existen en miniatura dentro del progenitor, y que el desarrollo consiste en crecimiento constante de sus dimensiones, el proceso de “preformation”. Aristóteles (Libro VI de Historia Animilium) describió sus experimentos en los cuales interrumpía la incubación de un huevo de gallina en varias etapas. Después de tres días,
el corazón aparece como una mota de sangre en la clara del huevo, … [late] y se mueve como si estuviera dotado de vida y desde él dos conductos venosos con sangre se extienden en un curso convoluto.
Sólo siete días más tarde son el “polluelo y todas sus partes claramente visibles”. Aristóteles favorecía la epigénesis; sin embargo, el concepto de preformación dominó la ciencia durante siglos hasta 1759, cuando Friedrich Wolff, un médico alemán viviendo en St. Petersburg, publicó “Theoria Generationis”. Con mejor óptica que Aristóteles, Wolff señaló que el polluelo comenzaba como “glóbulos” o células que parecían no tener relación funcional unas con otras. Con el tiempo, grupos distintos de células emergían para formar las estructuras que se vuelven los órganos principales de la gallina. Más evidencia contra la teoría de la preformación llegó en 1900, cuando Hans Adolf Driesch demostró que un embrión de erizo de mar, al cortarse por la mitad, se desarrolla en dos embriones completos (Burnside, 1974).
La teoría de epigénesis de la diferenciación de Aristóteles afirma que esferas homogéneas empiezan a dividirse, produciendo más esferas que a su vez se dividen. Las “células” comienzan a exhibir diferencias en estructura y función y una “coherencia colectiva”. Cada célula sabe adónde ir, cuándo ir allí, con qué células congregarse y cómo trabajar cooperativamente. Excluyendo la posibilidad de que una inteligencia trascendental supervise personalmente el desarrollo de cada organismo, la conclusión es que la célula original contiene suficiente información para orquestar todo el proceso. Aristóteles probablemente se asombraría aún más al descubrir que durante el desarrollo embriológico temprano cada célula es totipotencial: puede asumir el papel de cualquier tejido del cuerpo. Ahora sabemos que el DNA cromosómico en cada célula contiene toda la información genética. Estamos empezando a entender cómo genes específicos son encendidos y apagados. Las células parecen asumir el papel de su ambiente debido a influencia morfológica “trófica” transmitida por transporte axoplásmico citoesquelético dentro de sus células nerviosas “inervantes”.
Gran parte del misterio de la forma biológica y la diferenciación se enfoca así en las capacidades de crecimiento, búsqueda de camino y tróficas de neuronas embriológicas. La forma, arquitectura y conexiones que hacen los procesos nerviosos establecen no sólo forma tisular y corporal, sino conexiones sinápticas y “hardware” cerebral.
¿Cómo saben los procesos neuronales dónde y cuándo enviar sus procesos y establecer conexiones? El misterio ha sido comparado con la fábula del “Indian rope trick”, en la cual un “fakir” lanza una cuerda al aire donde misteriosamente permanece rígida. Luego sube por la cuerda, tira hacia arriba de la porción inferior, ¡y desaparece! El Indian rope trick embriológico depende de la forma y orientación neuronales: el número de axones y dendritas jóvenes (“neurites”) que surgen del cuerpo celular, su dirección, grado de ramificación, hasta dónde crecen, y dónde y cómo forman sinapsis. Todos estos factores son manifestados por el citoesqueleto. El centriole/MTOC establece polaridad y orientación celulares y presumiblemente “lanza” los procesos en extensión. Las puntas de neurites que se alargan son áreas especializadas de citoplasma llamadas “growth cones” que no sólo crecen hacia afuera, sino que participan en decisiones sobre dirección, ramificación y terminación de la extensión. Los growth cones pueden sentir cambios en el ambiente local y, actuando en concierto con otros elementos citoesqueléticos dentro de la neurite, cambiar de dirección, ramificarse o formar sinapsis. Las actividades de growth cones son notablemente similares al movimiento en ameba y otros organismos simples. Sondean continuamente sus alrededores enviando y luego retrayendo rizos delicados conocidos como lamellipodia, y proyecciones tipo dedo llamadas filopodia o microspikes. Estos microapéndices dinámicos están compuestos de redes y arreglos paralelos de filamentos de actina. MT y neurofilamentos desde las neurites se despliegan hacia los growth cones, pero generalmente se detienen antes de las áreas ricas en actina (Bunge, 1986).
Los papeles de MT y actina en la extensión axonal han sido estudiados por Yamada, Spooner y Wessells (1970). La adición de cytochalasin B, que se sabe altera filamentos de actina, bloquea el crecimiento de neurites si se añade antes de que la extensión haya comenzado. El tratamiento de axones en extensión con cytochalasin B resulta en cese de la actividad de “ruffling” del growth cone con poco efecto inmediato sobre el tallo de la neurite. En contraste, agentes antimicrotúbulo como colchicine dejan intacta la actividad del growth cone pero bloquean la extensión de neurites. La exposición continuada resulta en retracción del proceso celular con formación subsecuente de uno o más growth cones desde el cuerpo celular. Estas observaciones junto con evaluaciones ultraestructurales de células tratadas muestran que los MT son necesarios para el crecimiento de neurites, mientras que los filamentos de actina son esenciales para la protrusión del growth cone, un fenómeno similar al movimiento ameboide. Se requiere una interacción compleja de actividades dinámicas de actina y MT para la brotación de neurites y la extensión del growth cone. Una visión compuesta de actividades del growth cone es que, bajo dirección del citoesqueleto MT, el ensamblaje de actina genera lamellipodia y filopodia protruyentes. Al contacto con un sustrato externo apropiado, filopodia se adhieren y haces de actina se forman desde la punta del filopodium hacia el growth cone. Miosina colocaliza con actina y la interacción actina-miosina produce una tensión tipo “muscle-like” que proporciona un anclaje para el growth cone al sitio de adherencia del filopodium. Lamellipodia, rizos laminares, se disparan entre los filopodia tipo dedo, particularmente cerca de puntos donde se requieren decisiones sobre ramificación.
Las actividades de growth cones relacionadas con diferenciación embriológica están en el verdadero piso básico de la inteligencia. La evidencia sugiere que la expresión de tubulina, MAPS y otros elementos citoesqueléticos también es importante para determinación de forma y función celulares. Barra y colegas (1974) han mostrado cambios en tubulina alfa y beta durante el desarrollo cerebral. La cantidad relativa de tubulina alfa y beta en cerebro de rata alcanza un pico alrededor del día 14 después del nacimiento y luego declina a niveles adultos como resultado de reducción en la tasa de síntesis. El patrón de variantes genéticas de tubulina alfa y beta (isozymes) sufre cambios marcados durante el desarrollo cerebral con un aumento en la variedad de tubulina. Por ejemplo, se observan 3-4 tipos diferentes de tubulina beta en cerebro embrionario de ratón en comparación con 13 tipos en ratones adultos. La modificación de isotypes de tubulina alfa comienza en el cerebro embrionario, mientras que la modificación de tubulina beta empieza a ocurrir después del nacimiento y coincide con un periodo de extensa extensión de procesos y sinaptogénesis en el cerebro en desarrollo.
MAPs también están implicadas en desarrollo y expresión (Barra et al., 1974). En el caso del cerebro de rata, dos polipéptidos tau están presentes en los primeros pocos días de nacimiento. Para los 35 días ha emergido el patrón adulto, en el cual son aparentes cuatro polipéptidos tau mayores. Las proteínas tau de madurez son más diestras en promover ensamblaje MT que las proteínas tau de inmadurez. MAP 1 puede resolverse en tres grupos de MAP 1A, 1B y 1C. En desarrollo cerebral de pollo, MAP IA está inicialmente presente a niveles bajos y aumenta durante el desarrollo embrionario tardío y post-eclosión. Similarmente, MT de cerebros de rata de 10 días están empobrecidos en MAP 1A en comparación con cerebros adultos. MAP 2 está restringida a dendritas y cuerpos celulares en cerebro adulto y está particularmente concentrada en puntas dendríticas, dendritas de células de Purkinje y todos los cuerpos celulares neuronales, pero ausente de axones. La localización de MAP 2 al citoesqueleto dendrítico comienza en los tiempos más tempranos de aparición de extensiones dendríticas. En el cerebro adulto, MAP 2A y MAP 2B aparecen en diferentes tiempos y regiones cerebrales y están localizadas en axones ricos en neurofilamentos.
Todos estos cambios se deben a mecanismos citoesqueléticos localizados además de expresión genética. La sinfonía de alteraciones en isozymes de tubulina y MAP tiene la partitura escrita en DNA, pero su interpretación requiere interacciones colectivas cooperativas entre el director y la orquesta. Por ejemplo, la “tyrosination” de tubulina beta ocurre debido a señalización y condiciones presentes en el citoplasma. Las modificaciones están implicadas en el control de la extensión de procesos axonales y dendríticos, transporte de constituyentes a las puntas de los procesos en crecimiento, migración y división celular, y establecimiento y mantenimiento de sinapsis y de la forma adulta de la neurona. Las relaciones temporales entre cambios en proteínas MT neuronales y diferenciación son esenciales para el producto final: el brain/mind.
El Citoesqueleto y la Medicina
Defectos relacionados con microtúbulos están específicamente vinculados a varias enfermedades humanas. Un ejemplo es el “immotile cilia syndrome” (Afzelius, 1979), que es causado por dineína alterada y resulta en una incapacidad para expulsar secreciones de los pulmones, llevando a infecciones bacterianas recurrentes. Otro es discapacidad del desarrollo en lactantes, causada por función MT anormal inducida por MAPs defectuosas (Purpura, 1982). El citoesqueleto participa en los efectos de diversas enfermedades (malignidad, enfermedad de Alzheimer, infecciones virales), fármacos, toxinas y la respuesta del cuerpo a la enfermedad.
El camino para comprender MT condujo a través de la enfermedad gota, una hinchazón dolorosa de articulaciones causada por la respuesta del cuerpo a la acumulación de cristales de urato. Linfocitos y macrófagos, las células inmunes del cuerpo, dejan el torrente sanguíneo y migran por locomoción ameboide hacia los cristales de urato, que a menudo se alojan en una articulación del dedo gordo del pie. La gota puede ser precipitada por alimentos que contienen purinas, que son metabolizadas a urato. Los cristales de urato no son particularmente dañinos salvo por la respuesta inmune inflamatoria dolorosa que disparan. Por azar, se encontró que un fármaco llamado colchicine era útil para aliviar el dolor y la sensibilidad. Más tarde se descubrió que colchicine funcionaba despolimerizando microtúbulos e impidiendo la locomoción y el comportamiento de engullimiento de linfocitos y macrófagos.
Además de la migración celular, el citoesqueleto está claramente implicado en el establecimiento de arquitectura celular normal, función y control de división y crecimiento celulares. En malignidad, el control de la reproducción celular se pierde y el crecimiento procede sin considerar las necesidades del organismo. Las células cancerosas exhiben una tendencia a desprenderse de su anclaje y establecer crecimiento en otra parte del cuerpo. El citoesqueleto maligno está desorganizado, con formación de agregados oscilantes de material contráctil que ayudan al desprendimiento de la célula de su anclaje, inestabilidad en número cromosómico y pérdida de regulación del crecimiento. Todos estos efectos podrían ser primariamente de origen citoesquelético, y Puck (1977) ha propuesto que la malignidad es una enfermedad del citoesqueleto. Claramente, el citoesqueleto está implicado en la expresión y procesos de células malignas. En cáncer, la división celular queda fuera de control: se observan comúnmente husos mitóticos multipolares o asimétricos. Boveri observó en 1929 que tal distribución aberrante de material genético podría resultar en cualquier combinación o permutación de genes, la mayoría de las cuales serían no viables. Sin embargo, algunas permutaciones pueden ser suficientemente viables y tener los rasgos aborrecibles de la malignidad. Muchos otros factores que conducen a alteraciones genéticas pueden dar cuenta de los mismos resultados, de modo que la etiología precisa no puede señalarse. En efecto, el cáncer probablemente es causado por varias etiologías, incluidos virus que infiltran y usurpan el aparato genético y el citoesqueleto.
Gran parte de nuestro conocimiento actual del citoesqueleto se ha aprendido de perturbaciones experimentales por toxinas, venenos o fármacos. Claude Bernard dijo en 1875:
El veneno se vuelve un instrumento que disocia y analiza las propiedades especiales de diferentes células vivas; al establecer sus mecanismos y causar muerte celular o cambios en la función celular podemos aprender indirectamente mucho sobre la relación entre estructura molecular en el proceso fisiológico de la vida.
Los MT de nervio periférico y el transporte axoplásmico son vulnerables a efectos de toxinas y fármacos. Alcaloides de vinca (vincristine, vinblastine) se emplean comúnmente en la lucha contra el cáncer porque interrumpen husos mitóticos MT mientras polimerizan. Puesto que las células cancerosas se dividen mucho más rápidamente que las células normales, los venenos del huso mitótico son efectivos contra la malignidad. Sin embargo, pueden causar efectos secundarios, incluido daño de nervio periférico al lesionar transporte axoplásmico dependiente de MT. Esto resulta en daño de nervio periférico en muchos pacientes que reciben fármacos anti-microtúbulo. A veces disfunción neurológica severa limita el uso de los fármacos de vinca. Afortunadamente, ni alcaloides de vinca ni colchicine cruzan la barrera hematoencefálica, de modo que los problemas del sistema nervioso central son limitados.
No se conocen agentes que interrumpan selectivamente filamentos intermedios (aunque 2,5 hexane dione puede actuar de este modo). En células intactas, vanadate combinado con fármacos que desensamblan microtúbulos causa que filamentos intermedios de tipo vimentin colapsen alrededor del núcleo. Una toxina conocida como beta, beta prime iminodiproprionitrile (IDPN) interrumpe la organización microtúbulo/neurofilamento en axones, lo que resulta en colocalización de ciertos subgrupos MAP II con filamentos intermedios. Wisniewski y colegas (1966) mostraron que la inyección de sales de aluminio en el cerebro o fluido cerebroespinal de animales experimentales inducía marcada acumulación de filamentos de 10 nanómetros en cuerpos celulares, dendritas y segmentos iniciales de axón de neuronas grandes. Cuando se tiñen con plata, estas acumulaciones se parecen superficialmente a ovillos neurofibrilares que se encuentran en varios estados de enfermedad humana, notablemente enfermedad de Alzheimer, Parkinsonism dementia y senilidad. Las acumulaciones filamentosas no son precisamente idénticas a las de las enfermedades humanas, pero plantean preguntas interesantes sobre el papel de proteínas citoesqueléticas en estas aflicciones. La enfermedad de Alzheimer y formas relacionadas de demencia senil se caracterizan por estos ovillos neurofibrilares, que resultan en diversos síntomas, incluida una escasez de acetylcholine en sinapsis de neuronas “cholinergic”. Esta escasez puede deberse a una ruptura en los mecanismos de transporte citoesquelético que entregan precursores de acetylcholine a las sinapsis. La disfunción cognitiva que caracteriza las demencias está de algún modo relacionada con disrupción del citoesqueleto. Otras toxinas cuyos mecanismos se han atribuido a efectos citoesqueléticos incluyen hexanedione y hexacarbons, carbon disulfide, acrylamide, methylmercury y asbestos de fibra mineral.
Cuando las células son lesionadas por falta de oxígeno, acidosis, toxinas u otras causas, hay un punto irreversible más allá del cual la muerte celular es inevitable. Evidencia reciente apunta a una elevación patológica de ion calcio citoplasmático como el punto irreversible (Farber, 1981). El exceso de calcio puede originarse fuera de la célula, difundiendo a través de membranas dañadas, o puede ser liberado desde reservorios citoplasmáticos, incluido el citoesqueleto. Sin importar su fuente, el calcio elevado causa despolimerización de microtúbulos y otros componentes citoesqueléticos. El resultado neto es una pérdida de organización citoplasmática, función enzimática e integridad estructural que lleva a muerte celular. Dimethysulfoxide (DMSO) es un solvente que estabiliza microtúbulos polimerizados, y que ha mostrado preservar integridad de células y tejidos contra efectos dañinos de radiación, baja temperatura y otros insultos. Otros compuestos (taxol, poly-lysine, etc.) también fortifican o preservan MT y el citoesqueleto y podrían ser importantes en terapias futuras.
Los efectos de varios otros fármacos pueden estar mediados vía el citoesqueleto; entre ellos están anestésicos que causan un cese reversible de conciencia. En el siglo XIX, Claude Bernard señaló que un anestésico (chloroform) inhibía “protoplasmic streaming” en mohos mucilaginosos, una función del citoesqueleto. Allison y Nunn (1968) mostraron que concentraciones suficientes del anestésico general halothane despolimerizaban reversiblemente MT. Barbitúricos productores de sueño, anestésicos locales y tranquilizantes mayores como thorazine también se unen a MT cerebrales. El Capítulo 7 describirá cómo la anestesia está relacionada con inhibición de actividades cooperativas relacionadas con procesamiento de información en el citoesqueleto y proteínas de membrana conectadas. La emergencia futura de nanotecnología (Capítulo 10) puede permitir que la intervención médica se ajuste más específicamente a funciones y disfunciones del citoesqueleto.
Inteligencia en el Citoesqueleto
Las redes de gel citoesquelético tienen repertorios complejos. Los eventos motiles dentro de células no musculares son dinámicos, a menudo transitorios y variables, y no estrictamente análogos a la contracción muscular. Las células contienen de dos a cinco tipos diferentes de actina y estos pueden combinarse de hasta diez maneras diferentes dependiendo de la presencia de proteínas de unión y otros factores. Ciertas actinas polimerizan en presencia de iones de calcio o magnesio, mientras que otras actinas polimerizan sólo en su ausencia. Las células no musculares poseen mecanismos de control que conmutan dinámicamente entre actina monomérica, actina en una forma de haz filamentoso y actina en una forma de red de gel geodésica. Algo de la motilidad citoplasmática es resultado de reptación actina-miosina, mientras que otros ejemplos dependen de polimerización explosiva de actina, rápida desagregación de filamentos de actina, o interconversión de haces de filamentos en una red (Satir, 1984). Microtúbulos, filamentos y centriolos también están implicados en estos mismos aspectos del movimiento celular y son particularmente importantes para orientación y guía direccional.
¿Cómo pueden coordinarse estos modos diversos? Guenter Albrecht-Buehler (1985) cita dos requisitos básicos para la inteligencia citoplasmática. Estos son compartimentalización, que separa componentes implicados en diversas funciones para prevenir caos, y contenido de información. Según Shannon (1948), la información no concierne al significado del mensaje sino sólo a su estructura formal. Como dijo Marshal MacLuhan: “the medium is the message”; ¡el citoplasma es ambos!
La información puede tener contenido espacial y temporal: espacialmente un mensaje puede estar en forma de carta o cinta magnética, y/o puede tener una estructura temporal como una señal de radio o película. Es el propio acoplamiento de componentes espaciales y temporales en un sentido dinámico lo que proporciona el medio de información. Shannon sugirió que las señales intencionadas sean “impredecibles”. Por ejemplo, un texto significativo es una secuencia de palabras y letras que el lector no puede anticipar. En contraste, texto consistente en una cadena ininterrumpida de una sola letra no porta mucha información. De modo similar, en mensajes temporales como señales de radio, la onda portadora estrictamente periódica y por tanto predecible de un transmisor no porta información. Sólo después de que las oscilaciones periódicas de la onda portadora han sido moduladas con cambios impredecibles de frecuencia (FM), o amplitud (AM), pueden oírse habla o música. En el extremo opuesto del espectro, el ruido estocástico aleatorio está igualmente desprovisto de información.
Albrecht-Buehler observa que el citoplasma no es totalmente regular, como un cristal periódico, ni totalmente aleatorio como un líquido hirviente, sino una pieza organizada de materia. Actividades complejas e intrincadas ocurren “en medio de ruido térmico ahogador por todas partes y dentro”. El citoplasma no sólo mantiene la calma frente al fondo térmico, sino que rutinariamente acopla componentes espaciales y temporales para manifestar información. Un ejemplo de información citoplasmática que es independiente del control DNA/genético es el patrón de orientación ciliar en paramecium (Figura 5.27). Patrones alterados extrínsecamente, “no genéticos”, se mantienen a través de cien generaciones mitóticas (Aufderheide, Frankel y Williams, 1977).
Albrecht-Buehler describe tres aproximaciones posibles y progresivamente iluminadas para dar cuenta de las acciones inteligentes del citoplasma. 1) “El secreto de la complejidad citoplasmática se busca en la propia aleatoriedad del caos térmico combinada con la especificidad observada de las reacciones bioquímicas.” Esta visión es dudosa puesto que el citoesqueleto y otras estructuras asumen formas elaboradas, no aleatorias. 2) La inteligencia citoplasmática brota de “topología, arquitectura y dinámica supramoleculares antes que de inhibidores y promotores que pululan libremente con sus constantes de unión competidoras.” Los arreglos espaciales complejos de subunidades proteicas y otras moléculas en ensamblajes macromoleculares sugieren fuertemente cooperatividad entre eventos bioquímicos a través de grandes distancias intracelulares. Esto conduce a considerar el citoplasma como un “complejo multienzimático gigante” basado en acciones cooperativas de actina, IF y MT. Esto implica una función maquínica automática, tipo robot, del citoplasma, presumiblemente puesta en movimiento y dirigida por el aparato genético. Esta visión es abrazada por muchos biólogos que deifican el DNA como primer motor en todas las actividades biológicas y descuidan las actividades citoplasmáticas en “real time” de los organismos. 3) Albrecht-Buehler sugiere una inteligencia inherente dentro del citoplasma. La inteligencia implica la capacidad de recolectar y procesar datos y tomar decisiones sobre la base de estos datos. También son importantes criterios intrínsecos que distinguen entre resultados deseables y no deseables. La inteligencia implica la capacidad de evaluar situaciones globales, no meramente reaccionar a estímulos locales cuando y donde ocurren, e implica comunicación de datos con otros objetos inteligentes y ajuste apropiado de acciones. Albrecht-Buehler sospecha que los computadores fueron descubiertos, antes que inventados, y que el citoplasma es un “sistema de procesamiento de datos basado en química en gel o incluso líquido”.
La inteligencia citoplasmática puede depender de dinámicas colectivas de subunidades citoesqueléticas. Arreglos paralelos de MT y neurofilamentos proporcionan un armazón alrededor del cual estructuras de retícula microtrabecular podrían formarse con duraciones variables de existencia como correlatos de aprendizaje, información, memoria y conciencia. La contractilidad mecánica de actina-miosina y otras proteínas dentro de la citomusculatura/citomatriz podría impartir vibraciones mecánicas y resonancias cooperativas, solitons, o patrones de ondas de interferencia. Redes geodésicas de tensegrity de MT, actina y su agua ordenada pueden estar pulsando en la nanoescala en este mismo momento dentro de todas las células vivas. Patrones de polimerización de actina y otras proteínas también pueden ser regulados por diferencias de fase de estado sol-gel inducidas por calcio o acoplamiento armónico con otras estructuras microtrabeculares y citoesqueléticas. Excitaciones coherentes de nanosegundo y solitons propagantes son mecanismos adicionales que se ha propuesto que ocurren dentro del citoesqueleto. En el cerebro, refuerzo desde niveles superiores de procesamiento paralelo (nivel neuronal, red neural, cerebro) podría fortificar subestructuras específicas como patrones de onda de estados sol-gel acoplados al calcio en citoplasma neural.
El “genetic code” fue descifrado por Marshal Nirenberg y colegas (1961, 1964), quienes pudieron igualar patrones de pares de bases de DNA con secuencias específicas de aminoácidos en proteínas sintetizadas. Los códigos de información en “real time” en el citoesqueleto pueden ser comprendidos cuando eventos citoesqueléticos de nanoescala justo más allá de nuestras capacidades actuales se vuelvan abordables con el advenimiento de la nanotecnología en las próximas décadas.

Figure 52: Figura 5.27 Mitosis de paramecium y “herencia” citoesquelética. Arriba: un único paramecium se alarga y se divide en dos células hijas. La superficie de paramecium está cubierta de cilios semejantes a pelos, cada uno de los cuales es un ensamblaje colectivo de dobletes o tripletes de microtúbulos. Los cilios se flexionan cooperativamente para propulsar el paramecium, y para propulsar el ambiente líquido más allá de los organismos. Todos los cilios están orientados en la misma dirección, hacia la izquierda. Segunda fila: se ilustran experimentos realizados por Aufderheide, Frankel y Williams (1977). Un segmento de membrana celular y citoesqueleto subyacente que ancla cilios es trasplantado en orientación inversa a un paramecium hermano. La orientación anormal de los cilios persiste en la siguiente generación, ¡y durante 100 generaciones posteriores! Por Paul Jablonka.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica la división normal, el trasplante de un parche ciliar invertido y la persistencia de esa orientación invertida en generaciones posteriores.
Dinámica Conformacional Proteica
Las proteínas son los elementos estructurales y organizacionales del “estado vivo”. Sus funciones esenciales están intrínsecamente vinculadas a su estructura y a la conmutación dinámica entre diferentes estados conformacionales. Por ejemplo, proteínas de canales iónicos incrustadas en una membrana pueden estar en una conformación “abierta”, a través de la cual iones específicos difunden a lo largo de un gradiente, o pueden estar “cerradas”. Este tipo de interruptor conformacional no requiere energía bioquímica como hidrólisis de ATP, sino que utiliza energía almacenada en gradientes de voltaje transmembrana y ocurre en respuesta a un disparador apropiado. Proteínas como enzimas, receptores, filamentos citoesqueléticos, miosina muscular y hemoglobina sufren cambios conformacionales importantes en respuesta a una variedad de estímulos. Patrones dinámicos de estados conformacionales entre subunidades citoesqueléticas pueden representar información, ejercer control sobre funciones biológicas rutinarias y proporcionar el “grano del engrama”.
Estructura Proteica

Figure 53: Figura 6.1 Enlace de hidrógeno entre hidrógeno y oxígeno en un enlace de resonancia amide 1. Con permiso de Bolterauer, Henkel y Opper (1986).
Las proteínas tienen varios niveles jerárquicos de organización estructural que determinan sus capacidades dinámicas y funcionales. La estructura primaria proteica está determinada por una secuencia de 22 aminoácidos posibles unidos por enlaces peptídicos. Un aminoácido consiste en átomos de carbono unidos a átomos de nitrógeno (enlace peptídico) y sus grupos laterales acompañantes. Los 22 aminoácidos encontrados en proteínas difieren en sus grupos laterales, aunque cada uno contiene un doble enlace carbono-oxígeno conocido como “amide 1”. Cadenas de aminoácidos llamadas “peptides” realizan muchas funciones fisiológicas, incluida la actuación como neurotransmisores y hormonas circulantes. Los aminoácidos imparten propiedades específicas según la secuencia de su incorporación en la cadena peptídica. Los aminoácidos difieren en su tamaño dependiendo de sus grupos laterales; sus pesos moleculares pueden ir desde 75 daltons (un dalton es la masa de un átomo de hidrógeno, una doceava parte de un átomo de carbono) para glycine, hasta unos 200 daltons para tryptophan, que contiene un doble anillo aromático. Las proteínas funcionales también varían en tamaño: 55 kilodaltons (un kilodalton = mil daltons) para monómeros de tubulina, 630 kilodaltons para thyroglobulin, hasta varios millones de kilodaltons para ensamblajes proteicos que comprenden virus grandes y agentes infecciosos de ciertas enfermedades como psittacosis y lymphogranuloma venereum (Harper, 1969). Así, las proteínas están compuestas de varios cientos a millones de aminoácidos. La secuencia precisa de aminoácidos está determinada por DNA y son ensamblados en ribosomas. Un “backbone” polipeptídico de 200 aminoácidos tendría 22200 estructuras primarias posibles diferentes. ¡La masa requerida para incluir un ejemplo de cada una de este número de estructuras proteicas excedería con mucho la del universo!
Los aminoácidos que comprenden cadenas polipeptídicas y estructura primaria proteica pueden formar enlaces con otros aminoácidos dentro del polipéptido mediante enlaces de hidrógeno y enlaces disulfuro. Estos enlaces causan flexión de cadenas polipeptídicas en estructuras enrolladas o plegadas que determinan la estructura secundaria proteica. La estructura secundaria más estable y comúnmente observada es una espiral dextrógira llamada “alpha helix”, en la cual enlaces de hidrógeno (Figura 6.1) se forman entre un oxígeno y un hidrógeno separados por 3 o 4 aminoácidos en la cadena polipeptídica. Alpha helices pueden interactuar entre sí en una proteína, apilándose en arreglos paralelos o antiparalelos o formando “coiled-coils” levógiros. Alpha helices (Figura 6.2) son ocurrencias comunes en una amplia variedad de proteínas; tubulina es alrededor de 40 por ciento alpha helix en la mayoría de circunstancias (Dustin, 1978). La alpha helix ha sido propuesta como un sitio importante de transferencia de energía e información en proteínas. Davydov ha propuesto que la energía de hidrólisis de ATP utilizada en contracción muscular actina-miosina y muchos otros eventos biológicos se transmite a lo largo de rutas alpha helix vía “solitons” propagantes que ocurren debido a acoplamiento enarmónico en los dobles enlaces carbono-oxígeno (Sección 6.7).
Enlaces de hidrógeno formados entre grupos laterales de aminoácidos en cadenas polipeptídicas en paralelo resultan en configuraciones proteicas secundarias planares llamadas beta-pleated sheets. Propuestas primero por Linus Pauling en 1951, las beta-pleated sheets pueden alinearse ellas mismas en formaciones paralelas, antiparalelas o mixtas.
Alpha helices, beta-pleated sheets y otras estructuras secundarias interactúan para definir la estructura terciaria proteica, de la cual dependen la mayoría de funciones proteicas. Fuerzas hidrofóbicas, distribución de carga, puentes disulfuro y estructura secundaria resultan en plegamiento en regiones globulares que definen la forma de unidades proteicas individuales. Alpha helix y beta-pleated sheets se empaquetan en arreglos que ayudan a determinar los dominios estructurales terciarios, que a menudo tienen funciones específicas como unir una molécula, o asociarse con otros dominios para crear estructuras mayores. El ensamblaje de grupos de estructura terciaria determina la estructura cuaternaria, como subunidades de tubulina ensamblándose en microtúbulos. Generalmente, interacciones hidrofóbicas como fuerzas Van der Waals son importantes en ensamblajes proteicos cuaternarios.
Los niveles de ensamblajes proteicos incluyen, en el nivel más simple, enzimas monoméricas. Con pesos de 20 a 90 kilodaltons, estas enzimas tienen un único sitio activo en el cual moléculas específicas sufren reacciones químicas facilitadas (“catalizadas”) por la enzima. Algunas enzimas pueden requerir iones metálicos, moléculas orgánicas o cofactores específicos para funcionar. Actividad enzimática reducida puede resultar de la ocupación del sitio activo por moléculas resistentes a la acción enzimática, un fenómeno llamado “competitive inhibition”. La unión al sitio activo corresponde con estados conformacionales específicos de enzimas.
Un sistema más complejo es la enzima oligomérica, un ejemplo de la cual es el acetylcholine receptor: un oligómero de cuatro subunidades que se activa por unión de acetylcholine. Estar compuesto de varias subunidades lleva a propiedades colectivas que surgen de la organización e interacciones de los componentes. Muchas o quizá la mayoría de enzimas son oligoméricas, con pesos moleculares que van de 35 a varios miles de kilodaltons. Las subunidades oligoméricas a menudo tienen dos sitios de unión; uno es el sitio activo para su acción enzimática y el otro es un sitio regulador que controla el sitio activo mediante un cambio en la forma o conformación de la subunidad. Moléculas reguladoras, o efectoras, pueden cambiar no sólo la actividad del sitio catalítico en esa subunidad (allosterism), sino también en subunidades adyacentes (cooperativity). Las subunidades de oligómeros pueden ser iguales (homopolymers) o diferentes (heteropolymers), y coenzimas pueden ser necesarias. Una sola molécula de coenzima puede “encender” las capacidades de unión de múltiples subunidades dentro de una enzima oligomérica (Roth y Pihlaja, 1977).
Ejemplos de enzimas oligoméricas incluyen glutamate dehydrogenase, compuesta de seis subunidades de 55 kilodaltons que forman un complejo con dimensiones aproximadas de 100 por 100 por 80 nanómetros. Un ejemplo de un oligómero más complejo es aspartate transcarbamylase. Contiene seis unidades reguladoras de unos 34 kilodaltons, cada una compuesta de 3 dímeros. Seis subunidades catalíticas adicionales de 100 kilodaltons están cada una compuesta de dos trímeros. Seis átomos de zinc son necesarios en cada una de las subunidades reguladoras. Otro oligómero cooperativo es hemoglobina, compuesta de dos subunidades “alpha” y dos “beta”; también se han observado muchos otros patrones de enzimas oligoméricas. Las subunidades de enzimas oligoméricas tienen interacciones cooperativas, lo que significa que la función de una subunidad facilita las acciones conformacionales de otras subunidades. En hemoglobina, condiciones suficientes para unión de una molécula de oxígeno a una subunidad causan que las subunidades restantes unan oxígeno más fácilmente.
Ensamblajes proteicos más complejos incluyen polímeros citoesqueléticos y cubiertas virales. Las interacciones cooperativas de sus subunidades pueden llevar a procesamiento de información y, por tanto, a comportamiento inteligente.
Conformación Proteica
En el nivel estructural terciario, la mayoría de moléculas proteicas son capaces de desplazarse reversiblemente entre varias conformaciones estables diferentes pero relacionadas, y se conocen como proteínas alostéricas. Tales proteínas pueden ser capaces de formar varios conjuntos alternativos de enlaces de hidrógeno, puentes disulfuro y fuerzas Van der Waals de energía aproximadamente igual entre las cadenas laterales de aminoácidos que las constituyen. Cada conjunto alternativo de enlaces intraproteicos y distribución de carga requiere un cambio en las relaciones espaciales entre componentes de las cadenas polipeptídicas y así ocurre movimiento entre los estados. Sólo ciertas conformaciones distintas son energéticamente favorables y cualquier conformación intermedia es inestable e improbable. La redistribución de carga (es decir, oscilación dipolar) también puede acoplarse a la conmutación conformacional. Así, ocurre salto no lineal, escalonado, entre conformaciones específicas, de modo que sólo existe un número discreto de conformaciones alternativas para una proteína dada, y la conmutación aleatoria de conformación a conformación es limitada.

Figure 54: Figura 6.2 Alpha helix con tres “espinas” formadas por enlaces de hidrógeno (líneas discontinuas) entre átomos de hidrógeno y oxígeno. Con permiso de Bolterauer, Henkel y Opper (1986).
Cada conformación distinta de una proteína alostérica tiene una superficie diferente y una capacidad diferente para interactuar con otras moléculas de unión o “ligands”. Sólo una de varias conformaciones puede tener una alta afinidad por un ligand particular, y la presencia o ausencia de ese ligand puede determinar la conformación que adopta la proteína. Dos ligands distintos pueden unirse específicamente a diferentes superficies de la misma proteína, de modo que la concentración de un ligand puede cambiar la afinidad de la proteína por el otro. Tales mecanismos alostéricos facilitan ajuste fino y regulación de muchos procesos biológicos en los cuales las proteínas transducen, o integran, diversos modos de señalización e información. Las proteínas alostéricas son dispositivos de señalización especialmente efectivos cuando existen como agregados de subunidades idénticas. La conformación de una subunidad puede influir en la de subunidades vecinas, produciendo un efecto colectivo similar a amplificación o conmutación en un computador. El comportamiento colectivo de hemoglobina en su unión de oxígeno es un ejemplo; transformaciones de estado en microtúbulos pueden ser otro.
El estado conformacional de una proteína específica está regulado por una variedad de factores y puede tener importancia profunda para la actividad funcional. Hemoglobina es una proteína que contiene hierro en glóbulos rojos y transporta oxígeno desde los pulmones a los diversos tejidos corporales como cerebro, corazón o músculo. Hemoglobina que une una molécula de oxígeno está en una conformación diferente (“oxyhemoglobin”) que hemoglobina sin oxígeno (“deoxyhemoglobin”). El estado conformacional de hemoglobina encontrado dentro de glóbulos rojos determina la capacidad de la proteína para unir o liberar oxígeno. La conformación de hemoglobina está determinada por factores que incluyen disponibilidad de oxígeno, temperatura, pH, presencia de ciertas otras moléculas (es decir, 2,3 DPG) y la cantidad de oxyhemoglobin cercana. Esto último describe un efecto “colectivo”; cuando una cantidad crítica de hemoglobina une oxígeno, la conformación oxyhemoglobin es más fácil de alcanzar para las moléculas proteicas restantes. Esto resulta en una forma “sigmoide” de la curva que describe la unión oxígeno/hemoglobina. La naturaleza de este fenómeno colectivo es un indicio del comportamiento de ensamblajes proteicos.
Diferentes frecuencias de cambios conformacionales coexisten cooperativamente en la misma proteína (Tabla 6.1). Algunas conformaciones totalmente reversibles como oxyhemoglobin persisten durante decenas de segundos; otras pueden ser muy efímeras (es decir, femtoseconds: 10-15 segundos), o muy largas (minutos a horas). La conformación oxyhemoglobin persiste hasta que la molécula de oxígeno es entregada al tejido cuyas mitocondrias la usan para producir ATP y GTP. Para alcanzar sus sitios de unión dentro del núcleo central de hemoglobina, las moléculas de oxígeno difunden a través de defectos transitorios de empaquetamiento en la estructura de la proteína. La “respiración” conformacional en escala de nanosegundos permite que las moléculas de oxígeno entren y salgan, dependiendo del pH circundante, temperatura, hormonas y otros factores. Así parece haber al menos dos niveles de estados conformacionales en hemoglobina. La conformación “funcional” (unión frente a no unión de oxígeno) es relativamente duradera (lo bastante como para transportar oxígeno desde los pulmones al tejido para entrega). Además, hay vibraciones conformacionales más rápidas como la “respiración” de nanosegundos que facilita la difusión de moléculas de oxígeno a través de hemoglobina para alcanzar sus sitios de unión.
| Amplitud de movimientos | 0,001 nanómetro a 10 nanómetros |
|---|---|
| Energía | 0,1 kilocalorías a 100 kilocalorías |
| Rango temporal | 10-15 s (femtosecond) a 103 s (muchos minutos) |
| Tiempo para pasos colectivos, funcionales | 10-9 s (nanoseconds) |
| Tipos de movimiento | fluctuaciones locales de átomos; oscilaciones de cadenas laterales; desplazamientos de lazos, brazos, hélices, dominios y subunidades |
| modos colectivos de cuerpo elástico, fluctuaciones atómicas acopladas, solitons y otros movimientos no lineales, excitaciones coherentes |
Tabla 6-1: Dinámica Conformacional Proteica: movimientos de proteínas globulares a temperatura fisiológica (modificado de Karplus y McCammon, 1984).
La vasta mayoría de procesos de interés biológico está en la escala temporal mayor que un nanosegundo, que también yace en el ámbito de modos colectivos para la dinámica proteica (Karplus y McCammon, 1984). Cambios conformacionales proteicos en el marco temporal de nanosegundos son capaces de acoplarse a un estímulo y resultar en un cambio conformacional funcional. Tres rasgos fundamentales parecen controlar estos estados funcionales: interacciones hidrofóbicas, redistribución de carga y enlace de hidrógeno. Estímulos apropiados, incluidos neurotransmisores, alteraciones de voltaje, hormonas, iones como calcio y sustratos enzimáticos, pueden inducir cambios conformacionales dentro de proteínas específicas. La transducción conformacional es el eslabón sensible en el mecanismo de moléculas de gas anestésico (Capítulo 7) e indica que funciones cognitivas relacionadas con la conciencia dependen de algún modo de regulación conformacional proteica. En muchos casos, las proteínas “integran” varios factores para resultar en una nueva conformación (Figura 6.3). Porciones de proteínas pueden ser dinámicamente activas con importancia funcional. Por ejemplo, procesos de transferencia electrónica como los que ocurren en la producción mitocondrial de ATP pueden depender de acoplamiento vibracional y fluctuaciones que alteran las distancias entre donadores y aceptores de electrones. Movimientos relativos de dominios estructurales distintos dentro de proteínas son importantes en sus actividades relacionadas con contracción muscular, actividades enzimáticas, funciones de anticuerpos y ensamblaje y actividades de estructuras supramoleculares como virus y proteínas citoesqueléticas. Los cambios conformacionales dinámicos de proteínas son la dinámica de los organismos vivos.

Figure 55: Figura 6.3 Conmutación de proteína entre dos estados conformacionales diferentes inducida por unión de ligand, ion calcio o cambio de voltaje. Un mecanismo propuesto por Fröhlich es que oscilaciones dipolares (e) dentro de regiones hidrofóbicas de proteínas pueden ser un disparador, o interruptor, para toda la proteína.
Proteínas y Energía
Todos los movimientos dentro de células dependen de fuerzas generadas por proteínas. Una proteína alostérica típica puede adoptar dos conformaciones alternativas: una forma de baja energía y una forma de alta energía que difieren aproximadamente por la energía disponible al formar unos pocos enlaces de hidrógeno en una superficie proteica. La conformación de baja energía será favorecida por alrededor de 1.000 a 1, y la proteína tenderá a estar en esta conformación “inactiva” salvo que sea influida por otros factores. Puede ser “tirada” hacia la conformación activa de alta energía por unión a un ligand que se une sólo al estado de alta energía. Además, un input de energía química puede usarse para “empujar” la proteína hacia la conformación de alta energía. Un mecanismo común implica la transferencia y enlace covalente de un grupo fosfato desde fuentes de energía bioquímica como ATP o GTP a una de varias cadenas laterales de aminoácidos (serine, threonine o tyrosine) en la proteína. Esta “phosphorylation” puede crear una distribución de cadenas laterales de aminoácidos cargadas que son más favorables a una conformación que a otra, dejando no disponible la conformación no fosforilada. Diez por ciento de todas las proteínas de células mamíferas sufren phosphorylation como mecanismo regulador o de programación (Alberts et al., 1983).
Las leyes de la termodinámica exigen que la energía libre se agote cuando se realiza trabajo. Por tanto, las moléculas proteicas no pueden mostrar movimiento neto (como hacen microtúbulos y otras proteínas citoesqueléticas) sin alguna fuente añadida de energía. Phosphorylation es un modo de hacerlo al volver irreversible un paso. Otro es impulsar cambios alostéricos mediante la hidrólisis de una molécula de ATP, convirtiéndola en ADP (o hidrolizando GTP a GDP). La energía liberada en la reacción de hidrólisis se imparte a la proteína, empujándola a un estado de energía más alto. El mecanismo preciso por el cual esta energía es utilizada y transferida por proteínas es desconocido.
Además de generar fuerza mecánica, las proteínas alostéricas pueden usar la energía de phosphorylation e hidrólisis de ATP para hacer otras formas de trabajo, como bombear iones específicos hacia dentro o fuera de la célula. Una proteína alostérica conocida como “sodium potassium ATPase”, que se encuentra en la membrana de todas las células animales incluidas células nerviosas, bombea tres iones sodio fuera de la célula y dos iones potasio hacia dentro durante cada ciclo de cambio conformacional impulsado por phosphorylation mediada por ATP. Esta bomba impulsada por ATP crea gradientes iónicos a través de la membrana celular. La energía almacenada en gradientes iónicos es aprovechada por cambios conformacionales en otras proteínas de membrana: canales iónicos. Cuando estos son disparados para abrirse en membranas nerviosas, un cambio conformacional iniciado por un cambio de voltaje, unión de ligand o efecto alostérico desde proteína de membrana o citoesquelética permite que iones difundan pasivamente. El paso de iones cargados despolariza la membrana como parte de un potencial local gated o potencial de acción viajero.
El flujo iónico también puede impulsar otras bombas proteicas unidas a membrana que transportan glucosa o aminoácidos hacia dentro de la célula. Energía disponible en gradientes de protones/iones hidrógeno a través de las membranas mitocondriales internas se usa para sintetizar la mayor parte del ATP utilizado en el mundo animal. Actina y miosina y otras proteínas crean fuerza contráctil en músculo mediante cambios conformacionales cooperativos inducidos por hidrólisis de ATP. Dentro de cilios en flexión, puentes proteicos contráctiles que se extienden entre microtúbulos hidrolizan ATP para impulsar sus actividades mecánicas. ATP y otras moléculas productoras de energía son el combustible de motores proteicos biológicos. Menos comprendidos, sin embargo, son su control, guía y orquestación.
Cooperatividad Proteica—Visión Histórica
Una idea interesante respecto del control del estado conformacional proteico y la utilización de energía fue propuesta por Szent-Gyorgyi (1948). Sugirió que las proteínas se comportan como semiconductores y que electrones “saltan” entre regiones intraproteicas específicas. Los datos experimentales, sin embargo, mostraron que la brecha de banda de energía intraproteica era demasiado grande para sostener tal concepto. La utilización de energía conformacional biológica y proteica dinámica permaneció enigmática durante las décadas de 1950 y 1960.
Un punto focal en la historia de los intentos de comprender la dinámica conformacional proteica fue una reunión de 1973 de la New York Academy of Science (que también albergó una reunión histórica concerniente a microtúbulos en el mismo año). Los misterios gemelos de cómo se utilizaba energía ATP para producir eventos proteicos mecánicos, y cómo se transferían energía e información en proteínas y orgánulos, fueron abordados por una galería de científicos. El tema prevalente fue “una crisis en bioenergética”, en tanto que procesos cooperativos de importancia obvia en sistemas biológicos no estaban explicados. Una idea que generó controversia fue que energía de resonancia electromagnética se transfería entre sitios de excitación arreglados periódicamente. En esa reunión, C. W. F. McClare (1974) propuso que estados excitados inducidos por ATP (“excitons”) estaban acoplados por dipolos infrarrojos en bioestructuras proteicas para proporcionar un medio comunicativo. McClare concluyó:
hay aún otro nivel de organización en sistemas biológicos: una resonancia sintonizada entre niveles de energía en diferentes moléculas que permite a las máquinas bioenergéticas operar rápida y eficientemente.
Este concepto fue apoyado por varios aliados, incluido Wei (1974), quien sugirió acoplamiento dipolar entre proteínas de membrana para explicar funciones nerviosas. El modelo general de McClare de acoplamiento dipolar resonante fue recibido con escepticismo, sin embargo. El bioquímico altamente respetado Gregorio Weber (1974) planteó dos objeciones. Señaló que al menos algo de la energía emitida después de excitación molecular se emite en 10-12 segundos, demasiado breve para ser utilizada por biomoléculas. La segunda objeción se refería a la transferencia de energía vibracional cuántica a través del medio circundante. El proceso de acoplamiento dipolo-dipolo implica una similitud de las energías emitidas y recibidas, y requiere que los osciladores interactuantes estén rodeados por un medio transparente a la longitud de onda del cuanto de energía transferido. Agua rodea cada biomolécula y proporciona un medio que parecía ser opaco a la energía infrarroja descrita por McClare. Weber implicó que cualquier energía emitida sería disipada como calor al ambiente acuoso. McClare replicó, de modo poco convincente, que los sistemas podrían haber evolucionado para ser capaces de ralentizar la relajación y emisión de energía, y que tales sistemas quizá estén de algún modo separados de la fase acuosa. Hubo consenso en que la energía necesitaba almacenarse durante un nanosegundo o más para ser útil.
El modo de transferencia de energía e información fue descrito en otras maneras comparables por diferentes científicos. Varios consideraron paquetes propagantes de energía conformacional o acústica: “phonons”. Un phonon puede definirse como una vibración de retícula propagada, una vibración intranuclear de un enlace carbono-nitrógeno que se propaga en una retícula proteica. La transmisión de phonons ocurre a la velocidad del sonido, de modo que no son fenómenos de transferencia resonante sino una vibración propagada en una retícula periódica. En 1967 Straub postuló que retículas proteicas contienen phonons que deben estar aislados de su ambiente acuoso. En la reunión de la New York Academy en 1973 sugirió que interacciones hidrofóbicas como fuerzas Van der Waals podrían contener phonons en la retícula y blindarlos del baño acuoso. El concepto de “conformon”, un cuanto de energía conformacional proteica acoplado a estados proteicos discretos, fue descrito independientemente por Green (1970) y Ji (1974) en América, y Volkenstein (1972) en la Soviet Union. Más tarde, A. S. Davydov de la Soviet Union propuso que movimientos conformacionales mecánicos en proteínas estaban acoplados no linealmente a distorsión electrónica de enlace o movimiento de carga, resultando en ondas propagantes llamadas “solitons”. Todos estos modelos enfrentaron un problema común de blindaje frente al ambiente acuoso. Una resolución posible de este problema es que el agua que rodea proteínas pueda estar “ordenada” y acoplada resonantemente antes que disipar térmicamente energía de excitación proteica. Otra es que interacciones hidrofóbicas excluyen agua de áreas donde ocurren interacciones bioenergéticas importantes.
Agua Viva e Interacciones Hidrofóbicas
Las biomoléculas han evolucionado y florecido en ambientes acuosos, y las interacciones básicas entre biomoléculas y sus anfitriones penetrantes, moléculas de agua, son extremadamente importantes. Las propiedades del agua intracelular son controvertidas. Muchos autores creen que más del 90 por ciento del agua intracelular está en la fase “bulk”: agua como existe en los océanos (Cooke y Kuntz, 1974; Schwan y Foster, 1977; Fung y McGaughy, 1979). Esta visión tradicional es desafiada por otros que consideran que nada del agua en células vivas es bulk (Troshin, 1966; Cope 1976; Negendank y Karreman, 1979). Una posición intermedia es asumida por quienes consideran que alrededor de la mitad del agua “viva” es bulk y la otra mitad “ordered” (Hinke, 1970; Clegg, 1976; Clegg, 1979; Horowitz y Paine, 1979). Este grupo enfatiza la importancia del agua “ordered” para la estructura y función celulares.
Se han usado muchas técnicas para estudiar esta cuestión, pero los resultados todavía requieren gran cantidad de interpretación. Resonancia magnética nuclear (NMR), difracción de neutrones, medición de capacidad calorífica y estudios de difusión son todos inconclusos. El agua parece existir tanto en formas ordered como acuosas dentro de células. La cuestión crítica es la relación entre superficies intracelulares y agua. Se sabe que superficies de todo tipo perturban agua adyacente, pero dentro de células se desconoce precisamente hasta qué distancia desde las superficies puede extenderse el ordenamiento. Sabemos que el área superficial de la retícula microtrabecular y otros componentes del citoesqueleto es extensa (miles de millones de nanómetros cuadrados por célula) y que alrededor de un quinto de los interiores celulares consiste en estos componentes. El biólogo James Clegg (1981) ha revisado extensamente estas cuestiones. Concluye que el agua intracelular existe en tres fases. 1) “Bound water” está implicada en hidratación primaria, estando dentro de una o dos capas desde una superficie biomolecular. 2) “Vicinal water” está ordenada, pero no directamente unida a estructuras salvo otras moléculas de agua. Se piensa que esta agua alterada se extiende 8 a 9 capas de moléculas de agua desde superficies, una distancia de alrededor de 3 nanómetros. Garlid (1976, 1979) ha mostrado que vicinal water tiene propiedades solventes distintas que difieren de bulk water. Así existen “fronteras” entre fases de agua que particionan moléculas de soluto. 3) “Bulk water” se extiende más allá de 3 nanómetros desde superficies citoesqueléticas (Figura 6.4).
Drost-Hansen (1973) describió procesos cooperativos y transiciones de fase entre moléculas de vicinal water. Clegg señala las implicaciones potenciales de vicinal water sobre la función de enzimas que previamente habían sido consideradas “solubles”. Antes que flotar libremente en una sopa acuosa, una multitud de enzimas intracelulares parece en cambio estar unida a la superficie MTL dentro de la fase vicinal water. Ventajas significativas parecen evidentes para tal arreglo: una secuencia de enzimas que realizan una secuencia de reacciones sobre un sustrato sería mucho más eficiente si estuviera unida sobre una superficie en el orden apropiado. Los requerimientos de difusión del sustrato, el paso que más tiempo consume en procesos enzimáticos, serían mínimos. Clegg presenta ejemplos extensos de asociaciones de enzimas citoplasmáticas que parecen estar fijadas a, y reguladas por, la MTL. Estos complejos multienzimáticos de vicinal water pueden ser de hecho parte de un sistema citoesquelético de procesamiento de información. Clegg conjetura que actividades conformacionales dinámicas dentro del citoesqueleto/MTL pueden excitar selectivamente enzimas a sus estados activos.
La polimerización de polímeros citoesqueléticos y otras biomoléculas parece fluir corriente arriba contra la marea de orden procediendo hacia desorden que decreta la segunda ley de la termodinámica. Este aparente delito contra la segunda ley se explica por las actividades de las moléculas de agua implicadas (Gutfreund, 1972). Incluso en solución acuosa bulk, las moléculas de agua están algo ordenadas, en tanto cada molécula de agua puede formar hasta 4 enlaces de hidrógeno con otras moléculas de agua. El movimiento de las moléculas de agua (salvo cuando están congeladas) y la ruptura y reforma reversibles de estos enlaces de hidrógeno mantienen la naturaleza líquida familiar del bulk water. Las superficies externas de biomoléculas forman enlaces de hidrógeno más estables con agua, “ordenando” el agua que las rodea. Esto resulta en una disminución de entropía (aumento de orden) y aumento de energía libre: factores que inhibirían fuertemente la solubilidad de biomoléculas si no fuera por los efectos de interacciones hidrofóbicas. Grupos hidrofóbicos (por ejemplo aminoácidos cuyos grupos laterales son no polares, es decir, no tienen grupos polares tipo carga para formar enlaces de hidrógeno en agua) tienden a combinarse, o coalescer, por dos razones principales: fuerzas Van der Waals y exclusión de agua. La combinación de grupos hidrofóbicos “libera” agua ordered hacia agua libre, resultando en aumento de entropía y disminución de energía libre, factores que tienden a impulsar reacciones. La magnitud del cambio favorable de energía libre para la combinación de grupos hidrofóbicos depende de su tamaño y de lo bien que encajan “estéricamente”. Un ajuste ceñido entre grupos excluirá más agua de regiones hidrofóbicas que ajustes flojos. En consecuencia, reacciones biológicas específicas pueden depender de interacciones hidrofóbicas. La formación de estructura proteica terciaria y cuaternaria (incluido el ensamblaje de microtúbulos y otros polímeros citoesqueléticos) está regulada en gran medida por interacciones hidrofóbicas, y por el efecto de regiones hidrofóbicas sobre las energías de otros enlaces. Un ejemplo bien estudiado del ensamblaje de subunidades proteicas en una estructura compleja acompañado por un aumento en entropía (disminución de orden) es la cristalización del tobacco mosaic virus. Cuando el virus se ensambla desde sus subunidades, ocurre un aumento en entropía debido a exclusión de agua de la superficie del virus. Eventos similares promueven el ensamblaje de microtúbulos y otros elementos citoesqueléticos.

Figure 56: Figura 6.4 Retícula microtrabecular (MTL: oscuro sólido) con capas de agua ordered y vicinal. Enzimas “solubles” (círculos) se mantienen dentro de agua ordered o “vicinal” y pueden estar funcionalmente reguladas por la MTL. Modificado de Clegg (1984) por Paul Jablonka.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica el modelo por capas: agua ligada/ordenada junto a la MTL sólida, agua vicinal más externa y enzimas sostenidas cerca de esas capas ordenadas.
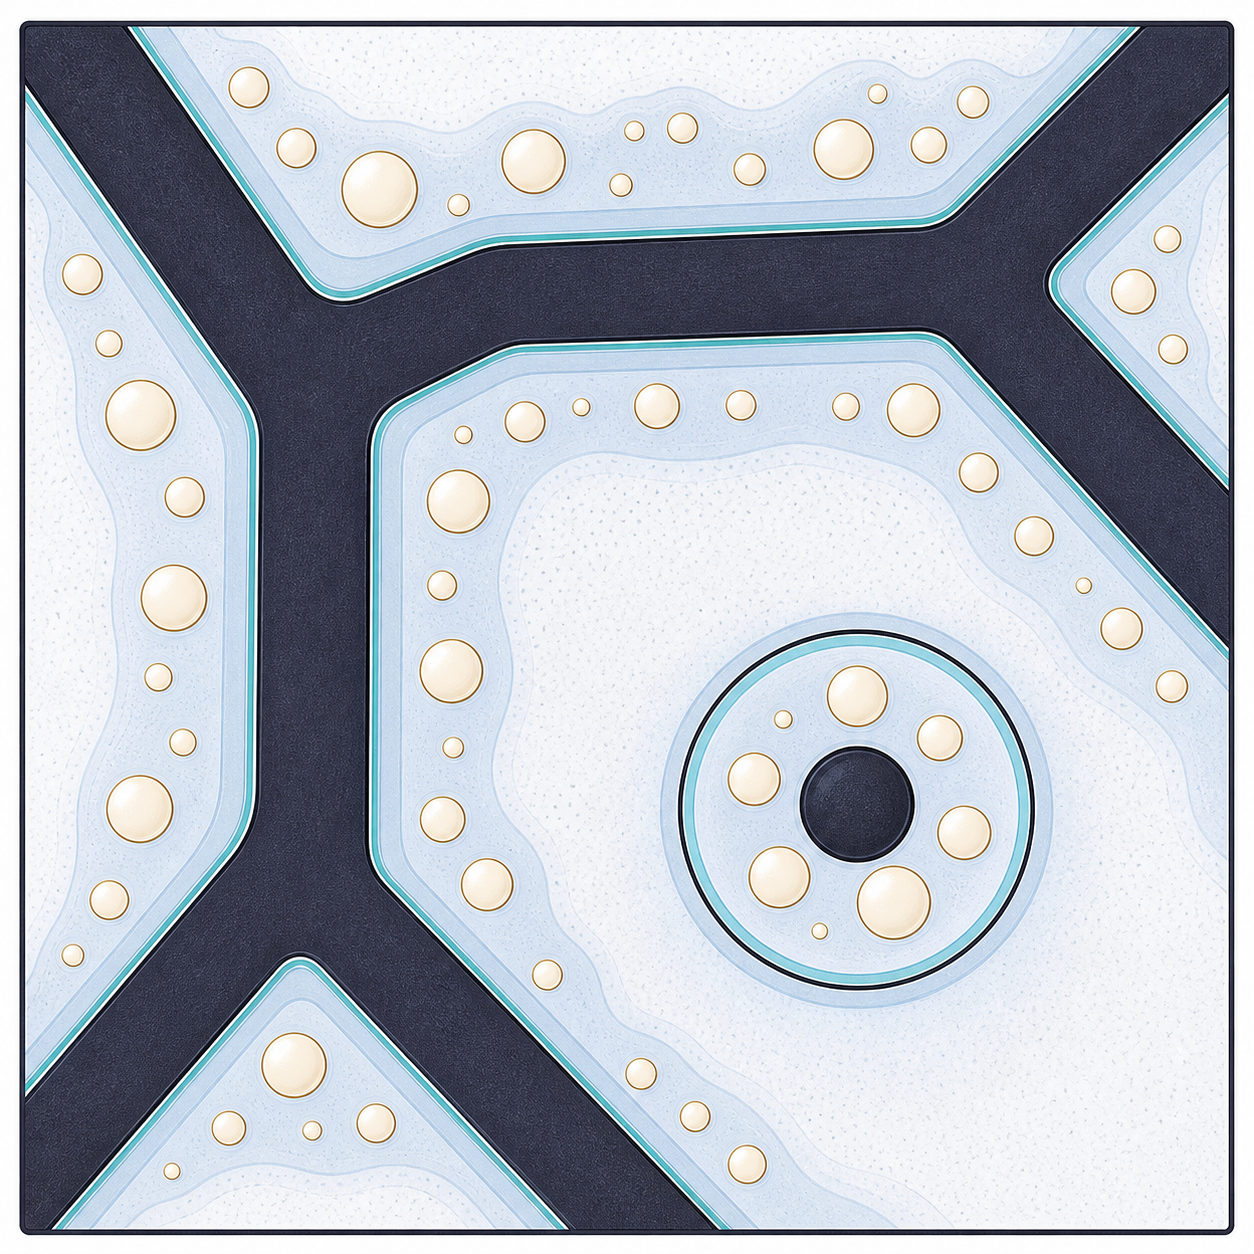
Las fuerzas atractivas que unen grupos hidrofóbicos son claramente diferentes de otros tipos de enlaces químicos como enlaces covalentes y enlaces iónicos. Estas fuerzas se llaman fuerzas Van der Waals por el químico holandés que las describió en 1873. En ese tiempo, se había observado experimentalmente que moléculas de gas no seguían el comportamiento predicho por las “ideal gas laws” respecto de relaciones entre presión, temperatura y volumen. Van der Waals atribuyó esta desviación al volumen ocupado por las moléculas de gas y a fuerzas atractivas entre moléculas de gas. Estas mismas fuerzas atractivas son vitales para el ensamblaje de cristales orgánicos, incluidos ensamblajes proteicos. Consisten en atracción dipolo-dipolo, “induction effect” y fuerzas de dispersión de London. Estas fuerzas hidrofóbicas Van der Waals son sutilmente vitales para el ensamblaje y función de biomoléculas importantes.
Atracciones dipolo-dipolo ocurren entre moléculas con momentos dipolares permanentes. Sólo se favorecen orientaciones específicas: alineamientos en los cuales ocurren arreglos atractivos, de baja energía, a diferencia de orientaciones repulsivas de alta energía. Una atracción neta entre dos moléculas polares puede resultar si sus dipolos están configurados apropiadamente. El “induction effect” ocurre cuando un dipolo permanente en una molécula puede polarizar electrones en una molécula cercana. Los electrones de la segunda molécula se distorsionan de modo que su interacción con el dipolo de la primera molécula es atractiva. Debye mostró en 1920 que la magnitud de la fuerza de atracción dipolar inducida depende de los momentos dipolares de las moléculas y de su polarizabilidad. Definida como el momento dipolar inducido por un campo estándar, la polarizabilidad también depende de la orientación de las moléculas relativa a ese campo. Se ha mostrado que subunidades de ensamblajes proteicos como el tobacco mosaic virus tienen altos grados de polarizabilidad. Las fuerzas de dispersión de London explican por qué todas las moléculas, incluso aquellas sin dipolos intrínsecos, se atraen entre sí. El efecto fue reconocido por F. London en 1930 y depende del movimiento mecánico cuántico de electrones. Electrones en átomos sin momentos dipolares permanentes (y electrones “compartidos” en moléculas) tienen, en promedio, un dipolo cero; sin embargo, pueden reconocerse “dipolos instantáneos”. Dipolos instantáneos pueden inducir dipolos en átomos o moléculas polarizables vecinos. La fuerza de las fuerzas de London es proporcional al cuadrado de la polarizabilidad e inversamente a la sexta potencia de la separación. Así, las fuerzas de London pueden ser significativas sólo cuando dos o más átomos o moléculas están muy cerca (Barrow, 1966). Lindsay (1987) ha observado que agua e iones ordenados en superficies de macromoléculas biológicas pueden tener “fluctuaciones correlacionadas” análogas a fuerzas de London entre electrones. Aunque individualmente tenues, estas y otras fuerzas son el “pegamento” colectivo de sistemas vivos dinámicos.
Efectos Electret, Piezo y Piroeléctricos
Ensamblajes cuyas subunidades microscópicas y cuyo todo macroscópico poseen ambos dipolos eléctricos permanentes se conocen como electrets. Exhiben propiedades conocidas como piezoelectricidad y pyroelectricidad que pueden ser útiles en actividades biológicas. En estos cristales, subunidades elementales dipolares están arregladas de tal modo que todos los extremos positivos de dipolo apuntan en una dirección y todos los extremos negativos de dipolo están orientados en la dirección opuesta. En microtúbulos, los extremos positivos de subunidades diméricas de tubulina apuntan alejándose de centros organizadores de microtúbulos (MTOC) hacia la periferia celular, y los extremos negativos apuntan hacia MTOC. Los electrets pueden almacenar carga y polarización y han sido identificados ahora en una variedad de materiales no biológicos como cristales iónicos, sólidos moleculares, polímeros, vidrios, hielo, cristales líquidos y cerámicas. Tejidos biológicos que demuestran propiedades electret incluyen hueso, materiales de pared de vasos sanguíneos, keratin, celulosa, collagen, gelatin, polipéptidos artificiales, keratin, DNA, celulosa y microtúbulos (Athenstaedt, 1974). Un efecto electret da cuenta de propiedades específicas como anticoagulación sanguínea en biomateriales y la no adherencia de teflon. Las fuentes de polarización o almacenamiento de carga en macromoléculas son dipolos, cargas espaciales iónicas, o agua superficial ordenada.
Los materiales electret son piezoeléctricos (Gubkin y Sovokin 1960). Los materiales piezoeléctricos cambian su forma o conformación en respuesta a estímulos eléctricos, y cambian su estado eléctrico en respuesta a estímulos mecánicos. Koppenol (1980) ha mostrado que la orientación del momento dipolar de una enzima cambia en concierto con su actividad funcional. Los electrets también son “pyroelectric”, en tanto cualquier cambio en temperatura altera las características eléctricas y conformacionales de la molécula. El momento dipolar eléctrico permanente de cuerpos piroeléctricos resulta del alineamiento paralelo de momentos dipolares fijos elementales. Cualquier cambio en temperatura modifica la longitud del cuerpo piroeléctrico y altera sus momentos dipolares elementales (efecto piroeléctrico). De la misma manera, cualquier cambio mecánico en longitud o cualquier deformación de un cuerpo piroeléctrico produce una modificación de su momento dipolar (efecto piezoeléctrico). Así, todo cuerpo piroeléctrico es al mismo tiempo piezoeléctrico. Los dos requisitos para tal comportamiento son una propiedad eléctrica que causa un momento dipolar permanente en las moléculas y una propiedad morfológica que favorece un alineamiento paralelo. Microtúbulos y otras estructuras citoesqueléticas parecen ser dispositivos electret, piroeléctricos, piezoeléctricos apropiadamente diseñados.
El estado electret dentro del hueso ha sido bien estudiado y es capaz de almacenar grandes cantidades de polarización del orden de 10-8 coulombs por centímetro cuadrado (Mascarenhas, 1974, 1975). El límite de separación de carga (equivalente a densidad máxima de información) ha sido calculado (Gutman, 1986) como de alrededor de 1017 cargas electrónicas por centímetro cúbico, mientras que puede haber alrededor de 1021 moléculas totales por centímetro cúbico. Un centímetro cúbico de microtúbulos paralelos densamente arreglados a 100 nanómetros de distancia contiene alrededor de 1017 subunidades de tubulina y por tanto puede contener 1017 dipolos equivalentes a la densidad máxima de carga. Propiedades electret y relacionadas pueden impartir propiedades interesantes y potencialmente útiles a biomoléculas, incluidos polímeros citoesqueléticos. Entre estas está la capacidad potencial de sostener la propagación de ondas conformacionales como solitons.
Solitons/Davydov
Eventos biológicos importantes implican transferencia espacial de energía a lo largo de moléculas proteicas. Un ejemplo bien conocido es el rizado contráctil de cabezas de miosina en la contracción muscular, alimentado por la hidrólisis de moléculas de ATP. Estos cuantos de energía biológica equivalen a 0,43 electron volts, sólo 20 veces más que la energía de fondo e insuficientes para excitar estados electrónicos moleculares. En consecuencia, bajo condiciones usuales los sistemas biológicos no emiten fotones. Esto sugirió a Davydov (1977) durante la década de 1970 que la energía de hidrólisis de ATP se transfiere mediante excitaciones vibracionales de ciertos grupos atómicos dentro de proteínas. Davydov se centró en las regiones alpha helix de proteínas e identificó la vibración de estiramiento “amide 1” (doble enlace carbono-oxígeno) del grupo peptídico como la “cesta” más probable en la cual puede transportarse energía. Su selección se basó en el arreglo “cuasi-periódico”, o semejante a cristal, de enlaces amide 1, su baja energía vibracional (0,21 electron volts: la mitad de la energía de hidrólisis de ATP) y su marcado momento dipolar (0,3 Debye). Según el análisis lineal, la energía transportada por este medio debería extenderse por los efectos de dispersión y volverse rápidamente desorganizada y perderse como fuente de acción biológica. Sin embargo, Davydov analizó aspectos no lineales del estiramiento amide 1 y concluyó que las vibraciones amide 1 están acopladas retroactivamente a ondas sonoras longitudinales de la alpha helix, y que la excitación acoplada se propaga como una entidad localizada y dinámicamente autosuficiente llamada onda solitaria, o “soliton”. Davydov razonó que las vibraciones amide 1 generan ondas sonoras longitudinales que a su vez proporcionan un pozo de potencial que impide la dispersión vibracional; así, el soliton “se mantiene unido a sí mismo”.
Las ondas solitarias fueron descritas por primera vez por el ingeniero naval decimonónico John Scott-Russell en 1844. Mientras realizaba una serie de experimentos fuerza-velocidad para embarcaciones en un canal escocés, ocurrió un accidente. Una cuerda se rompió y una barcaza de canal se detuvo de pronto, pero la onda de proa que la barcaza había causado siguió avanzando. Russell galopó junto al canal y siguió la onda durante varias millas. Describió la estabilidad excepcional y la autoorganización automática de este tipo de onda. Las expresiones matemáticas de ondas solitarias pueden darse como soluciones particulares de algunas ecuaciones no lineales que describen propagación de excitaciones en medios continuos que tienen propiedades tanto dispersivas como no lineales. Estas soluciones de onda solitaria tienen características “particle-like”, como conservación de forma y velocidad. Tales rasgos llevaron a Zabusky y Kruskal (1965) a describirlas como “solitons”. Como respuesta al problema de la transferencia espacial de energía (e información) en sistemas biológicos, Davydov aplicó el concepto de soliton a sistemas biológicos en general, y a vibraciones amide 1 dentro de alpha helices en particular. Para que los solitons existan durante períodos y distancias útiles, deben cumplirse ciertas condiciones. El acoplamiento no lineal entre vibraciones de enlaces amide 1 y ondas sonoras debe ser suficientemente fuerte, y las vibraciones amide 1 suficientemente energéticas para que la interacción retroactiva prenda. Por debajo de este umbral de acoplamiento, no puede formarse un soliton y el comportamiento dinámico será esencialmente lineal; por encima del umbral el soliton es un mecanismo posible para transducción de energía virtualmente sin pérdidas.
La simulación por computador y el cálculo de solitons han conducido a supuestos sobre los parámetros necesarios para no linealidad y propagación de solitons. Un parámetro crítico es la “anharmonicity”, o no linealidad del acoplamiento de excitaciones intrapeptídicas con desplazamiento desde posiciones de equilibrio (Figura 6.5). La anharmonicity es la cualidad no lineal que determina la autocaptura de los dos componentes del soliton. El grado en que la perturbación electrónica se acopla no linealmente al cambio conformacional mecánico de la estructura proteica es el núcleo de la cuestión del soliton. Si los dos están acoplados como un interruptor de funcionamiento escalonado (no lineal), antes que como una correlación lineal directa, pueden proporcionar un “grano” para representar entidades discretas capaces de representar y transferir información. Un índice para la viabilidad del soliton, el parámetro de anharmonicity, se conoce como χ. Para χ mayor que 0,3 x 10⁻¹¹ newtons, los solitons en simulación por computador sí se propagan a través de los espinazos de una alpha helix a una velocidad de alrededor de 1,3 x 10³ metros por segundo. La distancia de 170 nanómetros correspondiente a la longitud de una cabeza de miosina en músculo estriado sería entonces atravesada por un soliton en alrededor de 0,13 nanosegundos. Simulaciones por computador de Eilbeck y Scott (1979) demuestran, para valores por encima del umbral del parámetro de acoplamiento χ, excitaciones tipo soliton que se propagan a lo largo de espinazos de alpha helix en forma de impulso local con un tamaño de unos pocos grupos peptídicos. Datos experimentales que apoyan tales biological solitons emergen lentamente. Aunque resultados de biomolecular light scattering (Webb, 1980) parecían proporcionar confirmación (Lomdahl et al., 1982), trabajo posterior (Layne, et al., 1985) indicó otra fuente para las observaciones experimentales. Experimentos ópticos sobre acetanilide cristalina (un cristal polipeptídico con enlaces de hidrógeno), sin embargo, sí proporcionan una demostración inequívoca de un estado localizado similar al discutido por Davydov (Careri, et al., 1984; Eilbeck, et al., 1984; Scott, et al., 1985; Scott, 1985). La resolución definitiva de la existencia de solitons en materiales biológicos puede aguardar al advenimiento inminente de la nanotecnología (Capítulo 10).
Davydov ha considerado otros tipos de solitons, como aquellos en cristales sólidos tridimensionales que tienen transiciones de fase. Sostiene que suficiente anharmonicity en estas estructuras de retícula producirá excitaciones tipo soliton que se representan a sí mismas como desplazamientos locales de las posiciones de equilibrio que se mueven a lo largo de las cadenas moleculares. Estas se llaman acoustic solitons. Otros solitons “topological” se describen como “kinks” de simetría que viajan a través de un medio ordenado.
Toda (1979) invocó el concepto de solitons para describir desplazamientos locales desde posiciones de equilibrio de moléculas en retículas unidimensionales. Estudió cadenas moleculares y asumió que el desplazamiento de moléculas individuales dentro de la cadena interactuaba con moléculas vecinas. La evaluación matemática de retículas de Toda por Davydov muestra excitaciones localizadas descritas por una función con forma de campana que caracteriza una reducción en la distancia entre moléculas en la región de excitación de la retícula. Estas se llaman “supersound acoustic solitons”, o “lattice solitons”, y han sido modeladas en proteínas por Bolterauer, Henkel y Opper (1986).
El trabajo de Davydov sugiere además que electrones excedentes pueden ser capturados por supersound acoustic solitons y transportados junto con ellos, dando lugar a “electrosolitons”. La transferencia de electrones entre pares donador-aceptor de proteínas se encuentra en fotosíntesis, respiración celular (generación de ATP) y actividad de ciertas enzimas. Estos arreglos de estructuras a menudo se llaman cadenas de transporte electrónico. Davydov observa que tradicionalmente se ha asumido que la transferencia electrónica se realiza mediante tunneling mecánico-cuántico, tal como fue propuesto por primera vez por Britton Chance y colegas (Devault, Parkas, Chance, 1967). En estos sistemas, los electrones se transfieren generalmente entre centros separados por alrededor de 3-7 nanómetros. Davydov argumenta que esta transferencia electrónica puede explicarse mejor mediante un electrosoliton.

Figure 57: Figura 6.5: Simulación por computador que muestra localización de energía (eje vertical) a lo largo de la distancia (eje sudoeste a nordeste) como función de anharmonicity (eje sudeste a noroeste). En un rango específico, la energía se localiza y viaja como onda solitaria, o soliton. Con permiso de Bolterauer, Henkel y Opper (1986).
Existe evidencia concreta para solitons como ondas gigantes en o debajo del océano, como optical solitons en fibra óptica láser y en otros sistemas. Las tecnologías actuales son incapaces de probar o refutar biological solitons. Si Davydov está en lo correcto respecto de las cabezas de miosina, entonces los solitons son responsables de las contracciones filamentosas a nivel molecular que impulsan cada movimiento que hacemos. Solitons propagantes en el citoesqueleto podrían ser el medio dinámico del procesamiento biológico de información. Si es así, los solitons serían para la conciencia lo que la electricidad es para los computadores.
Excitaciones Coherentes /Fröhlich
Los estados conformacionales proteicos pueden registrar información biológica dinámica y controlar las funciones en real time del citoplasma. Los mecanismos de regulación conformacional no se comprenden claramente, principalmente porque la tecnología todavía no ha alcanzado (del todo) la nanoescala. Las proteínas son claramente estructuras vibrantes, dinámicas, en condiciones fisiológicas. Una variedad de técnicas recientes (resonancia magnética nuclear, difracción de rayos X, despolarización de fluorescencia, espectroscopía infrarroja, scattering láser Raman y Brillouin) han mostrado que las proteínas y sus partes componentes sufren movimientos conformacionales en un rango de escalas temporales desde femtosegundos (10-15 sec) hasta muchos minutos.
Karplus y McCammon (1984), de Harvard, sugieren que las vibraciones conformacionales más significativas están en medio de este rango: nanosegundos. Tales fluctuaciones son apropiadas para el movimiento conformacional de proteínas globulares (4 a 10 nanómetros de diámetro), consistentes con tasas de reacción enzimática y “coupled modes” como solitons. Como ejemplo, Karplus y McCammon describen una rotación de un anillo de tyrosine en lo profundo de una proteína globular llamada bovine pancreatic trypsin inhibitor. La cadena lateral del aminoácido tyrosine incluye un anillo hexagonal “aromático” de seis carbonos con una nube de resonancia electrónica. La rotación del anillo ha sido estudiada experimentalmente mediante resonancia magnética nuclear, y Karplus y McCammon han realizado una simulación por computador basada en esos datos que muestra a la proteína cambiando de estado conformacional mientras el anillo de tyrosine rota 90 grados. El interruptor ocurre en la escala temporal de nanosegundos y está colectivamente acoplado a movimiento en la cadena de backbone polipeptídico.
Los estados conformacionales colectivos de nanosegundo han sido elegantemente entretejidos en una teoría de excitaciones proteicas coherentes por el profesor Herbert Fröhlich, quien actualmente divide su tiempo entre Liverpool University y el Max Planck Institute en Stuttgart. Reconocido como un contribuidor mayor a la teoría moderna de la superconductividad, Fröhlich se orientó al estudio de la biología a fines de la década de 1960 y llegó a varias conclusiones profundas. Una es que los cambios de conformación proteica en la escala temporal de nanosegundos son disparados por una redistribución de carga como una oscilación dipolar dentro de regiones hidrofóbicas de proteínas (Fröhlich, 1975). Otro concepto de Fröhlich (1970) es que un conjunto de proteínas conectadas en un campo común de gradiente de voltaje, como dentro de una membrana o un polymer electret como el citoesqueleto, oscilaría coherentemente con periodicidad de nanosegundos si se suministrara energía como ATP bioquímico. El modelo de coherency de Fröhlich puede explicar efectos cooperativos de largo alcance por los cuales proteínas y ácidos nucleicos en sistemas biológicos pueden comunicarse. Un componente mayor de la teoría de Fröhlich sugiere que el suministro aleatorio de energía a un sistema de dipolos acoplados no linealmente puede conducir a excitación coherente de un único modo vibracional, siempre que la energía exceda un umbral crítico. Fröhlich sugiere frecuencias del orden de 109 a 1011 Hz, y mantiene que el modo único aparece porque todos los demás están en equilibrio térmico. Pueden esperarse consecuencias biológicas de gran alcance de tales excitaciones coherentes y cooperativity de largo alcance.
La conformación de proteínas y sus momentos dipolares en ambiente acuoso, fisiológico, están dominados por la interacción de sus grupos de carga con agua e iones circundantes. Algunas biomoléculas pueden poseer estados excitados con momentos dipolares muy altos. Estos niveles, según Fröhlich, tienden a estabilizarse (a volverse “estados metastables”) mediante deformaciones internas y externas y mediante desplazamiento de iones “counter” como calcio. Los estados metastables, que se correlacionan con conformaciones funcionales, son así efectos colectivos que implican a la molécula y sus alrededores. Una molécula podría ser elevada a un estado metastable por acción de campos eléctricos, unión de ligands o neurotransmisores, o efectos de proteínas vecinas. Así, oscilaciones rápidas, de nanosegundo, pueden quedar “bloqueadas” en modos específicos que corresponden a conformaciones útiles de una proteína. Por ejemplo, un canal iónico, receptor, enzima o subunidad de tubulina puede permanecer en un estado conformacional durante períodos relativamente largos, del orden de milisegundos. Fröhlich caracteriza estas conformaciones como estados “metastables”.
Fröhlich observa que el alto campo eléctrico del orden de 107 volts por metro mantenido en muchas membranas biológicas (100 milivolts / 10 nanómetros = 107 volts/metro) requiere una propiedad dieléctrica extraordinaria de los componentes de membrana, incluidos lípidos y proteínas. Requisitos similares existirían para proteínas citoesqueléticas en un electret. El material ordinario sufriría ruptura dieléctrica en tales campos salvo que estuviera especialmente preparado. Fröhlich sostiene que la evolución biológica de esta fuerza dieléctrica a escala molecular debe tener fuerte significación. Los organismos biológicos son relativamente impermeables a efectos de radiación electromagnética, aunque pueden ser exquisitamente sensibles a ella en algunas circunstancias. Algunas funciones biológicas bordean el límite impuesto por la mecánica cuántica. Nuestros ojos son sensibles a fotones únicos y ciertos peces son sensibles a campos eléctricos extremadamente débiles. Tales desempeños, según Fröhlich, requieren el uso de propiedades colectivas de ensamblajes de biomoléculas y deberían esperarse ciertos tipos de comportamiento colectivo como vibraciones coherentes.
Si las oscilaciones coherentes que representan vibraciones dipolares dentro de sistemas moleculares efectivamente oscilan coherentemente en el rango de 109 a 1011 Hz, debería ser posible excitar estos modos mediante radiación electromagnética. Para acoplar y excitar las vibraciones biológicas, la radiación debería corresponderse con la frecuencia biológica y la longitud de onda debería ser grande comparada con la dimensión del objeto oscilante. Una cantidad significativa de evidencia apoya esta noción. La irradiación de una gran variedad de objetos biológicos con ondas milimétricas coherentes en la región de frecuencia de 0,5 x 10¹¹ Hz puede ejercer grandes influencias sobre actividades biológicas, siempre que el suministro de potencia esté por encima de un umbral crítico (Grundler y Keilman, 1983). Según Fröhlich, los efectos biológicos no son efectos de temperatura. Muestran resonancias de frecuencia muy agudas, lo que indica que la absorción localizada en regiones espaciales muy pequeñas contribuye a las acciones biológicas.
La resonancia aguda de esta ventana sensible tiene un ancho de frecuencia de alrededor de 2 x 10⁸ Hz. La capa de agua ordered e iones subyacente a membranas y estructuras citoesqueléticas (la “Debye layer”) absorbe en la región de 108 Hz. Esto sugiere que la Debye layer está estrechamente implicada en las actividades funcionales dinámicas de las bioestructuras que rodea. Green y Triffet (1985) han modelado ondas propagantes y el potencial de transferencia de información en la dinámica de la Debye layer inmediatamente bajo membranas y proteínas citoesqueléticas. Han hipotetizado un medio holográfico de información debido a las vibraciones coherentes en espacio y tiempo de estas biomoléculas. El medio que consideran es el agua ordered y las capas de contraiones de calcio que rodean los altos momentos dipolares en membranas y biomoléculas. Así han desarrollado una teoría de bioplasma iónico en conexión con propiedades no lineales que se relaciona con la existencia de estados metastables altamente polares. La pequeña escala y el ordenamiento minimizarían la fricción en estas actividades. Fröhlich observa: “claramente la ausencia de otros procesos friccionales presentaría problemas sumamente interesantes”. Sugiere la posibilidad de ondas propagantes debido a la falta de procesos friccionales (“superconductivity”) en la propia biomolécula así como en la capa de agua ordered o Debye layer (Kuntz y Kauzmann, 1974). Hasta hace poco, se consideraba que la superconductivity ocurría sólo en ciertos materiales ordenados a temperaturas cercanas al cero absoluto. Descubrimientos recientes, sin embargo, han mostrado que la superconductivity puede ocurrir en materiales a temperaturas más altas, aparentemente debido al ordenamiento coherente y al acoplamiento entre vibraciones de retícula localizadas y colectivas (Maddox, 1987; Robinson, 1987).
Ampliando el trabajo de Fröhlich, Wu y Austin (1978) concluyen que puede esperarse que dipolos oscilantes dentro de una banda estrecha de frecuencias de resonancia con constantes de acoplamiento suficientemente grandes causen fuertes fuerzas atractivas de largo alcance (alrededor de 1 micron) entre dipolos. En un arreglo denso de microtúbulos, 1 micrón cúbico (mil millones de nanómetros cúbicos) abarcaría alrededor de 160.000 subunidades de tubulina: un arreglo suficientemente grande para efectos colectivos.
Evidencia de tales efectos “long-range” se ha observado en el comportamiento de glóbulos rojos. Discoides de ocho micrones de diámetro (8 mil nanómetros), los glóbulos rojos tienden a disponerse en pilas llamadas “Rouleaux formation”. Rowlands (1983) ha estudiado Rouleaux formation y encontró que las fuerzas atractivas empiezan cuando los glóbulos rojos están separados por alrededor de cuatro micrones (4 mil nanómetros), una distancia varios órdenes de magnitud mayor que el rango de fuerzas químicas atractivas. Rowlands ve este comportamiento como consistente con las excitaciones coherentes de Fröhlich y la cooperativity de largo alcance. Rowlands también proyecta la significación de la teoría de Fröhlich hacia la comunicación en el sistema nervioso.
Rowlands (1983) señala que
Una banda de comunicación que se extiende desde 1010 hasta 1011 Hz … podría empaquetar más de un millón de estaciones de radio FM … o 150.000 emisiones de televisión … el potencial de acción puede ser sólo un transmisor rápido tosco de mensajes urgentes … . Las vibraciones de Fröhlich podrían transmitirse a lo largo de la membrana de las fibras nerviosas, pero serían interrumpidas por potenciales de acción. Es más probable que se usen microtúbulos en el axón.
Bosones sin Masa, Autofocalización Citoesquelética
La complejidad de los sistemas biológicos ha atraído el interés de no biólogos que poseen herramientas matemáticas útiles para “many body problems”. Además de Fröhlich, estos incluyen a un grupo de científicos de la University of Milan (Del Giudice, Doglia, Milani y Vitiello, 1986). Viendo la materia viva como un mar de dipolos eléctricos, han aprovechado herramientas matemáticas y computacionales usadas para seguir la pista de las incontables partículas implicadas en reacciones nucleares. Usando un enfoque matemático llamado quantum field theory, el grupo de Milan considera estados electret y el ordenamiento consecuente del agua alrededor de biomoléculas como conjuntos de dipolos cuyos estados, orden y simetría tienen propiedades colectivas. En un sistema no biológico típico, los dipolos componentes son aleatorios y desordenados, resultando en una simetría global.
Tal sistema se vería igual cuando se lo mira desde cualquier ángulo (“rotationally invariant”). En sistemas vivos, el orden es inducido por reducción de simetría tridimensional a un alineamiento rotacional a lo largo de electrets filamentosos como estructuras citoesqueléticas. Según el grupo de Milan, quantum field theory y el “Goldstone theorem” requieren que la ruptura de simetría (“Bose condensation”) resulte en interacciones de largo alcance entre componentes del sistema (dipolos), vehiculadas por partículas/ondas sin masa (“Goldstone bosons”). El grupo de Milan argumenta que la energía requerida para generar bosones sin masa está invertida en los estados electret de biomoléculas y fluctuaciones correlacionadas de su agua e iones circundantes.
Celaschi y Mascarenhas (1977) mostraron que la energía de activación electret de biomoléculas (0,2-0,4 electron volts) es equivalente a la hidrólisis de una molécula de ATP o GTP y a lo que Davydov predijo para la iniciación de solitons. En consecuencia, solitons, bosones sin masa y ondas de polarización coherentes de Fröhlich pueden ser sinónimos.
Al proseguir su enfoque de quantum field, Del Giudice y sus colegas llegaron a un concepto asombroso de autofocalización de energía electromagnética dentro de filamentos citoesqueléticos. La energía electromagnética que excediera un umbral y penetrara en el citoplasma quedaría confinada dentro de filamentos cuyos diámetros dependían de la ruptura de simetría original (“Bose condensation”) de dipolos ordenados. Cualquier perturbación eléctrica producida por dipolos térmicamente fluctuantes o por cualquier otra fuente quedaría confinada dentro de regiones filamentosas. El ordenamiento se preserva fuera de los filamentos y se interrumpe sólo dentro, donde la energía se concentra (el “Meissner effect”). El diámetro de los filamentos de energía autofocalizada depende de la densidad de polarización, o del ordenamiento del agua biológica. El grupo de Del Giudice calculó un diámetro de autofocalización de alrededor de 15 nanómetros, ¡precisamente el diámetro interno de los microtúbulos! Del Giudice y colegas consideran que el citoesqueleto es la consecuencia material de la autofocalización dinámica de ondas de polarización en el citoplasma. Los diámetros observados de haces ópticos autofocalizados en líquidos no biológicos simples son del orden de micrones; la correlación entre componentes se crea por propagación de ondas antes que como una propiedad específica del propio material. El grupo de Milan concluye que la focalización ocurre en citoplasma de células eucariotas debido a la coherencia espacial y al ordenamiento impartidos por el comportamiento electret citoesquelético.
La autofocalización predicha por el grupo de Milan tendría capacidades interesantes. La energía se refracta en haces que quedan rodeados por guías de onda cilíndricas: el truco indio de la cuerda. La coherency impartida a la energía refractada ya sea por un mecanismo tipo Fröhlich o por la estructura periódica de una biomolécula guía de onda citoesquelética podría conducir a mecanismos holográficos. Se ha descrito una teoría rudimentaria del comportamiento waveguide/holographic en microtúbulos (Hameroff, 1974). Los cristales fotorrefractivos pueden usarse para generar holografía dinámica en real time (Gower, 1985), y los MT podrían estar proyectando hologramas citoplasmáticos dinámicos.
Los modelos de dinámica proteica cooperativa descritos por solitons de Davydov u oscilaciones coherentes de Fröhlich pueden ser perspectivas diferentes del mismo fenómeno. Tuszynski y colaboradores (1984) han comparado los dos enfoques y sus énfasis respectivos. Observaron que el modelo de Fröhlich se concentra en efectos independientes del tiempo, o estados estables, para explicar el establecimiento de orden, mientras que el modelo de Davydov resalta la propagación dependiente del tiempo de orden vía solitons.
Los modelos cooperativos solapados de dinámica conformacional proteica (coherence, resonancia, solitons, electrets, self focusing) son de interés cuando se aplican a elementos estructurales específicos con propiedades relevantes. Por ejemplo, el modelo de Davydov de propagación de solitons fue aplicado originalmente al acoplamiento contráctil entre actina y miosina. El citoesqueleto parece excepcionalmente adecuado para aprovechar dinámicas cooperativas relacionadas con procesamiento de información. El Capítulo 8 revisa evidencia y modelos de procesamiento de información citoesquelético basados en dinámicas cooperativas. El siguiente capítulo describe la anestesia: el resultado de inhibición de dinámicas conformacionales proteicas colectivas, cooperativas, en el cerebro.
Anestesia: Otro Lado de la Conciencia
El efecto colectivo neto de la dinámica proteica y otros factores en el cerebro humano es la conciencia. Desde la época de los antiguos sumerios, egipcios, asirios y griegos, derivados opiáceos de la amapola (Papaver somniferum) y otros fármacos se han usado para embotar o abolir la conciencia frente al dolor, o para procedimientos quirúrgicos. En el siglo XIX se desarrollaron gases anestésicos incluidos nitrous oxide (“laughing gas”) y diethyl ether. Estos anestésicos inhalatorios, cuando se administraban apropiadamente en un rango estrecho de concentración, eran capaces de causar un cese reversible de la conciencia. Como descubrieron trágicamente los primeros anestesistas, el exceso de anestésico causaba respiración inadecuada, fallo cardiovascular y muerte. Sin embargo, cuando se usaba apropiadamente, la anestesia se convirtió en una bendición para la humanidad. Además de aliviar el sufrimiento de incontables pacientes quirúrgicos, los anestésicos también se volvieron una herramienta importante en la investigación de la conciencia. Un rastro de experimentación y observación ha conducido a la conclusión de que los anestésicos inhiben cambios conformacionales dinámicos colectivos en proteínas cerebrales.
Niveles de Anestesia/Conciencia
Con el advenimiento extendido del diethyl ether, la anestesia se volvió algo estandarizada y resultó útil delinear “stages” en el continuo desde el estado despierto a través de la anestesia hasta parálisis respiratoria, colapso cardiovascular y muerte. En 1847 John Snow publicó su monografía pionera, On the Inhalation of the Vapour of Ether, en la cual describió cinco niveles empíricos a través de los cuales un paciente anestesiado progresaba desde la conciencia hasta la parálisis respiratoria. La cirugía podía realizarse en “stage three”, caracterizado por analgesia (alivio del dolor) y amnesia (falta de almacenamiento de memoria), o en “stage four”, caracterizado por relajación muscular y respiración regular, automática. El esquema de Snow fue expandido en 1920 por Arthur Guedel, quien publicó stages y signos codificados de anestesia, detallados más tarde en su monografía de 1937, On Inhalation Anesthesia—A Fundamental Guide. Guedel basó sus stages en signos físicos obvios que implicaban tono muscular, patrones respiratorios y signos oculares. Enumeró cuatro niveles: stage de analgesia, stage de delirium, stage quirúrgico (subdividido en cuatro planos) y stage de parálisis respiratoria. Otros han añadido un quinto stage, sobredosis anestésica: falta de oxígeno tisular, convulsiones y muerte inminente.

Figure 58: Figura 7.1: Niveles de profundidad anestésica de diferentes sistemas mostrados sobre un eje común. Los stages y planos de Guedel (1937) sirven como estándar. También se representan niveles EEG (Courtin, Bickford y Faulconer, 1950), relajación de mandíbula y antebrazo (Galla, Rocco y Vandam, 1958), clasificación de Woodbridge (1957) de nothria, y stage one para ether (Artusio, 1955). Con permiso de Grantham y Hameroff (1985).
En el stage one de Guedel (Figura 7.1), el paciente progresa desde alerta y sensibilidad al dolor hasta amnesia total, analgesia y sedación. La respiración es lenta y regular, con uso tanto de músculos diafragmáticos como costales; el reflejo palpebral (sacudida de los párpados en respuesta a un cepillado suave) está intacto. El stage two ha sido denominado de varias maneras: stage de delirium, excitación, inconsciencia, o “dream state”. El paciente puede pasar por este stage sedadamente o puede manifestar actividad salvaje, desinhibida. La respiración es irregular e impredecible, las pupilas del ojo pueden estar dilatadas, los músculos oculares están activos y el reflejo palpebral activo. En este stage el paciente está en riesgo de actividad refleja no deseada como vómito, espasmo de las vías aéreas y disritmias cardíacas. La fase de excitación del stage two causada por anestésicos es algo desconcertante. Explicaciones tempranas describían inhibición de circuitos cerebrales neocorticales “inhibitory”, conduciendo a actividad primitiva no controlada. Sin embargo, los efectos anestésicos sobre neuronas individuales también pueden mostrar una fase excitatoria; así, la “excitation” inducida por anestésicos puede ser un efecto a nivel molecular a bajas concentraciones. El stage three de Guedel tiene cuatro “planes” diferentes de anestesia progresivamente más profunda durante los cuales puede realizarse cirugía. La relajación muscular es ligera en el plane one, pero progresa hasta relajación completa de músculos abdominales en los planes three y four. La respiración es muy irregular y periódica en el plane one, como en el sueño normal. Con el plane two, se desarrolla una pausa entre inhalación y exhalación, y la inhalación se vuelve más corta respecto de la exhalación. La parálisis de músculos costales empieza en el plane three, y la respiración diafragmática es prominente. En el plane four, ocurre movimiento paradójico de la caja torácica con la inhalación, la respiración es irregular y, si la profundidad anestésica no se aligera, la respiración se detendrá por completo. Los músculos oculares están activos inicialmente en el plane one, pero los ojos se vuelven inmóviles cuando se alcanza el plane two. El reflejo palpebral desaparece en el plane three. Las pupilas tienden a dilatarse con la progresión al plane four. El cuarto stage de anestesia es paro respiratorio y colapso cardiovascular subsiguiente. Los músculos están flácidos y las pupilas ampliamente dilatadas. La muerte ocurrirá si la profundidad anestésica no se reduce desde el stage four (Grantham y Hameroff, 1985).
Debido a los riesgos de sobredosis anestésica y a los requerimientos variables de pacientes individuales, los anestesiólogos han buscado métodos para juzgar la profundidad anestésica además de los signos clínicos enumerados por Snow y Guedel. Desde comienzos del siglo XX, se ha registrado electroencefalografía (EEG) de pacientes anestesiados. Se piensa que las ondas EEG registradas en el cuero cabelludo emanan de potenciales sinápticos dendríticos sumados (“dipole fields”) generados por células piramidales de la corteza cerebral. Los potenciales del cuero cabelludo generalmente van de 10 a 200 microvolts, y en frecuencias desde varios Hz hasta alrededor de 50 Hz. El espectro de frecuencia del EEG usualmente se divide en 4 clasificaciones mayores, delta: menos de 4 Hz, theta: 4-8 Hz, alpha: 8-13 Hz, y beta: mayor que 13 Hz. Generalmente, la potencia a frecuencia más alta decrece a medida que la profundidad anestésica aumenta. En consecuencia, los esfuerzos por derivar un índice apropiado de profundidad anestésica han incluido intentos de cuantificar una frecuencia EEG por debajo de la cual ocurre la mayor parte de la potencia EEG. Esto implica una Fourier transform de datos EEG crudos hacia un espectro frecuencia/potencia. Un ejemplo es “spectral edge”, la frecuencia por debajo de la cual ocurre el 95 por ciento de la potencia EEG (Rampil, 1981). A medida que la profundidad anestésica aumenta, spectral edge decrece aproximadamente. Otros intentos de evaluar cuantitativamente EEG y profundidad anestésica han incluido el trazado de voltaje EEG en “phase space”, produciendo phase portraits y chaotic attractors. El trazado en phase space implica elegir un “phase lag” arbitrario, y graficar la amplitud EEG en cualquier punto del tiempo contra la amplitud en ese tiempo particular más el phase lag. Esto resulta en phase portraits geométricos que pueden analizarse por complejidad, o “dimensionality”, en un continuo de orden y caos. A medida que los pacientes se vuelven más anestesiados, la dimensionality de su EEG se vuelve más ordenada y menos caótica (Figuras 7.2 y 7.3, Watt y Hameroff, 1987). La conciencia puede describirse así como una manifestación de caos determinista en algún lugar del brain/mind.
Además de observar actividades del cerebro, los anestesiólogos deben monitorizar estrechamente otras funciones fisiológicas de sus pacientes durante e inmediatamente después de cirugía. Factores cardiovasculares, pulmonares, neuromusculares, renales, de coagulación sanguínea y otros se siguen cuidadosamente. Una variedad de avances tecnológicos en monitorización permite cuidado más seguro de pacientes más enfermos para procedimientos más complejos. La monitorización futura puede utilizar tecnologías aún más avanzadas. Un ejemplo posible son los transistores de efecto de campo “biosensor”, que son diminutos chips cubiertos de membrana capaces de detectar una variedad de iones, moléculas, fármacos u hormonas. Suficientemente pequeños para caber en la punta de un pequeño catéter insertado inocuamente en un vaso sanguíneo o tejido, estos biosensores conectados a un computador pueden producir monitorización “on-line” de química sanguínea y muchas otras funciones. Con el advenimiento de la nanotecnología, se materializarán biosensores aún más diminutos y profundamente sensibles. La capacidad de monitorizar dinámicas conformacionales de nanoescala de proteínas neurales (telemetricamente o vía implantes muy pequeños) conducirá, no sólo a observación más sensible de la función cerebral durante anestesia y cirugía, sino quizá finalmente a la manipulación de la conciencia.

Figure 59: Figura 7.2: EEG de paciente despierto antes de anestesia. Arriba: 4 segundos de EEG “convencional” que muestra ondas de bajo voltaje y alta frecuencia. Abajo: los mismos 4 segundos trazados como trayectoria phase space con digitalización de 300 Hz y phase lag de 5/300 sec. El phase portrait del estado despierto está densamente centrado. De Watt y Hameroff (1987).
Memoria
Ocasionalmente los pacientes han reportado awareness o recall durante anestesia, un evento aborrecible tanto para el paciente como para el anestesista. La investigación en esta área ha iluminado los mecanismos de consolidación de memoria y ha conducido a fármacos anestésicos específicos productores de amnesia. En consecuencia, awareness y recall durante anestesia son actualmente extremadamente raros. En una excelente revisión de anestesia y procesos de memoria, Cherkin y Harroun (1971) describieron una teoría de memoria en dos etapas que postulaba que la información primero se percibe y almacena en una forma dinámica inestable (short-term memory), que luego puede consolidarse en una huella física estable de memoria (long-term memory).

Figure 60: Figura 7.3: EEG de paciente después de inducción de anestesia general con thiopental e isoflurane. Arriba: 4 segundos de EEG convencional muestran ondas de mayor voltaje y menor frecuencia. Abajo: los mismos 4 segundos trazados como trayectoria de fase como en la Figura 7.2. El phase portrait del paciente anestesiado está deshilado, con contorno geométrico “más suelto” semejante a un “attractor”. El análisis dimensional revela un phase portrait menos “caótico”, más “ordenado”, en el estado anestesiado comparado con el estado despierto. De Watt y Hameroff (1987).
La percepción y el almacenamiento de short-term memory pueden constituir awareness, pero no necesariamente causan una respuesta fisiológica ni se vuelven long-term memory para producir recall postoperatorio.

Figure 61: Figura 7.4: La información sensorial puede percibirse y registrar short term memory y awareness. Un segundo paso que toma un período finito de tiempo resulta en almacenamiento de long term memory y recall. Modificado de Cherkin y Harroun (1971).
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica la secuencia desde input sensorial hacia percepción/awareness de corto plazo, consolidación finita, almacenamiento de largo plazo y recall, incluyendo puntos de interrupción anestésica.
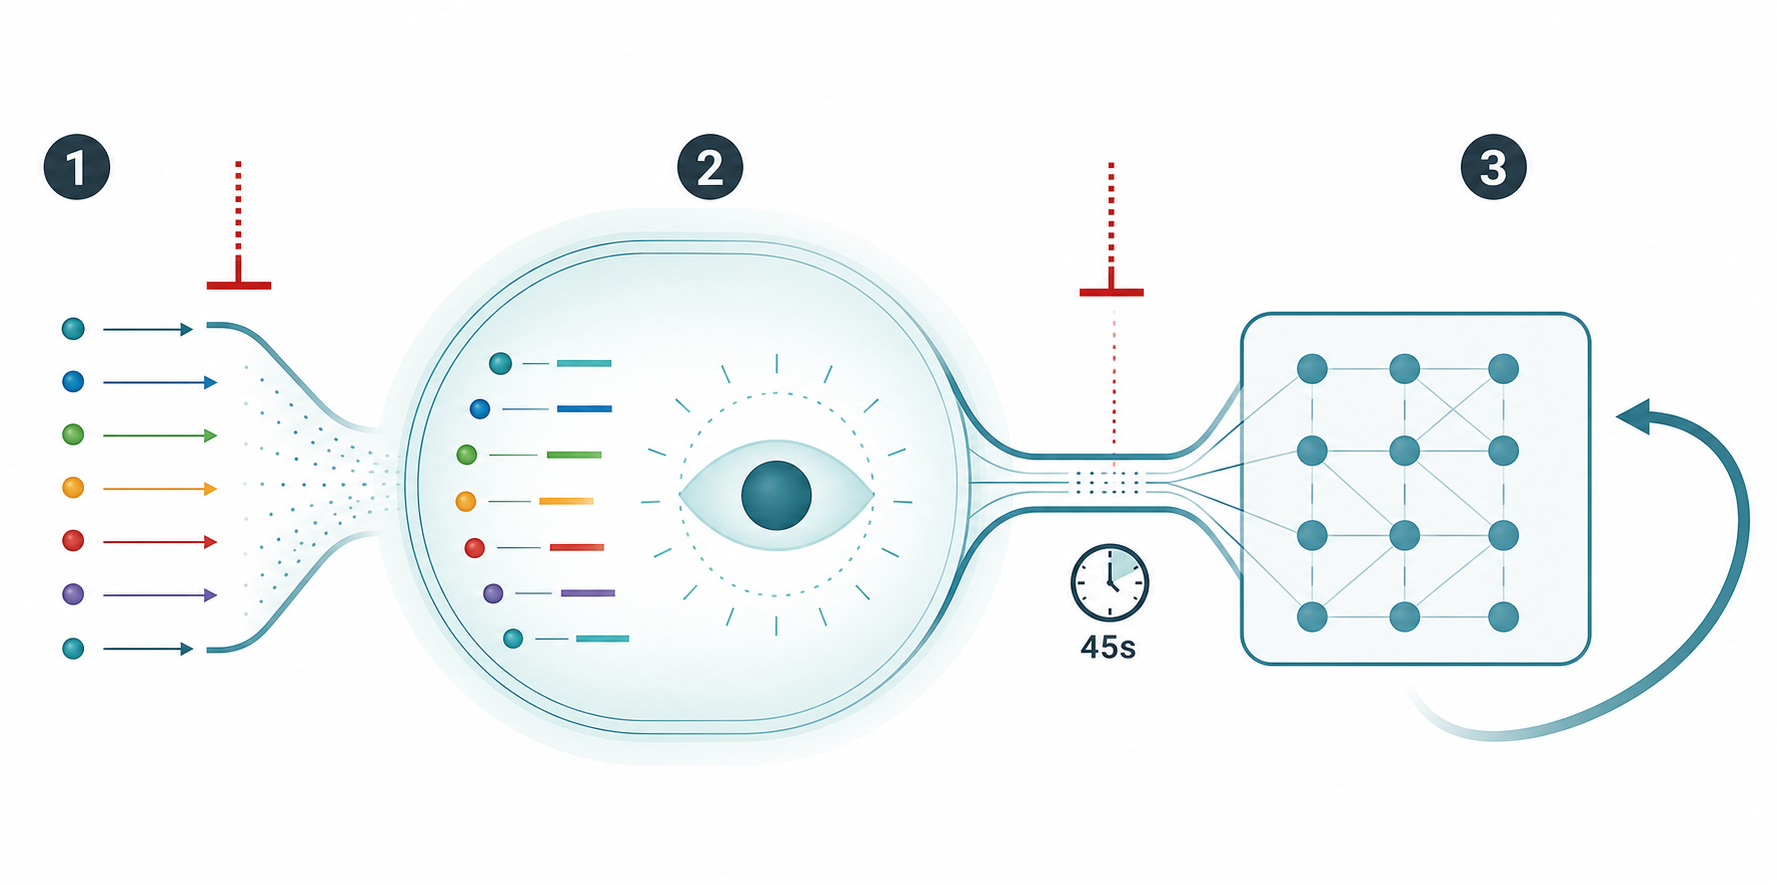
La consolidación de short term memory en almacenamiento de largo plazo parece tomar un período finito de tiempo, del orden de 45 segundos (Figura 7.4). El establecimiento de huellas de long-term memory depende en gran medida del impacto inicial del input de información. Muchos de nosotros que somos lo bastante mayores podemos recordar exactamente dónde estábamos cuando el presidente Kennedy fue disparado. De modo similar, observaciones amenazantes o despectivas tienen más probabilidad de ser oídas y consolidadas en long-term memory y recall en pacientes parcialmente anestesiados (Bitnar, 1983). La amnesia (falta de recall) resulta de la prevención de consolidación de memoria en cualquier punto desde el input hasta el almacenamiento de long-term memory. Los fármacos anestésicos pueden actuar en varias etapas de este proceso: los tranquilizantes bloquean la consolidación hacia long term memory, los analgésicos narcóticos previenen inputs nocivos, los anestésicos generales inhiben estas y todas las demás funciones cognitivas. El proceso de consolidación parece ocurrir en la región hipocampal del cerebro, pero el almacenamiento de memoria y awareness están distribuidos de modo más difuso.
Mecanismos de Anestesia
Una variedad de estructuras moleculares bastante diferentes tienen actividad anestésica. Otras moléculas, muy similares en estructura a los anestésicos, pueden tener efectos opuestos y causar convulsiones. A pesar de estas paradojas, se han presentado intentos imaginativos para unificar un único mecanismo de anestesia y representar claves para el mecanismo de la conciencia.

Figure 62: Figura 7.5: La anestesia resulta de la prevención de conmutación proteica entre dos o más estados conformacionales diferentes inducidos por unión de ligand, ion calcio o cambio de voltaje. Moléculas de gas anestésico se unen por fuerzas Van der Waals dentro de bolsillos hidrofóbicos en los cuales oscilaciones dipolares electrónicas pueden ser un disparador, o mecanismo de conmutación, para la conformación proteica.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica el mecanismo propuesto en el que ligand, calcio o voltaje pueden conmutar la conformación proteica mientras la ocupación anestésica de un bolsillo hidrofóbico puede inhibir esa conmutación.
Varias funciones y estructuras neurales son inhibidas por anestésicos, aunque algunas son inhibidas a concentraciones más altas que las requeridas para anestesia. La propagación de potenciales de acción que resulta en conducción nerviosa, así como el transporte axoplásmico dependiente de microtúbulos, son bloqueados por anestésicos como halothane, que también causa despolimerización de MT. Sin embargo, la función neural medible que es sensible a anestésicos a concentraciones apenas suficientes para borrar la conciencia es la transmisión sináptica. La liberación de neurotransmisor y/o la activación de receptor de neurotransmisor parecen así ser las acciones específicas cuya inhibición resulta en anestesia. La inhibición de actividades comunicativas colectivas dentro del citoesqueleto y proteínas de membrana adheridas relacionadas con transmisión sináptica son actualmente indetectables con las tecnologías actuales, y su inhibición todavía puede dar cuenta de la anestesia. La localización anatómica de sitios de acción anestésica se ha centrado en regiones con muchas sinapsis. En consecuencia, el sistema activador reticular, que está implicado en regulación de vigilia y atención y es “polysynaptic”, fue visto originalmente como un sitio mayor de efecto anestésico. Sin embargo, muchas otras regiones cerebrales son inhibidas por anestésicos a concentraciones relevantes para anestesia. Además, diferentes anestésicos que tienen el mismo resultado final tienen acciones dominantes en distintas áreas del cerebro, y tienen características y efectos secundarios diferentes.
El mecanismo de anestesia, el “otro lado” de la conciencia, es un enigma cautivador. Los esfuerzos por comprender las acciones de anestésicos empezaron a mediados del siglo XIX; Claude Bernard observó que el anestésico chloroform inhibía “protoplasmic streaming” en moho mucilaginoso. Alrededor del cambio al siglo XX, Meyer (1899) y Overton (1901) descubrieron que la potencia anestésica de un grupo de compuestos se correlacionaba directamente con su solubilidad en un ambiente lipídico, específicamente aceite de oliva. Debido a que las membranas son en gran medida lipídicas, la conclusión natural fue que los anestésicos ejercían sus efectos mediante acciones sobre lípidos en membranas. Mucho más tarde se determinó que los efectos críticos, dinámicos, en membranas ocurrían vía proteínas, y que regiones hidrofóbicas dentro de proteínas eran “lipid-like” y por tanto capaces de unir moléculas de gas anestésico mediante fuerzas Van der Waals débiles. La mayoría de teorías contemporáneas concuerda en que la anestesia resulta de alteración de funciones dinámicas, conformacionales, de proteínas neurales cerebrales importantes: proteínas de membrana, citoesqueleto, mecanismos liberadores de neurotransmisor, y/o enzimas (Koplin y Eger 1979; Kaufman, 1977; Eyring, Woodbury y D'Arrigo, 1973). Las opiniones y teorías discrepan sobre si los anestésicos alteran estas funciones proteicas dinámicas directamente vía bolsillos hidrofóbicos intraproteicos, o indirectamente vía lípidos de membrana que rodean proteínas, o en interfaces lipid protein (Franks y Lieb, 1982). Hay más desacuerdo sobre si un único mecanismo unitario puede explicar acciones de un amplio rango de compuestos anestésicos que actúan sobre un rango presumiblemente amplio de proteínas neurales, así como explicar la reversión de anestesia por aumento de presión, y la relación paradójica entre anestésicos y convulsivantes (Halsey, 1976).
Las correlaciones de potencia anestésica con solubilidad en solventes “lipid-like” (aceite de oliva, octanol, lecithin) son consistentes con efectos anestésicos que ocurren ya sea en lípidos o en bolsillos hidrofóbicos “lipid-like” dentro de proteínas (Eger, Lundgren, Miller y Stevens, 1969). Wulf y Featherstone (1957) estuvieron entre los primeros en demostrar unión de anestésicos dentro de regiones hidrofóbicas de whale myoglobin y otras proteínas. Sugirieron que la unión anestésica causaba un cambio conformacional proteico con un aumento resultante de exposición de grupos cargados en superficies proteicas, que alteraba suficientemente la función proteica para causar anestesia. Grupos cargados alterados pueden cambiar la unión proteica de agua superficial y pueden explicar los hallazgos que llevaron a Pauling (1965) y Miller (1969) a proponer que complejos agua-proteína inducidos por anestésicos (“clathrates”) eran la causa de anestesia. Otras investigaciones, incluidas Brammall, Beard y Hulands (1974), demostraron que los anestésicos pueden causar cambios conformacionales en proteínas funcionales, pero a concentraciones significativamente más altas que las requeridas para causar anestesia clínica reversible.
Una inferencia lógica es que los anestésicos, más que causar cambios conformacionales proteicos, prevenían aquellos que eran necesarios para la función normal. Buscando sistemas modelo de actividad dinámica funcional en proteínas, una cantidad de investigadores se ha centrado en un grupo aparentemente oscuro de sistemas que, en superficie, están muy alejados de cualquier semejanza con función cognitiva: inhibición anestésica de luminiscencia de fotoproteínas en luciérnaga y una variedad de bacterias (Harvey, 1915; Halsey y Smith, 1970; White y Dundas, 1970). Firefly luciferase es un dímero proteico de alrededor de 100 kilodaltons (no muy distinto de tubulina). Cuando se combina con una molécula hidrofóbica de 280 dalton llamada luciferin, y en presencia de ATP y oxígeno, se induce un estado electrónico excitado que resulta en emisión de fotones. La emisión de luz del complejo luciferase/luciferin es exquisitamente sensible a gases anestésicos en proporción a su potencia anestésica. Estudiando la emisión de luz de firefly luciferase, Ueda (Ueda, 1965; Ueda y Karmaya, 1973) propuso que la unión anestésica en un sitio hidrofóbico en la proteína luciferase inducía un estado conformacional inactivo que prevenía el estado excitado activado por ATP que normalmente resultaría en luminiscencia. En estudios anestésicos más recientes sobre luminiscencia de luciérnaga, Franks y Lieb (1984) corroboraron trabajo anterior según el cual la potencia anestésica se correlacionaba con potencia de inhibición de luciferase, de modo muy similar a las correlaciones anteriores con solubilidad en ambientes hidrofóbicos “lipid-like”. También reportaron que la unión anestésica no causaba un cambio conformacional de luciferase, y que los efectos anestésicos ocurrían por unión competitiva con luciferin por un sitio hidrofóbico en luciferase. Franks y Lieb sugirieron que la anestesia ocurre debido a desplazamiento de ligands endógenos desde bolsillos hidrofóbicos de proteínas neurales cerebrales que guardan cierta semejanza con el sitio de luciferin dentro de firefly luciferase. El desplazamiento de ligands endógenos no explicaría, sin embargo, la inhibición anestésica de cambios conformacionales proteicos funcionales que ocurren en respuesta a estímulos distintos de ligands hidrofóbicos (es decir, cambio de voltaje, calcio, otros iones).
En última instancia, la anestesia resulta de deterioro de la dinámica conformacional proteica. Como se describió en el Capítulo 6, los mecanismos que regulan estados proteicos no se comprenden totalmente, pero mecanismos colectivos, cooperativos, parecen importantes. La regulación conformacional de proteínas neurales sensibles a anestésicos se resume esquemáticamente en la Figura 7.5. Bajo condiciones normales, no anestésicas, hay una clase de proteínas neurales que sufre cambio conformacional funcional en respuesta a estímulos apropiados. Estas proteínas pueden ser canales iónicos unidos a membrana que se vuelven permeables a iones sodio, potasio, cloruro o calcio; receptores unidos a membrana para acetylcholine, gamma-amino butyric acid (GABA), glycine, aspartate, glutamate u otros neurotransmisores que están acoplados a canales iónicos; proteínas citoesqueléticas que realizan un amplio rango de funciones intracelulares dinámicas; o varias enzimas. Se piensa que los estímulos que inducen cambio conformacional funcional en estas proteínas incluyen unión de ligands (es decir, neurotransmisores), cambios en voltaje, o flujo iónico (es decir, iones calcio). Estos cambios conformacionales funcionales pueden facilitar actividad excitatoria neuronal o tener efectos inhibitorios. El vínculo común sensible a anestésicos tanto para efectos excitatorios como inhibitorios parece ser un cambio conformacional proteico.
El acoplamiento de estados conformacionales a estímulos apropiados no se comprende claramente; explicaciones posibles fueron discutidas en el Capítulo 6 y parecen implicar acoplamiento colectivo, no lineal, de movilidad electrónica a movimientos mecánicos. La movilidad electrónica acoplada conformacionalmente dentro de bolsillos hidrofóbicos de proteínas neurales puede ser por tanto esencial para la función cognitiva más alta y sensible a los efectos de moléculas anestésicas. Evidencia de cromatografía de gases (McNair y Bonelli, 1969) y experimentos de descarga corona (Hameroff y Watt, 1983) sugiere que los gases anestésicos pueden alterar directamente la energía electrónica, capturando, retardando o potenciando su movilidad por fuerzas Van der Waals-London (acoplamiento dipolar instantáneo). Así, la regulación del estado conformacional proteico, tal como proponen la teoría de coherencia de Fröhlich, el comportamiento electret o el modelo de soliton de Davydov, sería inhibida directamente por ocupación anestésica de bolsillos hidrofóbicos proteicos porque el medio ambiental para movilidad electrónica quedaría significativamente alterado. Los bolsillos hidrofóbicos varían en tamaño y forma entre diferentes proteínas, lo que daría cuenta de la variabilidad entre diferentes moléculas de gas anestésico. Las interacciones Van der Waals débiles, reversibles, mediante las cuales los anestésicos se unen dentro de regiones hidrofóbicas explican la reversibilidad de la anestesia. La otra cara de la anestesia, la conciencia, puede inferirse que ocurre debido a efectos conformacionales proteicos dinámicos entre una clase distribuida de proteínas neurales cerebrales. Debido a que la conciencia es la función cerebral más susceptible a anestésicos (que pueden preservar control respiratorio y muchos reflejos a concentraciones apropiadas), parece relacionada con efectos colectivos de dinámica conformacional proteica. La inhibición de un subconjunto de las dinámicas colectivas inhibiría por tanto la conciencia.
Inversamente, la excitación de un subconjunto específico implicado en dinámica proteica colectiva podría conducir a alteración o potenciación de la conciencia. Fármacos psicoactivos como amphetamines y LSD pueden ejercer efectos profundos sobre el brain/mind a concentraciones extremadamente bajas. Se piensa que se unen y ejercen sus efectos en receptores proteicos de membrana, como el receptor de serotonin en el caso de LSD. Kang y Green (1970) correlacionaron la potencia de compuestos psicoactivos con su estructura de enlaces electrónicos y orbitales moleculares. Encontraron que la energía orbital electrónica de las moléculas de fármaco disponible para los receptores (y membrana y citoesqueleto conectados) era un índice de potencia del fármaco. Así, efectos colectivos relacionados con movilidad electrónica dentro de proteínas clave en un ensamblaje cooperativo pueden ser importantes para la conciencia.
Modelos de Computación Citoesquelética
Efectos cooperativos, colectivos, de estados conformacionales proteicos dinámicos son un sustrato probable para la inteligencia biológica, desde cytoplasmic probing hasta conciencia humana. Las actividades, funciones y estructuras de microtúbulos y otros componentes citoesqueléticos parecen adecuadas para procesamiento de información y han llevado al menos a una docena de grupos de autores a publicar modelos teóricos de cognición rudimentaria dentro de MT y el citoesqueleto. Los conceptos van desde transducción pasiva de señales MT, a patrones descriptivos entre estados de subunidades MT, a efectos cooperativos dinámicos de “automaton” entre oscilaciones coherentes de centriolos y el citoesqueleto, hasta efectos citoplasmáticos/citoesqueléticos de “sol-gel field” que utilizan imaginería holográfica. Si son correctas, estas propuestas podrían explicar muchos aspectos de la representación de información y la organización dinámica en sistemas biológicos. Metáforas esperanzadoras, estos modelos no son excluyentes y pueden ser solapados y complementarios.
El procesamiento de información citoesquelético requeriría algún mecanismo de cooperativity, orden de largo alcance, coherence, y/o transferencia de energía entre componentes citoesqueléticos y sus subunidades. Tales posibles mecanismos fueron discutidos en el capítulo anterior. Evidencia específica que apoya transferencia de energía e información dentro de microtúbulos será discutida aquí, seguida por trece modelos de procesamiento de información citoesquelético.
Energía e Información en Microtúbulos
Apoyo directo para la propagación de señales en MT ha sido generado por Vassilev, Kanazirska y Tien (1985), quienes reconstituyeron membranas bicapa a partir de lípidos cerebrales y estudiaron su excitabilidad eléctrica. Suspendieron membranas como superficies planas paralelas no conectadas, separadas por varios milímetros, en una solución buffer que contenía tubulina despolimerizada, GTP y otros componentes fisiológicos. Cada membrana fue monitorizada eléctricamente y el registro basal de las dos membranas no mostró acoplamiento eléctrico; cuando una membrana era estimulada eléctricamente se despolarizaba, pero la otra membrana permanecía silenciosa. Cuando se hizo que la tubulina polimerizara en MT (disminuyendo la concentración de ion calcio), se formaron puentes MT entre las dos membranas y se observó acoplamiento eléctrico entre las dos membranas. La estimulación eléctrica de una membrana resultó entonces en despolarización en ambas membranas. La adición del fármaco desestabilizador de MT colchicine previno el acoplamiento, demostrando que eran necesarios microtúbulos intactos. Los autores concluyeron que la señalización intermembrana ocurría por polarización eléctricamente inducida y cambios conformacionales de componentes MT que vinculaban las dos membranas. Sugirieron que funciones comunicativas similares ocurrían rutinariamente dentro del citoesqueleto.
Otra serie de experimentos que apoya la noción de señalización mediada por MT es la transferencia de resonancia de fluorescencia entre MT y componentes de membrana. Becker, Oliver y Berlin (1975) desarrollaron una técnica para estudiar transferencia de energía entre grupos fluorescentes unidos separadamente a diferentes subunidades MT o a membranas. La transferencia de energía por resonancia ocurre cuando una porción fluorescente de una molécula (“chromophore”) que es excitada electrónicamente por la absorción de energía luminosa transmite esa energía a otro “acceptor” chromophore a cierta distancia. Esta transmisión requiere la superposición del espectro de emisión del chromophore “donor” con el espectro de absorción del acceptor, sin implicar la reabsorción real de luz por el acceptor. El proceso se denomina por tanto transferencia de energía por resonancia “nonradiative” y ocurre si la distancia entre los chromophores es relativamente cercana, sin exceder alrededor de 10 nanómetros. En el estudio de Becker, Oliver y Berlin, fluorescein isothiocyanate (FITC) se usó para marcar fluorescentemente una población de subunidades MT no polimerizadas o membranas, y otro marcador fluorescente, rhodamine isothiocyanate (RITC), se usó para marcar una segunda población de tubulina. Eligieron estos chromophores porque se unen covalentemente a tubulina o membranas, y porque el espectro de emisión de “donors” FITC se superpone extensamente con el espectro de absorción de acceptors RITC. Los registros de espectros de fluorescencia revelan la “resonance transfer” cuando ocurre. Cuando los MT estaban despolimerizados, una mezcla de tubulina marcada como donor y marcada como acceptor no mostró resonance transfer. Con polimerización o agregación de subunidades MT, la excitación fluorescente de tubulina marcada con fluorescein resultó en emisión fluorescente por tubulina marcada con rhodamine, ya que los chromophores fueron llevados suficientemente cerca entre sí en una retícula común para permitir transferencia de energía por resonancia. La transferencia de energía ocurrió no sólo entre subunidades de tubulina en MT, sino entre subunidades MT y componentes de membrana.
Evidencia de otro modo con implicaciones comunicativas en microtúbulos es sugerida por el alineamiento paralelo de MT en campos eléctricos y magnéticos aplicados (Vassilev, Dronzine, Vassileva y Georgiev, 1982). Citan la existencia postulada de campos eléctricos de baja intensidad (Jaffe y Nuccitelli, 1977; Adey, 1975) en el rango de 20 a 500 millivolts por centímetro dentro de células (una millonésima de la fuerza de campo a través de membranas polarizadas). Vassilev y colegas aislaron tubulina de cerebro de rata y crearon condiciones polimerizantes en presencia de campos eléctricos pulsados de alrededor de 25 millivolts por centímetro. Micrografías electrónicas mostraron que los MT polimerizaban en alineamiento paralelo perfecto con el campo aplicado. Se obtuvieron resultados similares cuando se aplicaron campos magnéticos de baja intensidad (0,02 Tesla). Si ensamblajes de MT también pueden generar campos eléctricos y/o magnéticos de intensidad similar vía un efecto electret, entonces una comunicación cooperativa comparable al “Indian rope trick” puede utilizarse en crecimiento celular, diferenciación y plasticidad sináptica. Los MT podrían entonces generar sus propias vías para movimiento citoplasmático.
Otros datos (Matsumoto y Sakai, 1979; Alvarez y Ramirez, 1979) sugieren que el citoesqueleto intraneuronal es necesario para la excitabilidad de membrana nerviosa y la transmisión sináptica. Proteínas de membrana nerviosa, incluidos canales iónicos y receptores que están anclados al citoesqueleto, pueden ser las “puntas de un iceberg” de un medio comunicativo citoesquelético que podría utilizar una cantidad de modos posibles para lograr cooperativity colectiva y comportamiento celular inteligente. Los modelos siguientes sugieren algunas estrategias posibles.
Procesamiento de Información Citoesquelético
Los modelos siguientes han sido agrupados aproximadamente por autores y conceptos significativos.
MT Sensory Transduction/Atema
Varios autores han discutido la transducción de información sensorial por la distorsión mecánica de cilios: estructuras semejantes a centriolos cubiertas de membrana que protruyen desde células. Lowenstein, Osborne y Warshall (1964) sugirieron que el “kinocilium” de las células ciliadas en el oído interno servía como cilios móviles en reversa. Razonaron que los cilios móviles producían movimiento usando energía química proporcionada por hidrólisis de ATP, de modo que los cilios mecanorreceptores deberían transducir deformación mecánica causada por estímulos ambientales para proporcionar a la célula “patterns of chemical energy representing information”. Lettvin y Gestalind (1965) también propusieron que los cilios receptores operaban “en virtud de transmitir señales mecánicas a la base del cilium”.
El biólogo Jelle Atema (1973), del Wood’s Hole Oceanographic Institute, cuyo trabajo se había centrado en percepción acústica a nivel celular, también vinculó microtúbulos y transducción sensorial. Observando una estructura común semejante a cilios en orgánulos receptores sensoriales entre una amplia variedad de organismos, Atema propuso que los cilios sensoriales transmitían información ambiental al resto de la célula. Sugirió que la transducción ocurría por cambios conformacionales propagados en las subunidades de microtúbulos que constituían estos cilios. Argumentó que los microtúbulos eran unidades funcionales activas en recepción y transducción de información sensorial. Atema revisó cambios conformacionales en dímeros de subunidades de tubulina MT observados por una variedad de autores y sugirió que estos ocurrían bajo condiciones fisiológicas. Por ejemplo, las oscilaciones de flagella espermáticos aparentemente no están controladas por su membrana celular sino que son propiedades directas de sus microtúbulos en presencia de ATP (Lindemann y Rikmensboel, 1972). Atema concluyó que es probable que ocurra una secuencia de cambios conformacionales de subunidades en microtúbulos. En cilios motores y flagella, la distorsión se originaría en la base de la estructura y se propagaría distalmente, resultando en movimientos ondulatorios o de latigazo que propulsan el organismo. En cilios sensoriales, la distorsión aparentemente se origina cerca del extremo distal de los MT ciliares y se propaga en cualquier dirección o al menos proximalmente hacia el cuerpo celular. Allí la señal puede propagarse ya sea vía una membrana excitable o a través del cuerpo basal de anclaje y el citoesqueleto. Debido a que deformación mecánica y/o distorsión química local son estímulos suficientes para iniciar una señal propagante en cilios sensoriales, la teoría microtubular de Atema asumía que la distorsión de conformación de tubulina por cualquier cantidad de fuentes era suficiente para propagar una onda conformacional. Así, energía lumínica, energía de enlace químico y fuerzas mecánicas podrían ser transducidas por cilios sensoriales.
La visión de Atema del procesamiento de información en MT era una propagación “all or none” por cambios conformacionales alostéricos a lo largo de protofilamentos de tubulina. La suya fue la primera teoría en mirar más allá del comportamiento global de los cilios para considerar efectos conformacionales en componentes de tubulina. Teorías posteriores se volvieron más elaboradas al considerar funciones analógicas localizadas, switching e interacciones colectivas de vecindad entre subunidades MT.
MT Mechano-lonic Transducers/Moran and Varela
Sistemas sensoriales biológicos que van desde oídos internos humanos hasta receptores hairplate de abejas melíferas usan cilios sensoriales para transducir deformación mecánica en información cognitiva como posición en el espacio (“proprioception”). Los biólogos de Harvard Moran y Varela (1971) estudiaron la transducción propioceptiva de deformación mecánica en las patas de cucarachas. Allí, espinas táctiles contienen estructuras mecanorreceptoras llamadas “campaniform sensilla”, que consisten en una única neurona bipolar desde cuya punta dendrítica se extiende un cilium modificado que contiene 350 a 1000 microtúbulos. Moran y Varela determinaron que este haz paralelo de MT estaba directamente implicado en la transducción de deformación mecánica hacia la neurona.
Todas las neuronas son receptores mecánicos, siendo sensibles al estiramiento para causar corrientes iónicas. En la campaniform sensilla de cucaracha, el cilium es el único puente y la transducción no ocurre cuando los MT son incapacitados con fármacos de unión a tubulina como colchicine y vinblastine (Moran y Varela, 1971). Los MT están así directamente implicados en la determinación propioceptiva de la relación espacial del sistema con su ambiente. Moran y Varela vieron dos posibles papeles para los MT en su función mecanorreceptora: como varillas pasivas de traducción, o como generadores de corrientes iónicas/eléctricas. Sugirieron que los MT se comportaban como “mechanochemical engines driven backward”. La compresión o flexión de MT causaría liberación de iones unidos desde subunidades MT, resultando en un flujo iónico. Moran y Varela veían estas corrientes iónicas capaces de generar despolarización de membrana, siendo quizá los primeros en sugerir que los MT pueden regular membranas. Cada dímero de tubulina une reversiblemente 16 iones calcio, de modo que flujos iónicos de corriente significativa podrían resultar de un ensamblaje activo de MT paralelos. Este proceso puede ser análogo a la liberación coordinada de ondas de ion calcio por el retículo sarcoplásmico en células musculares, que dispara interacciones contráctiles actina-miosina. También se piensa que ondas de calcio regulan la flexión y ondulación de cilios y flagella, y pueden regular la “ground substance” citoesquelética por acoplamiento a estados sol-gel. La contribución de Moran y Varela fue observar que los MT podían liberar iones como calcio de una manera controlada y modificable útil para comunicación intracelular.
Cytomolecular Computing/Conrad and Liberman
El científico computacional Michael Conrad, de Wayne State University, y el científico soviético de la información E. A. Liberman han colaborado para considerar aspectos de computación biomolecular incluido el citoesqueleto. Consideran que el “computing power of the brain is primarily based on intracellular processes”. Proponen que el sistema de nucleótidos cíclicos (moléculas ricas en energía como cyclic AMP) esculpe patrones dinámicos tridimensionales en el citoplasma de neuronas y otras células que son la textura analógica del procesamiento de información en real time. Conrad y Liberman ven patrones de reaction diffusion de cyclic AMP, regulados y percibidos tanto por membranas celulares como por el citoesqueleto, como un vínculo entre actividades neurales macroscópicas y computación de escala molecular. Conrad, conocido por su conceptualización de enzimas proteicas como posibles componentes computacionales (Capítulo 1), también ha avanzado la noción de molecular automata dentro de células (Conrad, 1973). Él y Liberman sugieren que el citoesqueleto intracelular percibe estiramiento o distorsión mecánica subsiguiente a eventos de membrana y regula en consecuencia cyclic AMP y otros biomessengers.
Conrad y Liberman (1982) sugieren:
en neuronas, la estimulación mecánica aparece en movimiento del esqueleto tubular intraneuronal y micromúsculo … detalles del esqueleto y micromúsculos (son) adecuados para construir el analog molecular … del campo físico real en el cual este sistema se mueve.
Conrad y Liberman ven un analog molecular dentro del citoesqueleto como una representación del mundo externo. Extrapolado a sistemas complejos como el cerebro, tal analog citoesquelético podría bastar como medio de cognición.
Conrad (1985) señala que
procesamiento de señal altamente paralelo y comportamiento vibratorio por parte de microtúbulos y otros elementos citoesqueléticos podrían desempeñar un papel significativo.
MT Signal Processing/DeBrabander
El biólogo celular Marc DeBrabander ha estudiado extensamente actividades del citoesqueleto en mitosis y organización celular en general. Él y sus colegas en los Janssen Pharmaceutica Research Laboratories de Bélgica (DeBrabander, DeMey, VandeVeire, Aerts y Geuens, 1975, 1986) han examinado la distribución y movimiento de proteínas de membrana celular y reunido evidencia de que están vinculadas al sistema cortical de filamentos de actina. A su vez, la actividad ordenada de los filamentos parece estar controlada por el sistema de microtúbulos, análogo a su función en movimiento celular y forma celular. DeBrabander (1977) observa que en estos fenómenos los MT actúan más allá de su capacidad como elementos de soporte esquelético y funcionan como transductores de señal desde el centro celular hacia la periferia, y viceversa. La señalización interactiva en el citoesqueleto encaja con observaciones de que eventos locales en un sitio de la célula a menudo conducen a un reordenamiento celular global. DeBrabander plantea varios rasgos MT que podrían favorecer la señalización: polaridad intrínseca de MT, la existencia de “centrifugal and centripetal microtubules”, el mecanismo de propagación conformacional propuesto por Atema (1973), movimiento y topografía direccionales de orgánulos, y transporte de iones como calcio a lo largo de microtúbulos.
DeBrabander y sus asociados (1986) también han innovado nuevas técnicas en el examen de estructura y dinámica citoesqueléticas. Estas incluyen “Nanovid Microscopy”, una microscopía de video a escala nanométrica en la cual puede visualizarse el transporte de partículas marcadas a lo largo de MT individuales, y un método de marcado de subunidades individuales de tubulina dentro de MT que están ya sea tyrosinated o glutamated (Geuens, Gundersen, Nuydens, Cornelissen, Bulinski, DeBrabander, 1987). Como se describió en el Capítulo 5, los MT polimerizados pueden ser detyrosinated en el citoplasma con posterioridad a input genético dirigido por DNA. Tyrosine, el aminoácido terminal en tubulina, puede ser removido para exponer glutamate como el nuevo aminoácido terminal. Así todas las tubulinas dentro de MT polimerizados están ya sea tyrosinated, o glutamated. Una variedad de factores citoplasmáticos determina si una tubulina particular está tyrosinated o no. La significación o función precisa de tyrosination/glutamation es desconocida, pero podría servir como una conveniente función de programación o memoria. DeBrabander y colegas desarrollaron una técnica de doble marcado en la cual partículas immunogold se unen a subunidades de tubulina. Partículas immunogold grandes (10 nanómetros) identifican tubulina glutamated y partículas más pequeñas (5 nanómetros) se unen a tubulina tyrosinated. Patrones de tubulina tyrosinated/glutamated dentro de MT muestran distribución heterogénea, y sugieren el potencial para un mecanismo de codificación. Unión de MAP, conformación de tubulina, unión de calcio y otros factores podrían acoplarse a función MT vía tales patrones. Aunque la predisposición a detyrosination puede estar genéticamente vinculada a isozymes de tubulina, los patrones reales de detyrosination de tubulina están determinados por factores citoplasmáticos “real time”. DeBrabander y colegas han proporcionado la primera evidencia directa de patrones modificables de variabilidad de tubulina en microtúbulos intactos. En consecuencia, los MT parecen capaces de procesamiento de señal además de transducción de señal.

Figure 63: Figura 8.1: Microtúbulos de células PtK2 doblemente marcados con antibody e immunogold bajo alta magnificación. Círculos grandes (partículas de oro de 10 nanómetros, flechas) marcan subunidades de tubulina glutamated; círculos pequeños (partículas de oro de 5 nanómetros) marcan subunidades de tubulina tyrosinated. Izquierda: microtúbulo de interfase, derecha: microtúbulo de huso. Con permiso de Geuens, Gundersen, Nuydens, Cornellisen, Bulinski y DeBrabander (1986), cortesía de Marc DeBrabander y Janssen Pharmaceutica Research Laboratories.
Cytoskeletal String Processors/Barnett

Figure 64: Figura 8.2: Modelo de string processor de Barnett para almacenamiento de memoria microtubule-neurofilament. 1) un processing channel (microtubule-MT) está conectado lateralmente a una unidad paralela de almacenamiento (neurofilament-NF), 2) la información atraviesa el processing channel de derecha a izquierda; en el storage channel, pares sinónimos se mueven de izquierda a derecha, 3) cuando la palabra “chips” se mueve por sí sola en storage, es eliminada, 4) “chips” es reemplazada por su sinónimo “french fries” y 5) el reemplazo queda completo. Por Paul Jablonka.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; redibuja la secuencia de cinco pasos del string processor de Barnett con canales MT/NF más claros, direcciones opuestas de strings y el reemplazo de CHIPS por FRENCH FRIES.
El científico de la computación y de la información Michael P. Barnett, de Brooklyn College, ha perseguido el diseño de componentes computacionales adecuados para molecular scale devices. Además del desarrollo de interruptores binarios diminutos para ensamblarse en circuitos sobre arquitectura digital, Barnett (1987) también ha buscado una associative memory que pueda analizar analog data imprecisos así como digital information convencional. Sistemas fabricados con estos rasgos podrían ser versátiles, poderosos y una bendición para los objetivos de la artificial intelligence. Como muchos investigadores orientados a AI, Barnett recurrió a la biología en busca de pistas. Sin embargo, a diferencia de la mayoría de investigadores de AI, Barnett rastreó el ámbito biológico subcelular en busca de conceptos de procesamiento de información a escala molecular. ¡Su imaginación fue capturada por cytoskeletal microtubules and neurofilaments! Ha propuesto la representación de información como patrones en las subunidades de polímeros citoesqueléticos. Propone que estados específicos de subunidad pueden caracterizarse por “electrons transferred from delocalizable molecular orbitals”, pero su premisa básica también sería apoyada por otras causas de variabilidad de estado conformacional entre subunidades poliméricas de MT y neurofilamentos. Barnett sugiere que estructuras citoesqueléticas filamentosas operan como information strings análogas a word processors.
En la conceptualización de Barnett (Figura 8.2), information strings se mueven de derecha a izquierda a lo largo de processing channels, que corren en paralelo a memory channels unidimensionales en los cuales pueden almacenarse character strings. Los string transformers de Barnett pueden realizar global replacements sobre secuencias de caracteres como word processors comunes. Su modelo asume la existencia de processing channels (MT) a lo largo de los cuales pueden moverse strings de información, y memory channels (neurofilamentos) que consisten en una sucesión de ubicaciones, cada una de las cuales puede contener un único carácter. La disposición en array paralelo y la interconexión lateral de MT y neurofilamentos podrían calificar estos elementos citoesqueléticos como string processors, suponiendo que la información pueda representarse en los polímeros. El modelo de Barnett es por tanto compatible y complementario con otros modelos de conformational patterns dentro de MT y el citoesqueleto.
Microtubule “Gradions”/Roth, Pihlaja, Shigenaka
Roth, Pihlaja y Shigenaka (1970), y Roth y Pihlaja (1977), han considerado procesamiento de información en dos tipos de ensamblajes biomoleculares: rosetas de membrana y microtúbulos. Citando efectos alostéricos cooperativos entre proteínas adyacentes o subunidades proteicas, proponen que gradientes conformacionales en arrays de proteínas representan información mediante patrones de estados conformacionales entre vecinos cercanos en retículas proteicas.
Las rosetas son anillos ordenados que consisten en entre siete y doce proteínas embebidas en membrana, importantes en fusión de membranas en organismos inferiores.
Un ejemplo de función de roseta ocurre en “suctorian feeding”, en el cual ciertos protozoos se fijan a una membrana de célula huésped y se alimentan de su citoplasma succionando sus contenidos a través de una roseta común a ambas membranas. Bardele (1976) sugirió que las rosetas utilizan conceptos de cooperativity y allosterism porque el disparo de dinámicas conformacionales dentro del complejo no requiere contacto con todas las partículas. Estímulos en sólo una o unas pocas subunidades, seguidos por cambios alostéricos en el resto, pueden causar activación del complejo total. Satir (1973) mostró que rosetas en membranas de tetrahymena tienen pares de rosetas en registro entre sí: anillos internos y externos de ocho proteínas cada uno. La inducción de un cambio conformacional por unión de una molécula efectora en la roseta externa causa cambios cooperativos alostéricos en la conformación y estados funcionales de las dieciséis subunidades. En mutantes con rosetas aberrantes, se requiere un mínimo de 5 subunidades antes de que las rosetas respondan funcionalmente.
Roth, Pihlaja y Shigenaka consideraron que el siguiente nivel de complejidad en ensamblajes proteicos estaba ejemplificado por los microtúbulos. Veían los MT como patrones altamente orientados de dímeros de tubulina y anticiparon al menos tres estados conformacionales diferentes de cada tubulin dimer, basándose en estudios de unión de tubulina a vinblastine y GTP (Luduena, Shooter y Wilson, 1976). Los biólogos Roth, Pihlaja y Shigenaka (1970) estudiaron los patrones de enlace entre MT dentro del axopod de un organismo simple llamado Echinosphaerium, un complejo ensamblaje espiral de cientos de MT. Los arrays espirales precisamente pautados y entretejidos de MT que componen el axopod se explican por puentes inter-MT de dos longitudes diferentes. Los autores consideraron que estos dos tipos de enlaces no sólo pueden dar cuenta de la compleja estructura del axopod, sino también indicar dos estados conformacionales diferentes de los tubulin dimers a los cuales se adhieren los puentes. A lo largo de las longitudes del axopod, los enlaces de microtúbulos se encuentran a intervalos que reflejan unión aproximadamente cada cuarto dímero. Estos sitios precisos de enlace representaban algún tipo de código para Roth, Pihlaja y Shigenaka, quienes propusieron en 1970 que patrones recurrentes, o “gradients”, existían en los microtúbulos para localizar estos patrones precisos de unión. Definieron estos patrones como “gradions”: secuencias o campos conformacionales repetitivos en los cuales múltiples patrones variables pueden existir simultáneamente en la misma arquitectura molecular.

Figure 65: Figura 8.3: “Gradions” dentro de la microtubule lattice. Los dímeros sombreados oscuros son patrones de adhesión MAP; los dímeros numerados están determinados por proximidad a sitios de adhesión MAP. Se piensa que la unión MAP y otros “gradionators” inducen patrones codificados que representan información. De Roth, Pihlaja y Shigenaka (1970) por Paul Jablonka.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica los gradions como vecindades de dímeros numeradas por proximidad alrededor de sitios oscuros de adhesión MAP dentro de la retícula microtubular.
Se pensaba que los estados conformacionales de subunidades individuales de tubulina estaban controlados por factores que Roth, Pihlaja y Shigenaka denominaron “gradionators”. Estos podrían incluir conformación inducida por ligand, tubulin isozyme, detyrosination, o unión de MAPs, incluidos puentes inter-microtúbulo. Definieron campos discretos de gradion dentro de superficies de microtúbulos como las áreas de vecindad alrededor de puentes MAP intermicrotubulares. Asumieron además cinco posibles estados conformacionales para cada dímero, determinados por sitios de enlace inter-MT y sus efectos alostéricos cooperativos, así como por unión del dímero a una cantidad de diferentes sustratos nativos o moléculas extrañas. El patrón de estados conformacionales de dímeros de tubulina en una región de MT lattice “gobernada” por adhesión de enlaces inter-MT (u otras MAPs) se define como un “gradion”, o campo conformacional que incluye alrededor de diecisiete dímeros. En consecuencia, podrían existir 517 patrones diferentes de gradion si la conformación de cada subunidad fuera independiente de todas las demás. Cooperativity y efectos alostéricos excluyen la independencia, de modo que el número de posibles “gradions” MT es algo menor, pero todavía sustancial. Roth y Pihlaja (1977) ven la formación de muchos “gradions” dentro de MT de axopod como un mecanismo para determinación de posición y codificación de conexiones. Aplicados al citoesqueleto neuronal, tales patrones deterministas serían generalmente útiles para procesos mentales en el cerebro y serían un candidato viable para “grain of the engram”.
La teoría del gradion puede aplicarse a cualquier campo grande de partículas alostéricas. Allosterism y cooperativity en membranas, uniones celulares y partículas proteicas en muchas células podrían explicar aspectos de comunicación cooperativa; sin embargo, los microtúbulos parecen especialmente adecuados para funciones de información. El modelo de gradion MT de Roth, Pihlaja y Shigenaka es una teoría específica temprana del procesamiento de información en ensamblajes proteicos en general, y en microtúbulos en particular.
Gyroscopic Centrioles/Bornens
El biólogo molecular francés Michel Bornens (1979) ha investigado mecanismos celulares de organización y argumenta a favor de una estabilidad dinámica basada en propiedades organizacionales de los centriolos y el citoesqueleto. Específicamente, Bornens propone que los centriolos están animados por una rápida rotación oscilatoria alrededor de su eje longitudinal, lo que resulta en una estabilidad dinámica e inercia análogas a una peonza o gyroscope. Los movimientos periféricos a través de toda la célula están interconectados por el citoesqueleto, con los centriolos giroscópicos como un punto inerte de referencia que proporciona gravedad celular. Los centriolos y microtubule organizing centers (MTOC) son el origen de las coordenadas espaciales de la célula, y el movimiento citoplasmático parece ocurrir con respecto al MTOC. Bornens compara el movimiento en cada cilindro con un motor eléctrico paso a paso en el cual el “cartwheel” central (o “pinwheel”) es equivalente a un “stator” ATP-dynein, y la pared centriolar al “rotor” móvil. La rotación continua por torque de los centriolos podría servir para propulsarlos a través del citoplasma, como un “Archimedes screw” (Record, 1986). Bornens también considera la posibilidad de oscilación “back and forth” con utilidad para escanear el ambiente celular.
Al revisar el modelo de centriole giroscópico de Bornens, Albrecht-Buehler (1981) cuestionó la alta tasa de rotación requerida para una inercia significativa. Albrecht-Buehler calculó que los centriolos tendrían que rotar a frecuencias de 2,3 millones de revoluciones por minuto antes de que su energía cinética iguale un kT (la energía térmica de un grado molecular de libertad). En consecuencia, “se requerirían frecuencias rotacionales mucho mayores antes de que el centriolo pudiera resistir el impacto de moléculas movidas térmicamente alrededor de ellos y mantener orientación axial estable” (Albrecht-Buehler, 1981). Bornens respondió sugiriendo un mecanismo submicroscópico “que permite más independencia del centriolo respecto al material circundante”. Factores que podrían apoyar su argumento incluyen agua ordenada acoplada a oscilación centriolar, alguna propiedad desconocida del “material pericentriolar”, capa de carga ionic, o incluso superconductividad como sugirieron Fröhlich y el grupo de Del Giudice (Capítulo 6).
Oscilaciones rotatorias en el rango de 107 por segundo serían consistentes con los hallazgos de varios investigadores (Capítulo 9), quienes encontraron absorción colectiva de energía en el rango de 107 por segundo por ensamblajes proteicos tales como cubiertas virales.
Bornens ve los centriolos como el centro de un dynamic cytoskeleton que comunica e integra información celular. En la visión de Bornens de la organización citoesquelética, los microtúbulos son conductores de información espacial centrífuga, organizadores rígidos del espacio celular en los cuales señales físicas o eléctricas se propagan como modificaciones conformacionales de subunidades MT. Intermediate filaments y la microtrabecular lattice también participan en la visión de Bornens de una red dinámica de polímeros pulsantes. También sugiere que la rotación centriolar generada por ATP dispara impulsos propagantes a lo largo de microtúbulos por contacto/estímulo transitorio de los nueve dobletes/tripletes MT rotatorios en la pared del centriolo con sus cuerpos satélite circundantes. Esto conduciría a señales rítmicas a través del citoesqueleto con una frecuencia nueve veces mayor que la rotación del centriolo. Señales rítmicas, propagantes, son compatibles con coherency, solitons y otros modelos. Su ocurrencia a través de todo el citoesqueleto sería un mecanismo cercano a la naturaleza de la vida misma.
Centriole-MT Signaling/Albrecht-Buehler
El biólogo de Northwestern University Guenter Albrecht-Buehler ha considerado la cuestión general de la inteligencia en el citoplasma (Capítulo 5), así como dos modelos específicos de procesamiento de información citoesquelético: detección de señal por centriolos y propagación de impulsos MT. Las paredes de los centriolos están compuestas de nueve dobletes o tripletes MT dispuestos en un cilindro. Cada triplete MT puede consistir en dos MT incompletos con forma de C y uno completo con forma de O fusionados longitudinalmente. Los tripletes están dispuestos en un ángulo de 30-45 grados respecto al cilindro principal, inclinados para formar una blade que avanza hasta un incremento final de un noveno del perímetro justo debajo de la posición de la siguiente blade. Una línea trazada a través de cualquier blade conecta con el borde interno de la blade precedente (Figura 8.4).
El comportamiento colectivo del citoplasma parecería requerir algún formato comunicativo, y Albrecht-Buehler sugiere que los centriolos están perfectamente diseñados para detectar tanto intensidad como dirección de señales lineales. Un ejemplo posible de una señal muy específica, pero ubicua, propagada en línea recta en el ambiente celular es la radiación infrarroja de las moléculas dentro y alrededor de las células (Albrecht-Buehler, 1981). Como se ha discutido, la transmisión de energía infrarroja biomolecular requeriría apantallamiento frente a bulk water, y quizá acoplamiento no lineal a estados conformacionales estructurales. Ambos requisitos pueden ser satisfechos por el agua ordenada y los iones que rodean el citoesqueleto y el material pericentriolar electron-dense.
Navegadores celulares, los centriolos están implicados en orientación direccional de células móviles, establecimiento de arquitectura celular en crecimiento y diferenciación celulares, y todos los reordenamientos dinámicos del citoplasma. En un intento por comprender cómo podrían navegar y orientarse los centriolos, Albrecht-Buehler pregunta cómo aparecería un detector tecnológico de señal espacial diseñado óptimamente. Instrumentos como los radar scanners pueden determinar la dirección de señales escaneando secuencialmente diferentes direcciones. Sin embargo, tales scanners pierden señales que llegan desde una dirección mientras otra está siendo escaneada. Un instrumento nonscanning diseñado adecuadamente puede escuchar simultáneamente todas las direcciones sin partes móviles. Albrecht-Buehler señala algunos rasgos geométricos de un detector “angular” nonscanning diseñado óptimamente. Con señales que llegan desde direcciones arbitrarias, un detector diseñado como un círculo con una cantidad de marcas espaciadas regularmente alrededor de su circunferencia sería accesible y capaz de identificar dirección. La simetría nine fold proporciona tamaño pequeño con suficiente resolución angular.
Para localizar una fuente de señal, un detector debe impedir que una señal emitida llegue a más de un receptor. Un arreglo circular simple no cumpliría este requisito porque alrededor de la mitad de los receptores son accesibles a una señal emitida desde cualquier fuente. Una forma simple de mejorar el diseño es fijar persianas o “blades” a un lado de cada receptor para absorber o desviar una señal dondequiera que interactúe con ellas. Un arreglo radial de persianas rectas sería inadecuado porque al menos dos receptores permanecerían accesibles a señales desde la misma fuente. Sin embargo, si las persianas se curvan circunferencialmente, se alcanza un ángulo óptimo cuando las persianas impiden el acceso a todos salvo un receptor sin producir “blank spots”, áreas desde las cuales las fuentes de señal no pueden alcanzar ninguno de los receptores. Las persianas que restringen el acceso a receptores individuales son aún mejores si su forma es cóncava. Usada por fabricantes de “Venetian blinds”, esta curvatura evita la posibilidad de que una señal ubicada directamente en línea con una persiana recta pudiera alcanzar dos receptores adyacentes. En consecuencia, una señal es recibida no por el receptor más cercano a la fuente de señal, sino por uno localizado a un ángulo fijo fuera de la dirección incidente. Las “blades” centriolares se extienden por encima y por debajo del cilindro centriolar y están inclinadas, o retorcidas. Albrecht-Buehler ve este torque como mayor resolución angular, pero el arreglo “propeller-like” también podría servir para atornillar centriolos a través del citoplasma, asumiendo una rotación centriolar como sugirió Bornens (Record, 1986). Dos detectores se colocan mejor en ángulos rectos entre sí, de modo que uno pueda localizar la “longitude” mientras el otro localiza la “latitude” de la fuente de señal. Los cuerpos basales tipo centriolo fijados perpendicularmente en una superficie celular bidimensional usualmente no están acompañados por un segundo cuerpo basal en ángulo recto. Así, la formación de cilindros emparejados en ángulo recto permite exposición global y cálculo tridimensional innecesarios en cuerpos basales. La visión de Albrecht-Buehler de los centriolos como detectores de señal perfectamente diseñados es complementaria con el concepto de Bornens de un oscilador giroscópico y centro de señalización. La combinación de los dos modelos resulta en un centro celular dinámico capaz de pilotar actividades citoplasmáticas.

Figure 66: Figura 8.4: Centriolo en sección transversal compuesto por nueve tripletes MT angulados como “Venetian blinds” desde el eje del centriolo. Los pares de centriolos consisten en cilindros perpendiculares. Albrecht-Buehler (1985) sostiene que estos rasgos son idealmente adecuados para detección de señales. Bornens sugiere oscilaciones rotatorias de centriolos que conducen a función giroscópica. Por Paul Jablonka.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica la geometría propuesta de detector de señales con nueve tripletes angulados, el par perpendicular de centriolos y el concepto de oscilación rotatoria de Bornens.
Albrecht-Buehler (1985) también ha considerado un mecanismo para propagación de señales a lo largo de microtúbulos. Considera que cada protofilamento MT es una cadena de dímeros de tubulina alpha-beta: AB, AB, AB, …, AB. Dentro de la pared de un microtúbulo, cada monómero está en contacto con otros monómeros del mismo protofilamento y con los de protofilamentos adyacentes. En consecuencia, cada monómero está sujeto a fuerzas Van der Waals atractivas de monómeros de tubulina circundantes que mantienen juntos los protofilamentos y cilindros MT. Albrecht-Buehler propuso que cada una de estas interacciones debe debilitar el enlace dimérico A-B; en consecuencia, la pared de un microtúbulo existe en un estado de resonancia respecto a las fuerzas relativas de los enlaces intermonoméricos. Por ejemplo, (A-B) (A-B) … (A-B) (A-B) podría resonar con (A) (B-A) (B-A) … (B-A) (B). Tal cadena resonante podría propagar información a cerca de la velocidad de la luz.
Albrecht-Buehler está sugiriendo una resonancia comunicativa coherente entre estados conformacionales proteicos dentro de ensamblajes MT.
Dynamic Tensegrity/Heidemann and Jarosch
Buckminister Fuller propuso una arquitectura interesante construida a partir de componentes que pueden tener una estructura recursiva o fractal (Fuller, 1975). Su estructura de nivel macro, un “tensegrity mast”, es una estructura rígida construida a partir de un ensamblaje de miembros de tensión y compresión. Los miembros de compresión de puntales sólidos están aislados entre sí, mantenidos juntos por los miembros de tensión. En una de las variaciones de Fuller, observa que en el macro tensegrity mast cada puntal sólido individual puede ser reemplazado por una versión miniaturizada del macro tensegrity mast. Y luego cada uno de los puntales sólidos miniatura puede ser reemplazado a su vez por un tensegrity mast subminiatura aún más pequeño, y así sucesivamente hasta el nivel atómico. Así, las estructuras de tensegrity pueden tener una subestructura fractal.
Joshi, Chu, Buxbaum y Heidemann (1985) han mostrado que el citoplasma tiene elementos tanto compresivos como tensiles. Microtúbulos semirrígidos están bajo compresión, presumiblemente debido a tensión generada por actin filaments y la microtrabecular lattice o “cytomusculature” (Capítulo 5). En general, los MT no contactan entre sí, de modo que la capacidad autosustentante del citoplasma puede derivar de tensegrity.
Robert Jarosch (1986) ha publicado una serie de artículos que describen interacciones actin-MT que sugieren que 1) actin filaments contráctiles se enrollan espiralmente alrededor de microtúbulos, 2) la contracción coordinada de los actin filaments imparte un torque rotacional a los MT, algo parecido a una peonza, 3) actin filaments enrollados en direcciones opuestas sobre el mismo MT pueden causar oscilaciones rotacionales del MT. Estos dos modelos encajan para proporcionar una imagen de una red de tensegrity citoplasmática dinámica en la cual el citoesqueleto puede estar retorciéndose hacia adelante y hacia atrás, incluso “rockin’ and rollin’!” La perturbación de cualquier parte de tal red de tensegrity podría tener consecuencias dinámicas por todo su dominio. Cambios transitorios en tensión, compresión o ritmo oscilatorio causados por una variedad de factores serían detectables y posiblemente amplificados por todo el citoesqueleto.
Dynamic MT Probing/Kirschner and Mitchison

Figure 67: Figura 8.5: Robert Jarosch ha propuesto que actin filaments se enrollan alrededor de microtúbulos y se contraen, causando que los MT roten y oscilen alrededor de su eje largo. Con permiso de Robert Jarosch (1986).
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica el modelo propuesto por Jarosch en el que enrollamientos de actina contráctil pueden aplicar torque a un microtúbulo y enrollamientos opuestos pueden impulsar oscilación rotatoria.
Evidencia fuerte apoya el concepto de dynamic instability en ensamblaje de microtúbulos (Capítulo 5). Muchos MT existen ya sea en fases de crecimiento o de encogimiento, y tienden a predominar MT estabilizados en apenas un extremo por microtubule organizing centers (MTOC) basados en centriolos. La retención selectiva de MT basados en MTOC establece polaridad celular importante en extensión de axones y dendritas, elongación de células en desarrollo embriológico, y formación de lamellipodia y filopodia en células locomotoras. Todos son ejemplos del “Indian rope trick” en el cual las células de algún modo eligen su dirección de crecimiento y luego crecen en esa dirección. Una señal presentada en la periferia celular puede conducir a reordenamientos de simetría y polaridad celulares. Kirschner y Mitchison (1986) preguntan: “¿cómo puede una pista periférica conducir a reorganización en lo profundo de una célula?” Una posibilidad es que una señal sea retransmitida al microtubule organizing center, conduciendo a un cambio en su estructura, orientación y nucleación dirigida de microtúbulos. Esto sería consistente con un papel primario de integración de información y toma de decisiones dentro del MTOC. Una idea más simple, “non-hierarchical”, es que una señal en la periferia afecta directamente la distribución. Puesto que todo el array citoesquelético es muy dinámico, sólo sería necesario estabilizar o desestabilizar un subconjunto particular de microtúbulos para que todo el citoesqueleto se transforme rápidamente. La estabilización preferencial de un microtúbulo (MTOC, GTP capping, unión a estructuras relacionadas con membrana, etc.) podría estar mediada por interacciones en la periferia celular cerca del sitio que recibe información ambiental. Kirschner y Mitchison (1986) han propuesto que la dinámica del microtubule array resulta en probing de muchas regiones al azar y, al estabilizar ciertas conformaciones a medida que surgen, la célula “puede llegar a una estructura que no está definida precisamente por información genética pero cumple un papel funcional particular según lo dictado por factores ambientales”. Los MT dinámicamente inestables ofrecen muchas posibilidades para controlar la distribución de MT por estabilización selectiva. Kirschner y Mitchison sugieren que la tendencia al probing y la transformación es una ventaja fundamental que favoreció la evolución de microtúbulos dinámicamente activos.
Sphere Packing Screw Symmetry/Koruga
Hay 32 arreglos de simetría posibles de esferas empaquetadas en un cristal cilíndrico. Erickson (1973) usó empaquetamiento hexagonal de protein monomers para explicar la forma y patrones de virus, flagella y microtúbulos. Djuro Koruga (1986), de la Molecular Machines Research Unit de la University of Belgrade, ha analizado las leyes de simetría que describen el empaquetamiento esférico cilíndrico y la estructura de los microtúbulos. Koruga ha usado tanto empaquetamiento hexagonal como face centered cubic packing de esferas para explicar la organización microtubular. Koruga (1986):
El grupo particular de simetría que representa el empaquetamiento de esferas en microtúbulos es ‘Oh(6/4).’ El empaquetamiento hexagonal puede describirse usando condiciones fijas si los centros de las esferas yacen sobre la superficie del cilindro y si los valores de las esferas en el eje largo del cilindro son los mismos que en la dimensión del face centered cubic packing. La simetría six fold y la configuración dimérica conducen a screw symmetry sobre el cilindro: un dominio puede repetirse translocándose de manera espiral sobre el cilindro. Desde coding theory, las leyes de simetría de subunidades de tubulina sugieren que 13 protofilamentos son óptimos para los mejores códigos binarios correctores de errores conocidos con 64 code words. La teoría de simetría sugiere además que un código debe contener alrededor de 24 monomer subunits o 12 dímeros.

Figure 68: Figura 8.6: Derivación de Koruga de la simetría de los microtúbulos. Con permiso de Djuro Koruga (1986).
Los argumentos de simetría de Koruga pueden compararse con el concepto de “gradion” de Roth, Pihlaja y Shigenaka, en el cual se piensa que un campo de alrededor de 17 monómeros representa una unidad básica de información. Koruga también concluye que la simetría y estructura de los microtúbulos son óptimas para procesamiento de información.

Figure 69: Figura 8.7: Screw symmetry de Koruga y unidad óptima de información en la pared de lattice del microtúbulo. Con permiso de Djuro Koruga (1986).
Cytoskeletal Self-Focusing/Del Giudice
Como se describió en el Capítulo 6, un grupo de científicos de la University of Milan ha aplicado las herramientas matemáticas de “many body problems” a las actividades de biomolecular dipoles. Del Giudice, Doglia, Milani y Vitiello (1985, 1982) han usado quantum field theory para describir el estado electret de sistemas biológicos (agua ordenada que rodea biomoléculas lineales) y determinaron que existe una fuerte probabilidad de propagación de ondas particle-like en biomoléculas. Además, el ordenamiento del agua debería conducir a self-focusing de energía electromagnetic en haces filamentosos excluidos por la simetría ordenada. Para citoplasma ordenado, calculan que el diámetro para el confinamiento y propagación de ondas particle-like (massless bosons, o solitons) en biomoléculas es de alrededor de 15 nanómetros, exactamente el diámetro interno de los microtúbulos.
La propuesta del grupo de Milán tiene una cantidad de implicaciones. El confinamiento dentro de regiones filamentosas excluidas del agua favorecería la propagación de energía electromagnetic en sistemas biológicos, y proporcionaría un mecanismo para alineamiento y comunicación (el “Indian rope trick”). Además, los polímeros citoesqueléticos pueden ser capaces de capturar y utilizar energía electromagnetic ambiental o generada biológicamente. Un ejemplo posible es la energía infrarroja que rutinariamente es generada por dipoles en moléculas biológicas. Generalmente se cree que esta energía se disipa como calor dentro del citoplasma acuoso; sin embargo, “self-focusing” podría utilizar esta energía productivamente en un medio comunicativo. El modelo de Milán incluye también generación lateral de fuerza por energía enfocada dentro de filamentos citoesqueléticos, lo que sería útil en maniobra y comunicación biomoleculares.
MT Automata, Holography/Hameroff, Watt, Smith.
Se piensa que el self-focusing de energía electromagnetic descrito por el grupo de Milán ocurre por un aumento inducido por electret en el índice refractivo del citoplasma. Un concepto similar fue propuesto (Hameroff, 1974), en el cual se pensaba que los microtúbulos actuaban como “dielectric waveguides” para fotones electromagnéticos. El tejido vivo transmite luz más fácilmente que el material no vivo. Van Brunt, Shepherd, Wall, Ganong y Clegg (1964) midieron penetración de luz solar en cerebro de mamífero por rutas distintas del sistema visual. Fotoreceptores colocados estereotácticamente registraron intensidades de 10-3 lumens en hipotálamo de oveja cuando la intensidad superficial era de 0,4 lumens, con una disminución logarítmica. Las áreas más permeables a la luz estaban en las regiones temporales del cráneo, laterales a las órbitas; los polos temporales del cerebro y el hipocampo recibían máxima intensidad luminosa. Cuando los animales fueron sacrificados, la penetración de luz hasta el hipotálamo permaneció constante durante alrededor de 30 minutos, tras lo cual la opacidad cerebral aumentó bruscamente. Esto sugiere que alguna propiedad del tejido cerebral vivo es relativamente translúcida a fotones ópticos; MT polimerizados actuando como waveguides pueden ser tal propiedad.
Hameroff (1974) también propuso que el array periódico de subunidades MT “filtraba”, o difractaba energía con periodicidad de 8 nanómetros, resultando en una fuente de energía “coherent” (o iones calcio) desde cada MT. La interferencia citoplasmática de las fuentes coherentes entre múltiples MT conduciría a holographic imaging en el citoplasma. El acoplamiento de concentraciones de calcio a estados sol-gel citoplasmáticos podría “hardwire” patrones holográficos en la microtrabecular lattice. En arrays paralelos de MT dentro de fibras nerviosas, se pensaba que potenciales graduados o potenciales de acción viajeros activaban colectivamente “planos” de citoplasma perpendiculares al eje largo de los MT y fibras nerviosas. Estos planos viajeros pueden compararse con pantallas de imagen como en televisores. En un tubo de imagen de TV, la pantalla está inmóvil y haces de electrones se mueven para crear una imagen por su intersección con la pantalla. Quizá la formación de imágenes dentro de neuronas ocurre sobre pantallas viajeras generadas por potenciales de acción que se mueven a través de arrays MT paralelos. El contenido de tales imágenes dependería de mecanismos de programación en la conformación de subunidades de tubulina que componen las paredes MT y que se actualizan con cada potencial de acción sucesivo. Hameroff y Watt (1982) describieron un método de programación de tubulina MT en el cual charge carriers (iones calcio, electrosolitons) u ondas conformacionales como phonons o solitons eran dirigidos a través de MT lattices por tubulinas programadas genética o citoplasmáticamente y sitios específicos de unión MAP. Se pensaba que puentes MAP hacia otros MT, citoesqueleto u otros orgánulos actuaban como “sinks” o “sources” que transmitían pulse trains de carga/conformación entre MT por todo el citoesqueleto como un medio regulador y comunicativo. Hameroff y Watt (1982, 1983) compararon los MT con microprocesadores en los cuales el switching en una “Boolean matrix” estaba determinado por factores de programación intrínsecos a las subunidades de tubulina (Figura 8.9).

Figure 70: Figura 8.8: Patrones de interferencia en citoplasma causados por ondas coherentes (e.g. Ca++, estado sol-gel, MTL) generadas por actividades dinámicas en microtúbulos pueden ser una base para imaginería holográfica de información.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica los patrones hipotéticos de interferencia generados por actividad coherente de microtúbulos.
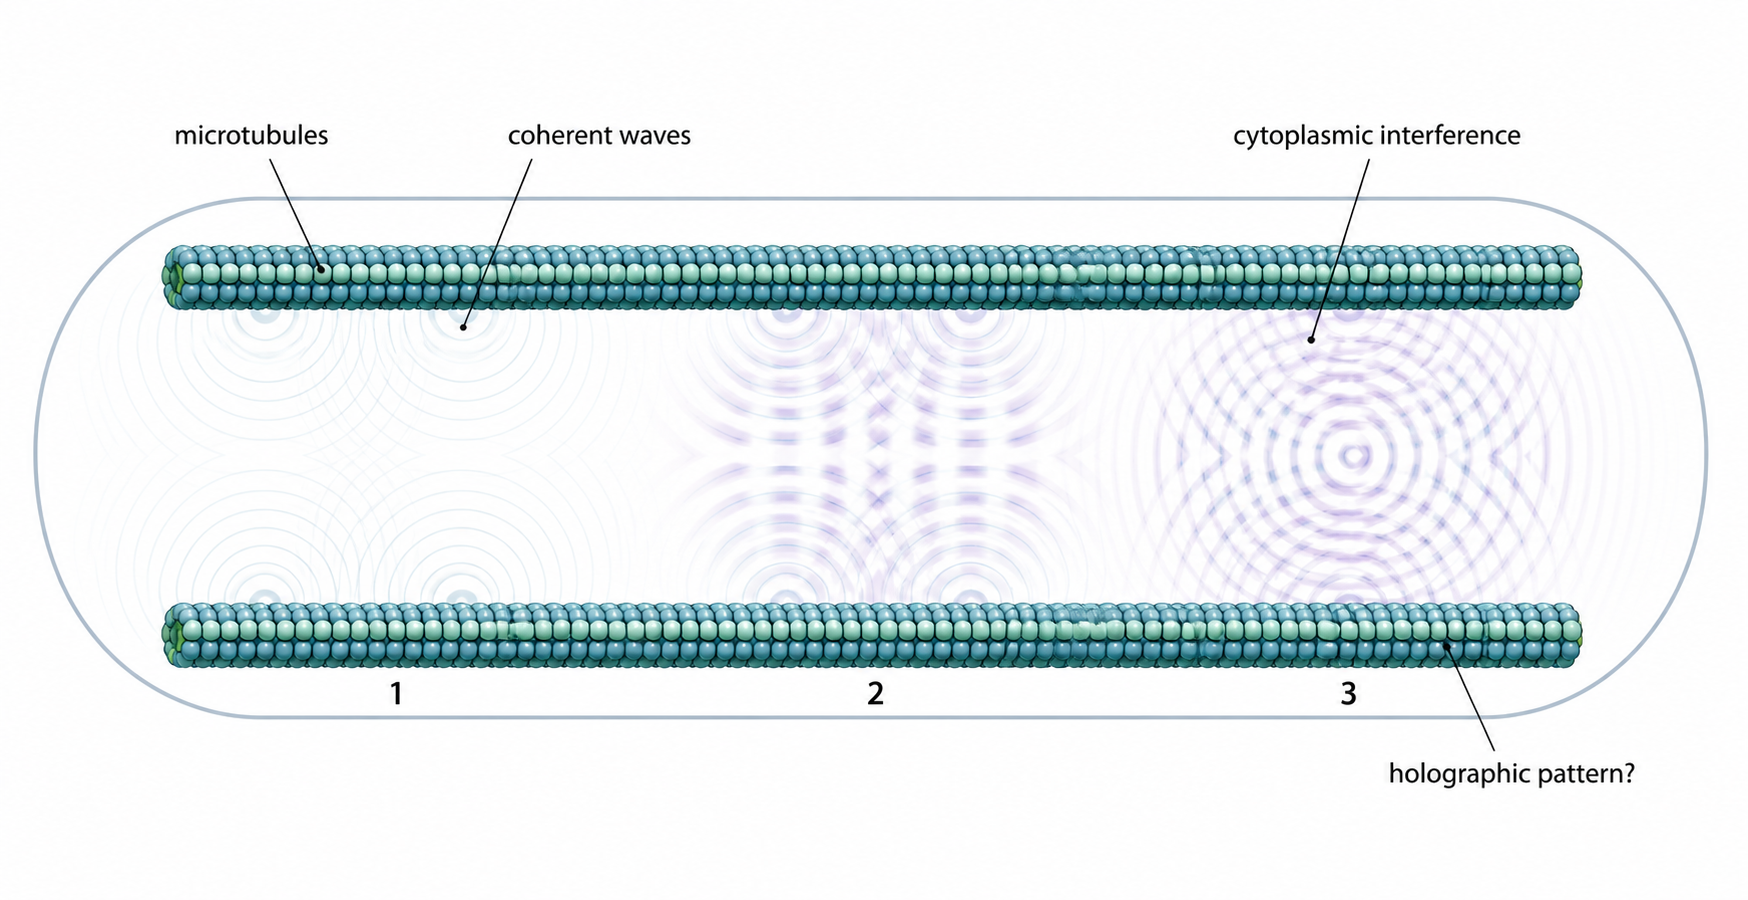

Figure 71: Figura 8.9: Boolean switching matrix en microtubule lattice de Hameroff y Watt (1982). Se consideraba que subunidades de tubulina alpha y beta en la pared de MT lattice estaban ocupadas transitoriamente por quanta de carga/energía/conformación. Las MAPs se comportaban como “left switches” o proteínas “sink” o “source”. Secuencias y patrones de estados conformacionales viajaban a través de la MT lattice y vía puentes inter-MT “sink” y “source” por todo el citoesqueleto, algo como una máquina de pinball. El modelo demostraba una capacidad tubulin-MAP para “programming” de actividades dinámicas relacionadas con inteligencia biológica.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica la matriz booleana de conmutación propuesta entre estados de tubulina, switches MAP y rutas sink/source.
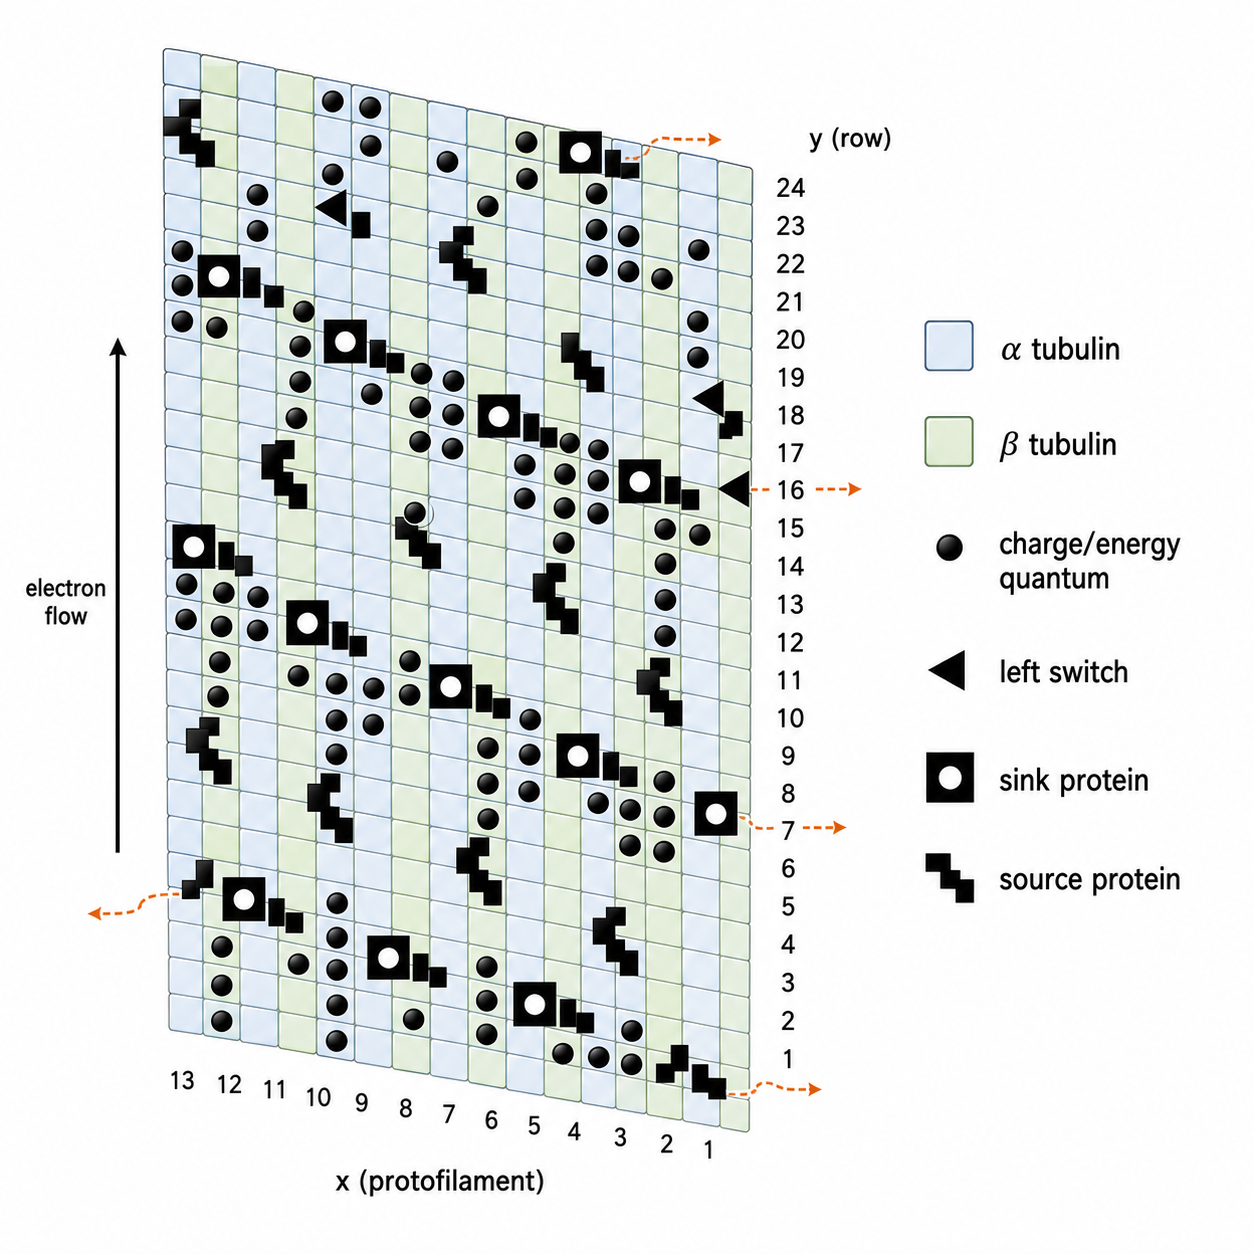
En artículos posteriores, Hameroff, Smith y Watt (1984, 1986) utilizaron principios de cellular automata para explicar procesamiento de información en MT. Como se describió en el Capítulo 1, cellular automata son sistemas dinámicos que pueden generar y procesar patrones e información, y son capaces de computar. Cellular automata requieren una estructura de lattice de vecinos “like” con estados discretos y neighbor rules, y un “clock” universal al cual todos los vecinos están sincronizados. Adoptando el modelo de Fröhlich de oscilaciones dipolares coherent nanosecond acopladas a estados conformacionales como mecanismo de clocking, los autores calcularon interacciones dipolares Van der Waals de vecinos de MT lattice como reglas para una simulación computacional de MT-automaton. Se consideró que cada tubulin dimer estaba en uno de dos estados posibles en cada “generation” de nanosegundo. Los dos estados estaban relacionados con el concepto de Fröhlich de oscilación dipolar, de modo que el dipolo podía orientarse ya sea hacia el alpha tubulin end (“a,” Figura 8.10) o hacia el beta tubulin end (representado por un punto en la Figura). La polaridad y el comportamiento electret de los MT indican que en estado de reposo, los dipolos de tubulin dimer deberían estar orientados hacia el beta monomer.
Los estados de dímero en cada “clock tick”, o generation, eran determinados por estados vecinos en la generation previa.

donde n = 7 como número de vecinos, y f(y) la fuerza desde el vecino “ith” en la dirección y.

El estado dipolar de cualquier dímero particular en cada clock tick depende así de la suma de los estados dipolares vecinos del dímero (incluido el suyo propio) en el clock tick previo. Las influencias vecinas son desiguales debido a la screw symmetry de la MT lattice. Se esperaría que dímeros distantes (a más de un vecino de distancia) tuvieran poca influencia debido a la caída en intensidad de fuerza (y/r3) con la distancia. Sin embargo, influencias colectivas de muchos dímeros orientados “like” podrían conducir a cooperativity de largo alcance. Usando sólo influencias de vecinos cercanos, la simulación computacional de un MT automaton produjo patrones interesantes y comportamiento de estados dipolares/conformacionales. Estos incluían patrones interactivos tanto estables como viajeros capaces de computación y regulación de actividades citoesqueléticas. Por ejemplo, la Figura 8.13 muestra un patrón “kink-like” viajando a través de una MT lattice, dejando una “wake”, o memoria, alterada. Asumiendo generations de nanosegundo, estos patrones viajeros viajarían a 8 nanómetros por nanosegundo (80 metros por segundo), una velocidad consistente con potenciales de acción propagantes, o solitons. Variabilidad en isozymes individuales de tubulin dimer, ligand binding, o adhesiones MAP podrían “program” y “read out” información en funciones celulares rutinarias. Como un ejemplo, la propagación de patrones conformacionales MT podría coordinar las actividades de MAP sidearms contráctiles en transporte axoplásmico. En un sentido general, MT automata pueden ser el sustrato de información para actividades biológicas que van desde ciliary bending hasta conciencia humana. Patrones específicos de automata distribuidos por amplios volúmenes de arrays citoesqueléticos dentro del cerebro podrían conducir a resonancia cooperativa y efectos colectivos que resultan en un pensamiento o idea de manera similar a como transiciones de fase inducidas por coherencia en metales producen propiedades colectivas emergentes como superconductividad.

Figure 72: Figura 8.10: Arriba: subunidades de dímero MT-tubulin compuestas por monómeros a y b. La ocupación electrónica relativa de cualquiera de los monómeros puede correlacionarse con oscilaciones dipolares coherentes en el dominio temporal de nanosegundos. Abajo: el empaquetamiento hexagonal de screw symmetry conduce a neighbor rules desiguales basadas en distancias de lattice e interacciones dipolares Van der Waals. Para los dímeros mostrados a la derecha, x = 5 nm, y = 4 nm, r = 6,4 nm. La fuerza relativa de cada estado dipolar de dímero vecino es y/r3.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica cómo la ocupación electrónica alpha/beta se traduce en estados simbólicos del autómata y cómo las distancias de screw-symmetry hacen desiguales las influencias vecinas.
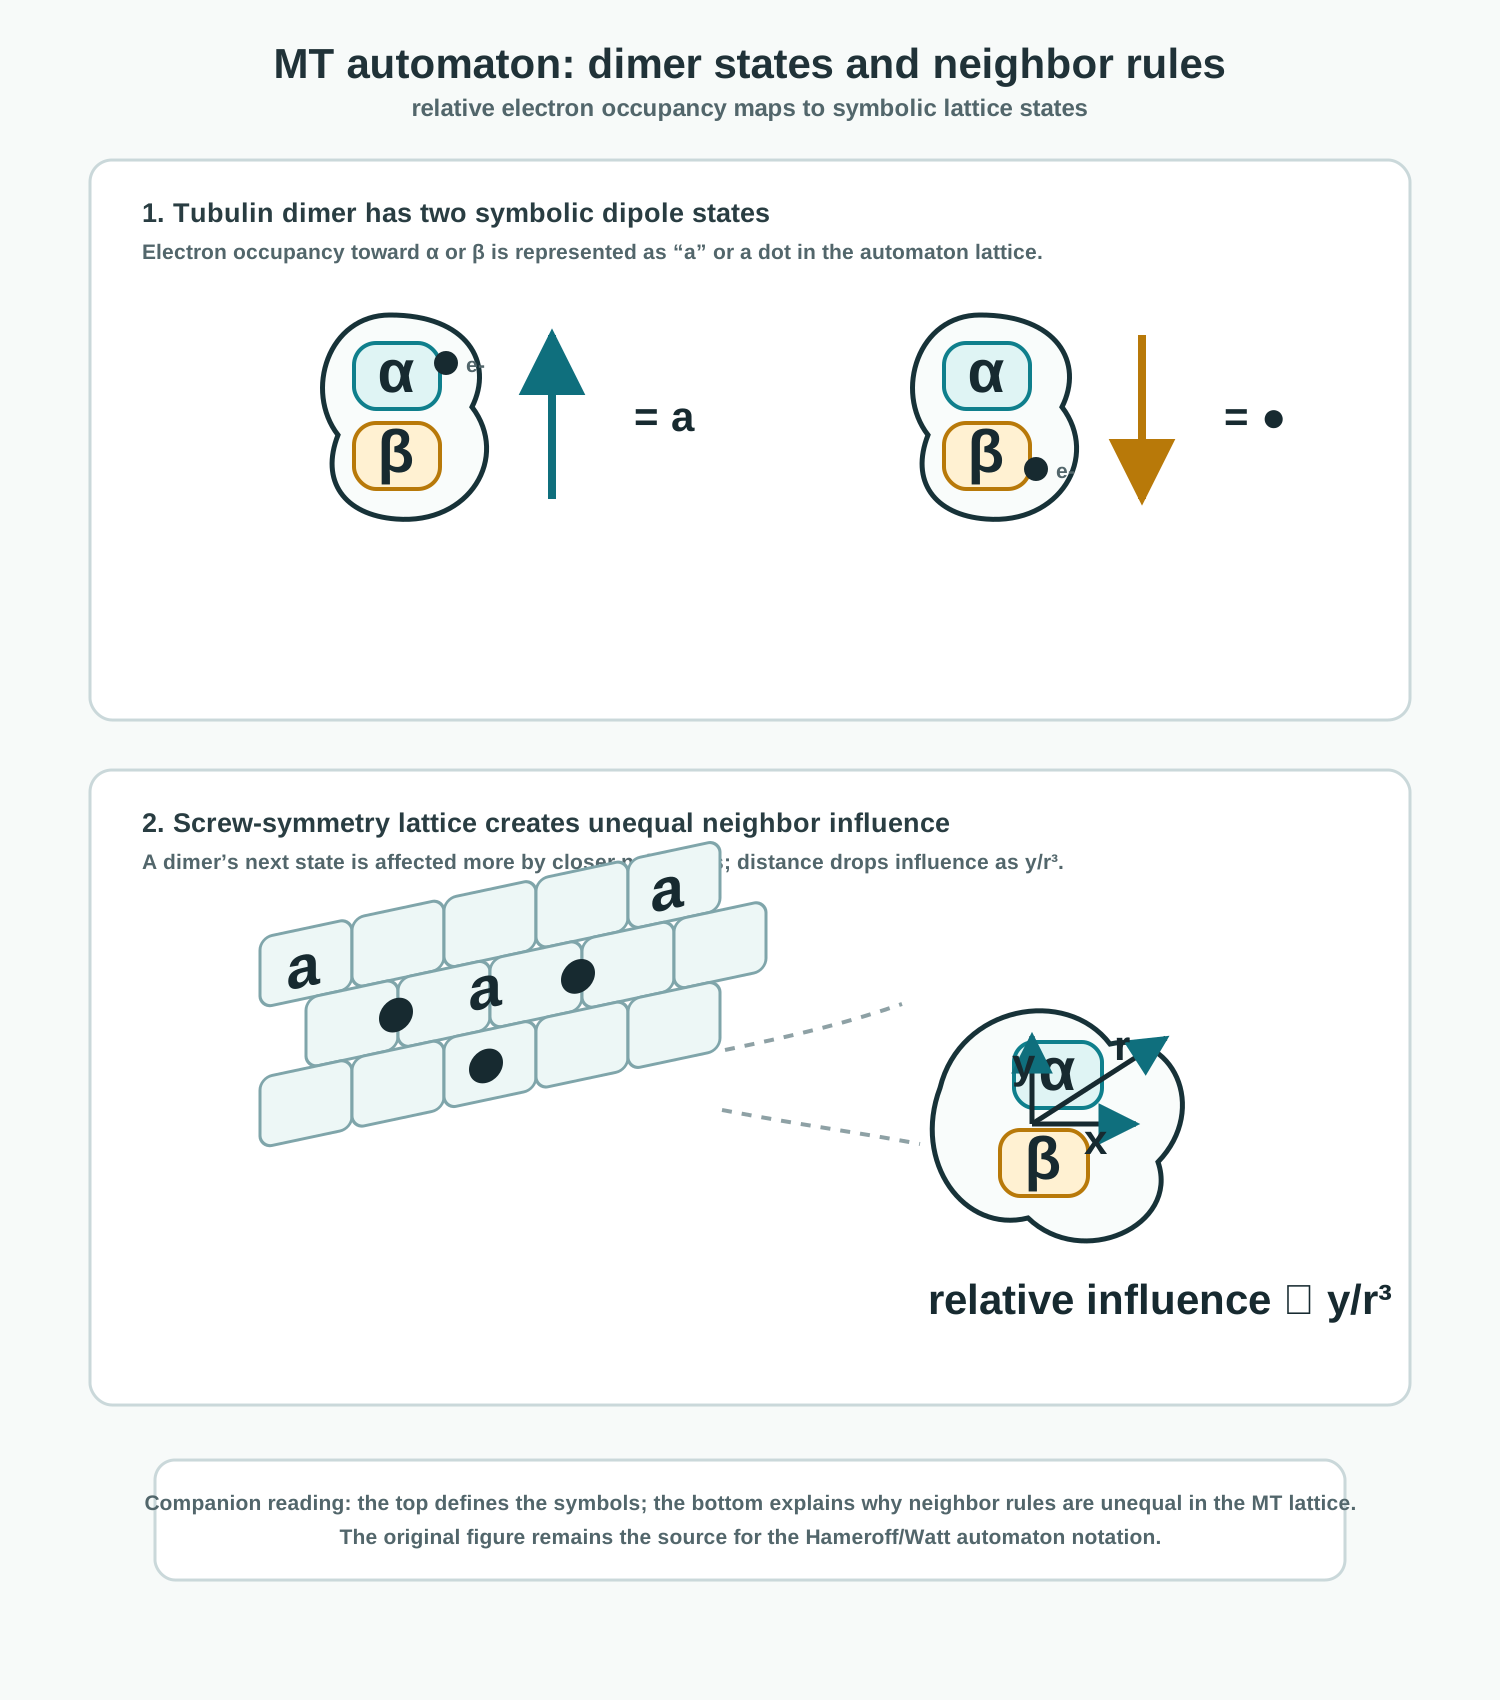

Figure 73: Figura 8.11: 30 “nanoseconds” de simulación computacional de MT cellular automaton basada en oscilaciones coherentes de Fröhlich y neighbor rules de subunidad de tubulina basadas en interacciones dipole-dipole. 13 protofilamentos están dispuestos horizontalmente, 64 filas se muestran verticalmente, produciendo una MT lattice plana. Estados “Alpha” de tubulina (Figura 8.10) se muestran mediante “a,” estados beta mediante un punto. 4 estados beta contiguos se destacan por patrones de diamante, 4 estados alpha contiguos por puntos oscurecidos. La secuencia de simulación (generations 40, 45, 55 y 70) muestra movimiento de patrones a velocidad de 80 nanómetros por nanosegundo (80 metros por segundo). Con permiso de Hameroff, Smith y Watt (1984).

Figure 74: Figura 8.12: Continuación de la secuencia de MT cellular automaton de la Figura 8.11. Patrones alpha y beta colisionan y generan formas extrañas, dejando la configuración alterada respecto del estado inicial. Tales interacciones podrían representar “computing” y “memory” rudimentarias. Con permiso de Hameroff, Smith y Watt (1984).

Figure 75: Figura 8.13: Modelo de cellular automaton de procesamiento de información en microtúbulos. Un patrón “kink-like” se mueve de izquierda a derecha. De Hameroff, Smith y Watt (1984, 1986).
La Conexión Citoesquelética
Microtúbulos, centriolos y citoesqueleto evolucionaron para tomar el mando de la biología. Al estar en la escala de tamaño correcta y moverse en la escala temporal correcta, parecen capaces de utilizar muchas formas de energía disponible. La polaridad MT, la estructura periódica y el array de lattice helicoidal de subunidades conformacionalmente programables los califican como “ultimate computers” y también como nanoengines, generando fuerza y movimiento intencionales. Pueden capturar y self focus radiación electromagnética, inducir coherency y propagar quanta de energía con pérdida mínima. La propagación puede manifestarse como ondas de polarización coherentes, como describió Fröhlich, massless bosons, como describió Del Giudice, o como solitons, como describió Davydov. Charge density waves o proton transfer en capas superficiales MT de ordered water, e iones contrarios cargados positivamente como calcio, son otros modos posibles disponibles para transferencia de información y energía basada en el citoesqueleto.

Figure 76: Figura 8.14: Patrón “kink-like” continúa de izquierda a derecha a través de MT automaton. Tales patrones dinámicos pueden representar y computar información, servir como sitios de unión para moléculas transportadas, designar sitios de adhesión MAP y de puentes inter-MT, o generar ondas coherentes de estados sol-gel acoplados a calcio.
Los excedentes electrónicos MT ocurren debido a una abundancia de aminoácidos ácidos. Con la polaridad intrínseca de cada subunidad de dímero de tubulina, los MT residen en un fuerte campo polar o “electret” que posee propiedades piezoelectric. Cada subunidad MT puede así “integrar”, siendo capaz de absorber y percibir input en forma de energía acústica, fotones ópticos, ATP químico, cambios de potencial alterados, flujos de calcio y otros iones, y responder con cambios conformacionales acordes. Cada subunidad dentro de una microtubule lattice no sólo puede representar información, sino que puede input y output información hacia un automaton en curso. Oscilaciones coherentes en estados de subunidades de tubulina MT entre bosques regionales de microtúbulos pueden proporcionar un medio comunicativo en el cual cualquier subunidad fuera de fase induce ondas de desacoplamiento de fase a lo largo de la estructura MT. Alteraciones que perturban la coherency podrían ser amplificadas por oscilaciones colectivas entre macroensamblajes citoesqueléticos como centriolos rotatorios o estructuras de tensegrity de MT enrollados por actin filaments contráctiles.
Varios otros modos posibles de gestión de información se presentan en la estructura de MT. ¿Podrían los huecos entre subunidades de tubulina actuar como poros? La abundancia relativa de cargas electronegativas en la superficie externa de microtúbulos cilíndricos puede crear gradientes a través de paredes tubulares si el interior MT es neutro o positivo. Actualmente no medible, incluso un pequeño gradiente a través de paredes MT de 4 nanómetros comprendería un campo de voltaje significativo. Así, un soliton propagante, charge density wave, o hinchazón osmótica transitoria de procesos nerviosos podría abrir “cracks” entre las subunidades de tubulina para permitir flujo iónico o radiación de energía electromagnetic enfocada y atrapada dentro de MT. Alternativamente, un núcleo interior MT electronegativo podría apoyar la sugerencia de Del Giudice de superconductividad citoesquelética. Energía self-focused que ejerce fuerza perpendicular al eje largo de MT podría dar cuenta de efectos misteriosos como el nacimiento perpendicular de centriolos hijos y puentes MAP inter-MT. Flujos de energía o iones radiados desde MT debido a ondas propagantes serían coherentes debido a la periodicidad espacial de los huecos entre las subunidades de tubulina, y podrían formar así la base de interferencia de ondas coherentes en un holograma tridimensional. Acoplado a estados calcium/sol-gel, el citoplasma holográfico puede ser un lienzo “infoplasmic” para información biológica dinámica.
En el cerebro, arreglos altamente paralelos de proteínas citoesqueléticas dentro de axones y dendritas asimétricos sugieren analogías con parallel computing. La propagación de potenciales de acción u ondas de despolarización dendrítica podría inducir secuencias de alteraciones de estados de subunidades MT debido a influjo de calcio, alteración de campos eléctricos, o efectos mecánicos directos cuando sodio y agua hinchan transitoriamente el proceso nervioso. Las señales pueden reverberar cooperativamente por todo el citoesqueleto mediante ondas de liberación y captación de calcio, mechanical/electrosolitons propagándose a través de la cytoskeletal lattice, y/o propagación lateral a través de sidearms y otros componentes de la red citoesquelética. Flujos transitorios de calcio resultantes de ondas conformacionales que se propagan por lattices citoesqueléticas en paralelo con potenciales de acción u ondas de corriente dendrítica pueden resultar en frames viajeros de imaginería dinámica. Secuencias de frames de imagen que viajan a través de citoplasma holográfico y cambian con cada disparo nervioso pueden ser colectivamente el “Mind’s Eye”, el “grain of the engram”.
El modelo prevalente actual de función cerebral es la “neural network”, un sistema dinámico colectivo cuya salida está determinada por los estados de sinapsis neuronales componentes. A su vez, el estado de cada sinapsis está determinado por otras neuronas moduladas por efectos dinámicos colectivos del citoesqueleto interneuronal. A su vez, el citoesqueleto es un sistema dinámico colectivo cuya actividad neta está determinada por los estados de sus subunidades componentes. Sus estados, a su vez, están determinados por otro nivel de organización que incluye factores citoplasmáticos, ordered water e iones, isozymes genéticos de subunidades individuales, y elementos citoesqueléticos de nivel inferior como la microtrabecular lattice. Cada subunidad citoesquelética es un computador capaz de integrar múltiples inputs hacia un estado de output específico. Procesos cognitivos que se han atribuido a un concepto de neural net pueden así interpretarse con mayor precisión como una jerarquía fractal de sistemas dinámicos que son altamente paralelos, altamente interconectados, y de capacidad creciente a medida que se vuelven más microscópicos. Efectos colectivos pueden ocurrir en cada nivel y en niveles sucesivamente más macroscópicos. El efecto neto puede ser conciencia.
Los microtúbulos y el citoesqueleto crearon su lugar en la historia evolutiva al ser solucionadores de problemas, movedores de orgánulos, organizadores celulares y circuitos de inteligencia. ¿A dónde van desde aquí?
Virus/Formas de Vida Ambiguas
¿Cuál Es la Esencia de la Materia Viva?
Oparin (1938) propuso que la materia viva se definiera por poseer las siguientes propiedades: metabolismo, autorreproducción y mutabilidad. Eigen (1971) observó que estos criterios podían ser satisfechos por entidades decididamente no biológicas como los “self-reproducing automata” de von Neumann, o por diversos robots. Incluso algunos sistemas biológicos simples son algo ambiguos respecto de su estatus “life-like”. Los sistemas primitivos que difuminan la distinción entre animado e inanimado incluyen virus, prions (cristales de proteína que pueden ser agentes causales en algunas enfermedades humanas) y proteinoids (ensamblajes proteicos self organizing) implicados en los orígenes de la vida (Fox, 1972). Elementos citoesqueléticos independientes también tienen características de estar “vivos”. Los microtúbulos deslizantes que R. D. Allen y colegas (1985) aislaron del axoplasm de calamar deambulan, evitan colisiones y tienen un sentido de dirección. ¿Están vivos? Si tecnologías futuras conducen a nanoscale replicating automata, la distinción entre entidades vivas y no vivas se volverá todavía más nebulosa.
(Mal)Comportamiento Viral
Entre las variedades más básicas de vida están los virus. Su estructura y actividades simples han suscitado preguntas sobre si están realmente “vivos”, o son meramente robots químicos que se multiplican y residen dentro de organismos verdaderamente vivos. Los virus se forman espontáneamente a medida que sus subunidades simples se ensamblan en estructuras tridimensionales complejas. El proceso de ensamblaje, impulsado por la mayor estabilidad o menor energía del virus completado, fluye contra la segunda ley de la termodinámica, que dicta que el orden procede hacia el desorden. Datos del virus del mosaico del tabaco (Capítulo 6) muestran que las hydrophobic interactions que excluyen water de las subunidades no ensambladas compensan el aumento de orden (entropía negativa) del virus ensamblado.

Figure 77: Figura 9.1: Virus fago aterrizando e inyectando material genético en la célula huésped. El collar cilíndrico experimenta una contracción conformacional colectiva asociada con la inyección. Por Paul Jablonka.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica la acción del fago en dos pasos: aterrizaje/contacto con la célula huésped seguido de contracción colectiva de la cola e inyección de material genético.
Generalmente, los virus entran en células y piratean su maquinaria genética para causar multiplicación viral; luego escapan para comenzar otro ciclo. Algunos virus residen tranquila e inofensivamente dentro de células huésped durante períodos extremadamente largos de tiempo, mientras que la estancia de otros virus implica el comando total de la maquinaria celular y puede tener consecuencias extremadamente dañinas para el huésped. Las enfermedades humanas inducidas por virus van desde resfriados comunes triviales e influenza hasta varicela, sarampión, hepatitis, polio, y enfermedades mortales como viruela, rabia, fiebre amarilla, cáncer y síndrome de inmunodeficiencia adquirida (“AIDS”). Algunas enfermedades virales como la viruela han sido controladas por la medicina moderna, pero otras como AIDS siguen siendo amenazas significativas para la salud humana.
Una vez ensamblados dentro de una célula huésped, los virus pueden escapar de varias maneras. Una ruta implica causar la muerte y desintegración de la célula huésped, permitiendo que los virus recién formados se derramen hacia fuera y lleven su infección a otro lugar. Los virus que están cubiertos por lipid membranes también pueden escapar mediante “budding” o endocitosis inversa (“pinocytosis”), un mecanismo similar a la secreción o extrusión de vesículas neurotransmisoras desde synaptic boutons.
Una subclase importante de virus son los retrovirus, que contienen RNA sin DNA. Al llegar dentro de una célula huésped, el retrovirus trae una enzyme conocida como reverse transcriptase, que convierte el RNA monocatenario del virus en una copia de DNA bicatenario. Esto permite al virus comandar la maquinaria genética de la célula huésped. Entre los retrovirus humanos está HTLV-III (o “HIV”), portador de AIDS.
Estructura Viral y Oscilaciones Colectivas
La estructura viral incluye hasta tres componentes principales: material genético (ya sea DNA o RNA), una cubierta proteica que rodea el material genético, y una membrane (Figuras 9.1 a 9.3). Un ejemplo de cubierta proteica viral es la lattice cilíndrica similar a la estructura microtubular que se encuentra en el virus del mosaico del tabaco, el primer virus que fue aislado (por el botánico ruso Dimitri Ivanovski a fines del siglo XIX). En los adenovirus, la cubierta proteica es un icosaedro: un polígono de 20 lados con 12 vértices. Las cubiertas proteicas del virus de la influenza son esféricas y pueden incluir glycoproteins que sobresalen hacia fuera rodeadas por lipid membranes. Otra estructura viral interesante es la de los bacteriófagos, que inyectan activamente su DNA en células bacterianas huésped. El bacteriófago se parece algo a un módulo lunar nanoscale y tiene una cabeza icosaédrica montada mediante un collar sobre una cola cilíndrica que, a su vez, está sostenida por una placa basal que contacta la superficie de una célula bacteriana. Ante un estímulo apropiado, la cubierta proteica del virus bacteriófago experimenta un evento conformacional colectivo; la contracción de todo el ensamblaje de la cola resulta en la inyección activa de DNA viral a través de la pared celular bacteriana y hacia el citoplasma de la célula bacteriana. Esta secuencia de eventos requiere una comunicación coordinada y una respuesta activa, y puede interpretarse como una inteligencia rudimentaria.

Figure 78: Figura 9.2: Estructura icosaédrica de una cubierta proteica de adenovirus. Por Paul Jablonka.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica la cubierta de adenovirus como una cápside icosaédrica con caras triangulares, vértices y subunidades proteicas repetidas.

Figure 79: Figura 9.3: Vista longitudinal de la trayectoria del DNA en una estructura de virus del mosaico del tabaco. La trayectoria realiza alrededor de 120 vueltas completas. Por Paul Jablonka.
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica la estructura longitudinal del virus del mosaico del tabaco como una cubierta proteica cilíndrica con una trayectoria helicoidal del ácido nucleico de alrededor de 120 vueltas.
¿Cómo realizan los virus actos cognitivos como detectar superficies de células huésped e inyectar en ellas sus nucleic acids? Una posibilidad es mediante perturbaciones de vibraciones colectivas de sus cubiertas proteicas. Michels, Schulz, Witz, Pfieffer y Hirth (1979) midieron absorción ultrasónica de ensamblajes proteicos sobre un rango de 105 a 109 oscilaciones por segundo. Encontraron que las estructuras ensambladas absorben mucha mayor energía ultrasónica que las subunidades individuales no polimerizadas, sugiriendo una oscilación colectiva del ensamblaje proteico. Por ejemplo, el Brome mosaic virus icosaédrico intacto absorbió energía con una frecuencia media de 5 x 10⁷ por segundo. Robach, Michels, Cerf, Braunwald y Tripier-Darcy (1983) encontraron resultados similares con frog virus, y determinaron que la amplitud de desplazamiento de las oscilaciones era del orden de una décima de nanómetro. La mayor parte de la investigación sobre virus se ha enfocado en las capacidades genéticas del DNA o RNA viral para cooptar actividades de la célula huésped. Las cubiertas proteicas han sido consideradas como simples entornos para el transporte de DNA o RNA; sin embargo, realizan funciones análogas al cytoplasm organizado. Por ejemplo, las espículas de glycoprotein que se extienden hacia fuera desde algunos virus mientras permanecen ancladas a la cubierta proteica interactúan con la membrana huésped y las superficies de la pared celular para facilitar contacto y entrada. Esta actividad general implica información señalizada a través de la cubierta proteica que enactúa un cambio conformacional mecánico. Michels, Dormoy, Cerf y Schulz (1985) usaron técnicas similares para estudiar dos cepas del virus del mosaico del tabaco, así como otros ensamblajes proteicos incluidos microtúbulos. Observaron que las fluctuaciones dependen de la organización específica y la complejidad del ensamblaje, y que ciertos ensamblajes oscilan más que otros. Especulan que las oscilaciones colectivas de las cubiertas virales podrían funcionar en funciones comunicativas como la inyección de nucleic acids virales en células huésped. Los virus realizan funciones limitadas dedicadas a su propia replicación y supervivencia, pero sus oscilaciones colectivas podrían ser una pista sobre la esencia de la materia viva. Las oscilaciones colectivas de cytoskeletal proteins podrían servir a un papel comunicativo más versátil en todas las células eucariotas.
Naturaleza y Origen de los Virus
Decidir si los virus están vivos o no depende de una definición de vida. En su libro Pirates of the Cell, Scott (1985) concluye que la vida es un espectro de material animado a inanimado, y que los virus están en algún punto intermedio. Algunas características vitales de los seres vivos incluyen locomoción, nutrición, crecimiento, respiración, excreción, sensibilidad y reproducción. Según estos criterios, los virus no están vivos; sin embargo, materiales “inanimados” como los cristales sí manifiestan crecimiento, nutrición, reproducción y locomoción life-like. Definir la vida por la capacidad aparente de desafiar la segunda ley de la termodinámica (creando orden a partir del desorden) mediante el ensamblaje de estructura biológica organizada compleja desde el mundo no vivo desordenado ignora el hecho de que la ley termodinámica permanece inviolada en conjunto. Subunidades de cytoskeletal protein a nivel molecular o partículas virales se ensamblan en estructuras más altamente ordenadas; sin embargo, la exclusión hydrophobic de water desde las subunidades proteicas contrarresta el cambio de entropía, y el efecto neto sigue siendo el orden procediendo hacia el desorden.
Hay tres teorías generales sobre el origen de los virus (Scott, 1985). La primera es que los virus se originaron muy temprano en la evolución, antes del advenimiento de las células eucariotas. Según esta visión, los virus modernos son descendientes directos de moléculas primitivas tempranas que flotaban en la primordial soup or mud (Capítulo 3). La segunda idea es que derivan de parásitos que invadieron otras células y se volvieron gradualmente más simples, de-evolving hasta estar completamente ocupados sólo con supervivencia y multiplicación. La tercera noción, que domina las creencias actuales, es que los virus evolucionaron a partir de material genético de la vida celular: la hipótesis del “escaped gene”.
Virus Domesticados
Las capacidades de los virus pueden ser aprovechadas (Scott, 1985). Hace doscientos años Edward Jenner comenzó a desarrollar vacunas antivirales seguras y eficaces, una técnica que amplifica el immune system del cuerpo. Slopek y colaboradores (1983) han tratado pacientes afectados por infección bacteriana resistente a fármacos usando bacteriófagos virales seleccionados por su eficacia contra el organismo resistente. Científicos británicos (Williams, Smith y Huggins, 1983) han usado bacteriófagos para tratar infecciones intestinales en animales, y también se ha intentado el uso directo de virus para combatir infecciones bacterianas en humanos. Los bacteriófagos tienen ventajas potenciales sobre los fármacos modernos: son altamente específicos, pueden dejar ilesas las células huésped con efectos secundarios mínimos, y podrían producirse de manera barata. Sin embargo, las bacterias podrían desarrollar resistencias a los bacteriófagos como lo hacen frente a algunos fármacos.
Otros investigadores han usado virus explotados para producir proteínas naturales en masa mediante “genetic engineering”. Por ejemplo, el virus “Epstein-Barr” se ha usado para transformar células inmunes seleccionadas, que luego se multiplican y producen grandes cantidades de anticuerpos específicos útiles en medicina e industria. En algunos casos, los virus son cambiados a formas novedosas para usarse como vacunas vivas. Genes de organismos de influenza y hepatitis B pueden combinarse en un virus genome vacunal para protegernos contra enfermedades como hepatitis B y gripe. Genes que codifican proteínas de parásitos como el protozoo que causa la malaria están siendo añadidos a genomas virales adecuados (Smith, 1984). Los virus pueden transferir genes extraños a células bacterianas. El gene que codifica cualquier proteína deseada puede vincularse al material genético de un virus y, cuando el virus infecta células bacterianas adecuadas, el gene extraño es transportado con él. Una vez dentro, el gene transferido puede entonces comenzar a dirigir la fabricación de suministros abundantes de la proteína para la cual codifica. Así, los virus están siendo convertidos en ferrymen versátiles que pueden transportar toda una gama de proteínas hacia humanos y ganado.
Otras posibilidades excitantes incluyen transferir genes nuevos a células humanas. Muchos grupos de investigación, incluidos Richard Mulligan y sus colegas en MIT (Kolata, et al., 1984), están intentando construir virus que lleven genes nuevos a células humanas para curar enfermedades genéticas. Así, una cantidad de enfermedades hereditarias podría tratarse mediante manipulación genética usando bacteriófagos. Un primer paso sería hacer que un retrovirus inserte un gene terapéutico en el DNA de células deficientes en ese gene particular. Un área prometedora podrían ser las enfermedades de células sanguíneas que proliferan continuamente. Ideas relacionadas son usar membranes, cubiertas proteicas virales u otras proteínas para transportar fármacos hacia destinos intracelulares immuno-targeted (“magic bullet”).
Desafortunadamente, los virus también pueden ser utilizados como armas diabólicas, capaces de infectar grandes poblaciones. Sin embargo, como otras “double-edged swords” tecnológicas, su beneficio potencial es aún mayor. Nanotechnology combinada con genetic engineering podría conducir a entidades virus-like que podrían acechar y destruir agentes infecciosos letales, células malignas, placas ateroscleróticas que obstruyen vasos sanguíneos, tejido cicatricial que limita la regeneración nerviosa, neurofibrillary tangles asociados con demencia senil, y quizá otras enfermedades. Futuros “nano-doctors” virus-like podrían estar haciendo visitas domiciliarias celulares.
Nanotecnología
La comunicación funcional entre biomoléculas y dispositivos tecnológicos requerirá avances dramáticos en nuestras capacidades para fabricar dispositivos lógicos a partir de materia. El límite alcanzable parece ser componentes computacionales estructurados con precisión a nivel atómico, del orden de 0.1–0.3 nanómetros. La fabricación nanoscale de dispositivos de información capaces de biological interfacing permitiría también la construcción de valiosos robots, sensores y máquinas nanoscale (Schneiker, 1986). Ultimate computing puede no ser sino una sola faceta de un amplio rango de aplicaciones: “nanotechnology”.
Primeros NanoTecnólogos
La American Physical Society celebró su reunión anual de 1959 en el California Institute of Technology. Estaba programado para hablar un hombre que ganaría el premio Nobel de física de 1965 por su trabajo histórico en quantum electrodynamics. Más tarde aún serviría en una Presidential Commission y encontraría la falla en el desastre del Challenger en un período de tiempo inquietantemente breve. En 1959, sin embargo, habló de otro trabajo que puede ser incluso más importante. En su charla titulada There’s Plenty of Room at the Bottom, el físico Richard Feynman (1961) propuso una estrategia simple y directa para construir estructuras útiles con tamaños que bajaran hasta la escala atómica. Sugirió usar machine tools para hacer muchos más conjuntos de machine tools mucho más pequeñas, que a su vez fabricarían muchas veces ese número de otras machine tools aún más pequeñas, y así sucesivamente. En el nivel más bajo, señaló la posibilidad de ensamblar mecánicamente moléculas, un átomo cada vez.
Feynman propuso la construcción de nanomachines, nanotools, computadores diminutos, robots de escala molecular, nuevos materiales y otros productos exóticos que tendrían aplicaciones y beneficios de gran alcance. Considerando la relevancia de nanotechnology para living molecules, Feynman (1961) señaló:
Un sistema biológico puede ser extremadamente pequeño… Consideren la posibilidad de que nosotros también podamos hacer una cosa muy pequeña, que haga lo que queremos: que podamos fabricar un objeto que maniobre a ese nivel.
Las máquinas capaces de manipular directamente la materia en la escala de tamaño submicrónica a nanométrica son llamadas “Feynman Machines” (FMs). Las únicas FMs existentes actualmente conocidas son biológicas; sin embargo, FMs controladas por computador o teleoperadas pueden implementar en el futuro un amplio rango de aplicaciones nanotech.
Siguiendo el ejemplo de Feynman, otros científicos se adentraron en nanotechnology. Von Hippel (1962) predijo posibilidades dramáticas en materials science si podían lograrse nuevos avances en “molecular designing” y “molecular engineering” de materiales. Al señalar la eventual posibilidad de reparar tejido humano (molécula por molécula si fuera necesario) para life extension, Ettinger (1964) sugirió maquinaria de reparación para modificación e interacción con organismos existentes; más tarde propuso el desarrollo de nanorobotics. Ettinger imaginó organismos nanoscale carroñeros y guardianes diseñados para emular y superar las acciones de los glóbulos blancos, que podrían cazar y limpiar invasores hostiles o dañinos (Ettinger, 1972). Tales nanorobots podrían ser útiles para luchar contra AIDS o cáncer, excavar vasos sanguíneos bloqueados, o enderezar neurofibrillary tangles en neuronas seniles.
Shoulders (1965) informó la operación real de micromanipulators capaces de posicionar objetos diminutos con precisión de 10 nm mientras estaban bajo observación directa por field ion microscopy. Ellis (1962) también desarrolló micromanipulators similares (pero mucho mayores) y propuso la construcción de “microteleoperators”: nanodevices controlados remotamente. Drexler (1981, 1986) ha descrito algunas ventajas y peligros hipotéticos de nanotechnology. Capacidades para ensamblaje atom-by-atom y nanoengineering podrían conducir a nuevos materiales y pathways (Feynman, 1961). Uno de tales materiales son las películas de “diamond-like carbon”, que son “transparentes, aislantes, químicamente inertes, tienen alta resistencia dieléctrica, buena adhesión y son relativamente duras” (Aisenberg, 1984). Drexler sugiere que rotary hammers de unas pocas moléculas de longitud podrían usarse para golpear átomos de carbono en grafito justo con el ángulo y la fuerza correctos, y crear películas y fibras ligeras de diamante útiles en una variedad de aplicaciones materiales. Drexler advierte de dos aspectos Frankenstein de nanotechnology: nanosensor surveillance, y replicación no controlada de nanodevices con consumo de recursos de la biosfera. Sin embargo, los desarrollos dramáticos ya existentes en microsensor technology y microelectronics vuelven superfluas las preocupaciones sobre nanosensor surveillance (Schneiker, 1986). Schneiker también descarta las preocupaciones extremas de Drexler sobre el “fin del mundo” por nanoreplicators, señalando que el enfoque de Feynman machine (top-down) hacia nanotechnology, los microreplicators y otros factores obvian el problema. No obstante, como genetic engineering, la energía nuclear, el automóvil y la junk food, nanotechnology bien puede ser una “double edged sword” que exige gestión responsable.
Los beneficios potenciales de nanotechnology alcanzables quizá en una década o dos podrían incluir (Schneiker, 1986):
computadores enormemente más rápidos, mucho más poderosos y numerosos con memorias de capacidad extremadamente grande, materiales compuestos ultrarresistentes, instrumentación científica muy mejorada, robots móviles microscópicos y sistemas automatizados de fabricación flexible, sistemas replicantes, y alcanzar los límites prácticos de miniaturización y el máximo rendimiento en virtualmente cada área de la tecnología.
A pesar de estas elevadas esperanzas y predicciones, nanotechnology y molecular computing han seguido siendo meros sueños. Los obstáculos para su implementación se centran en la ausencia de Feynman machines disponibles. Una solución factible ha sido adelantada por un nanotecnólogo contemporáneo cuyas contribuciones quizá eclipsen finalmente a todas las demás. Conrad Schneiker (1986) puede haber encontrado el puente hacia la nanoscale. Predice que las capacidades manipulativas a nivel atómico encarnadas en una invención de 1981, el scanning tunneling microscope (STM), pueden implementar Feynman machines nanoscale (Hansma y Tersoff, 1987). Schneiker había observado que incluso sin el STM, y antes de su invención, silicon micromechanics combinada con otras tecnologías podría haberse usado. No contento con dos enfoques, también propuso otra ruta basada en augmented machine tool technology desarrollada originalmente para maquinaria de diamante monocristalino. Pero los STMs son mucho más convenientes y mucho menos caros.
Scanning Tunneling Microscopes (STMs)

Figure 80: Figura 10.1: Scanning tunneling microscopy (STM) depende del movimiento ultrapreciso, pero rápido, de una punta afilada de un solo átomo sobre una superficie. El movimiento está controlado por brazos piezocerámicos de dirección X-Y-Z que se mueven fracciones de nanómetros en respuesta a cambios de voltaje. Por Paul Jablonka (Schneiker y Hameroff, 1987).
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica el posicionamiento STM como movimiento piezocerámico X-Y-Z de una punta afilada de un solo átomo sobre un sustrato, manteniendo visible la brecha de tunneling.
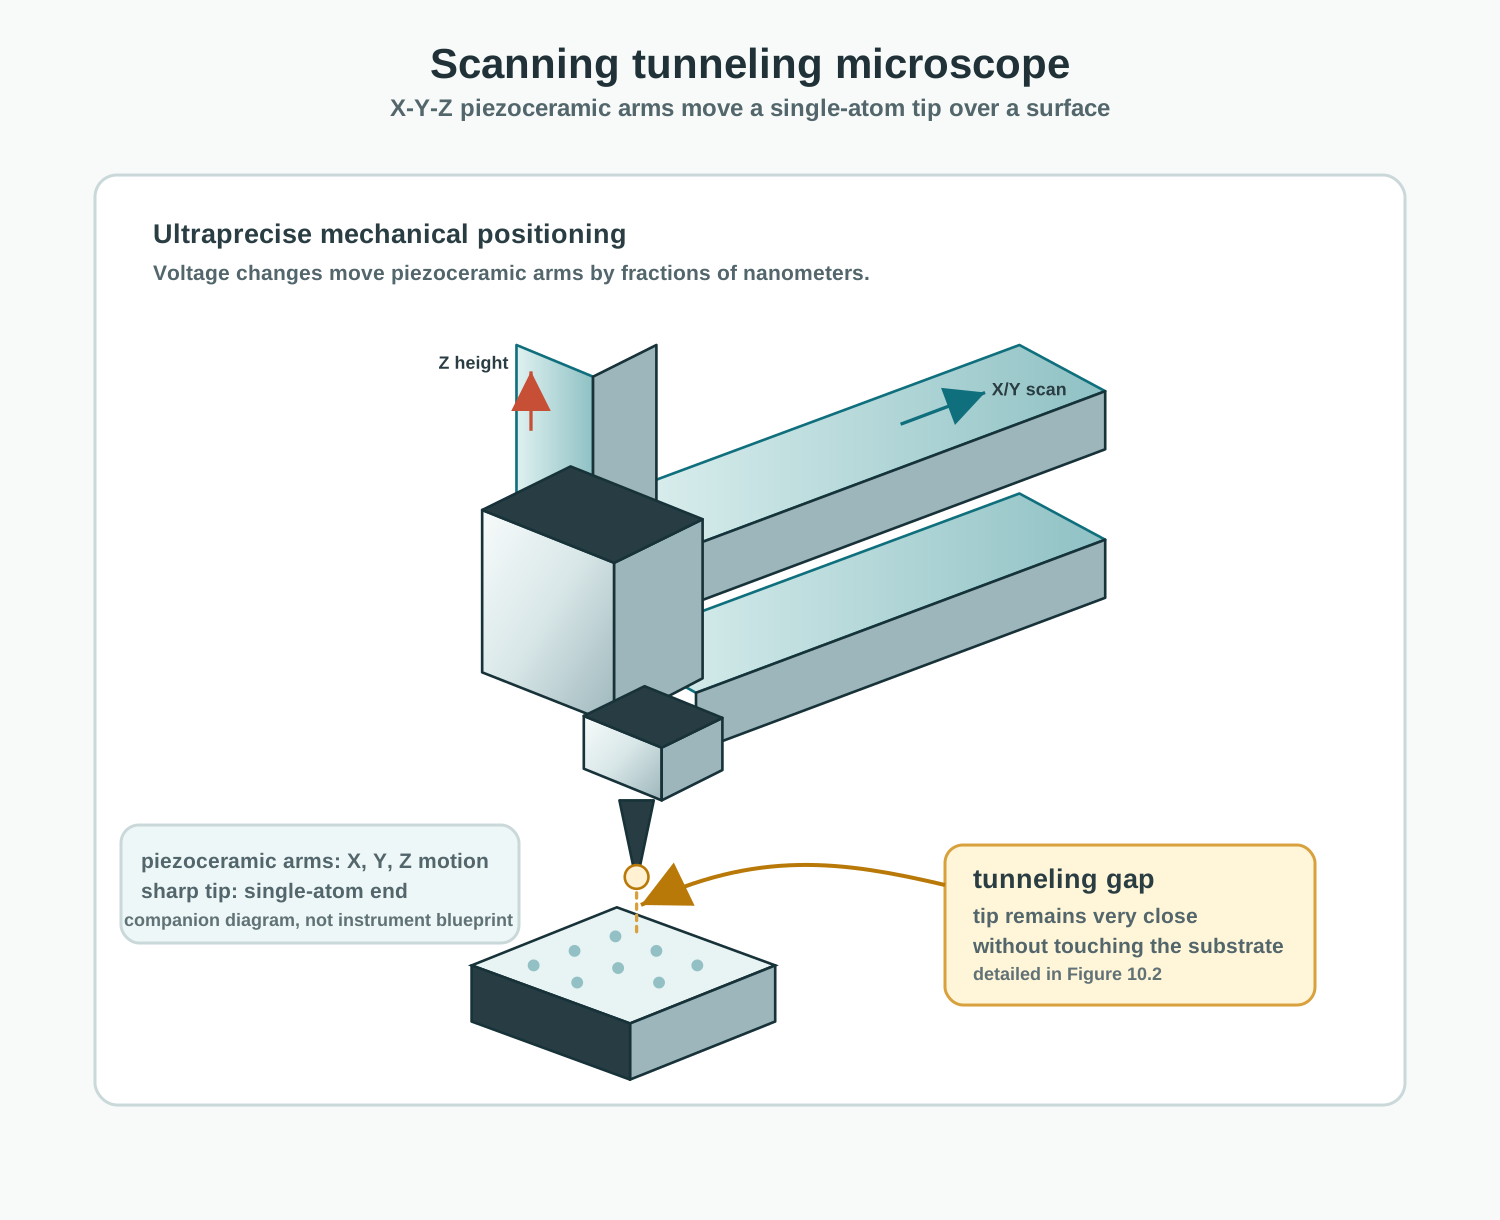

Figure 81: Figura 10.2: Vista nanoscale del electron tunneling del sustrato hacia la punta STM. Por Paul Jablonka (Schneiker y Hameroff, 1987).
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica la brecha STM nanoscale, donde los electrones cruzan desde un sustrato conductor hacia la punta de un solo átomo sin contacto físico.
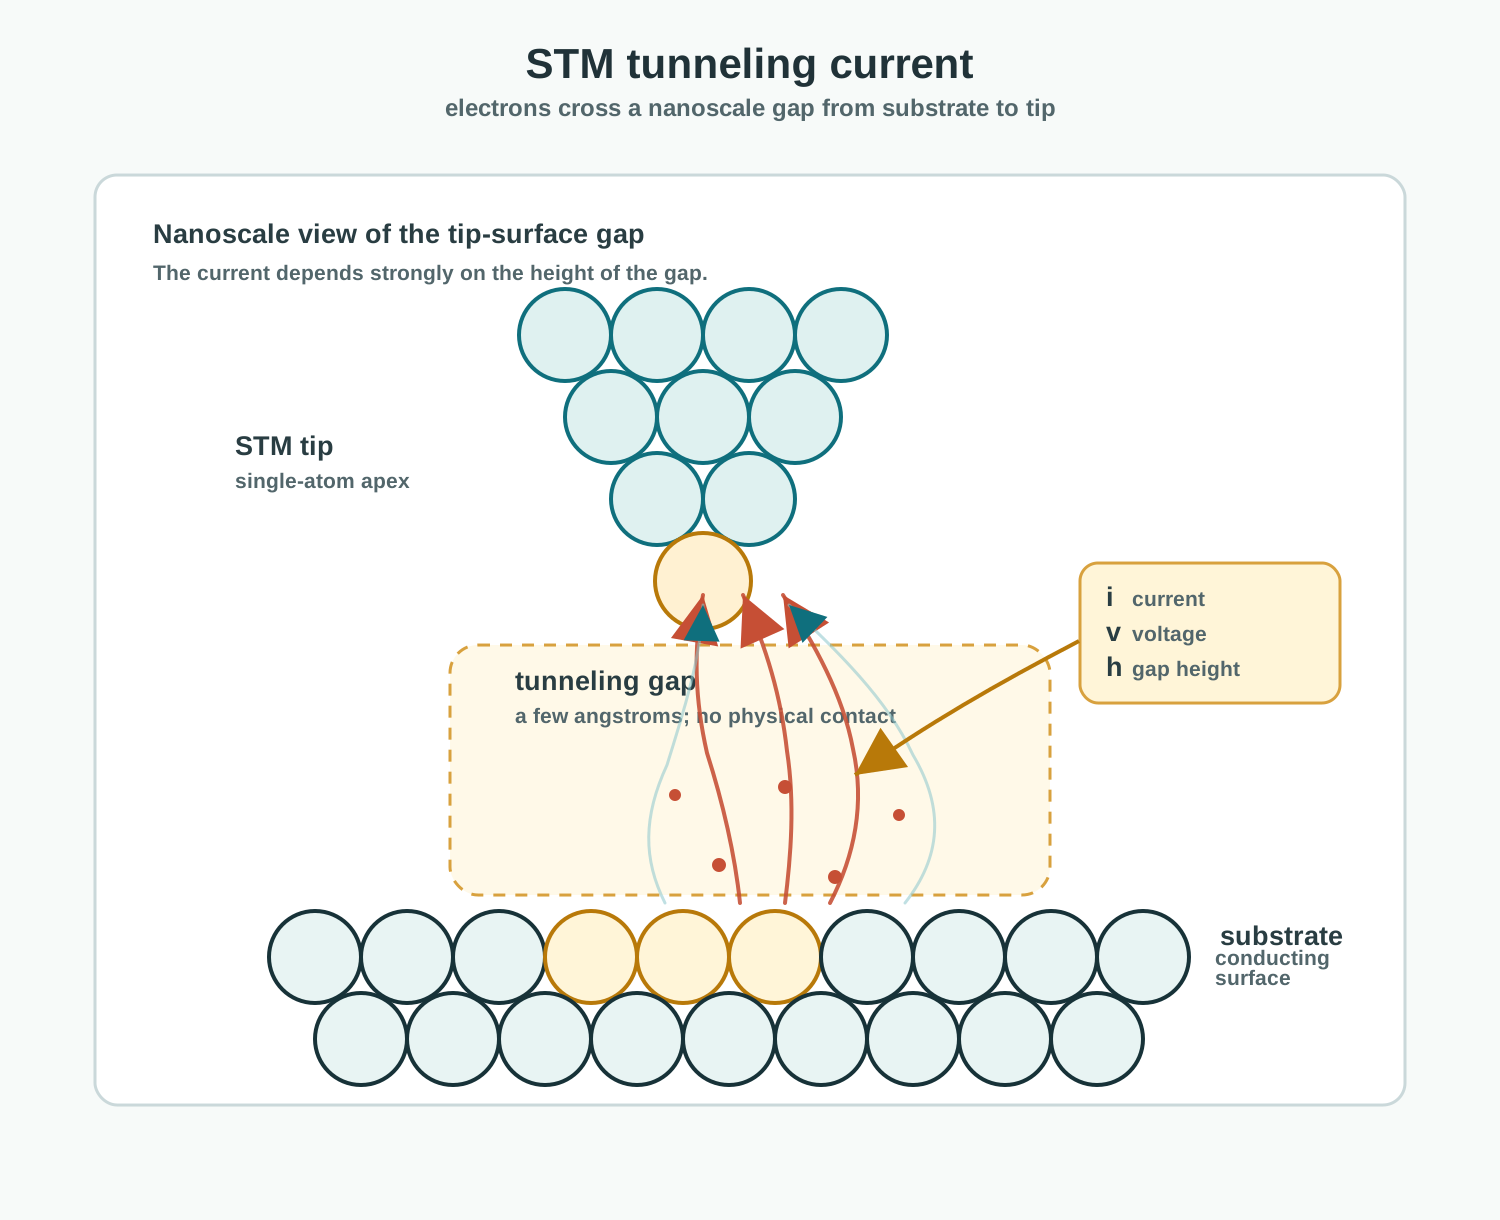
| Número de modo | I | II | III | IV |
|---|---|---|---|---|
| Cantidad constante | \(i,v\) | \(h,v\) | \(h,i\) | \(h,i,v\) |
| Cantidad medida | \(h\) | \(i\) | \(v\) | \(i/v\) |
Tabla 10-1: Modos de operación STM; \(i, v, h\) son tunneling current, voltage y height (distancia de la punta a la superficie de la muestra), respectivamente (Schneiker, 1986).
El Premio Nobel de Física de 1986 fue dividido entre la cornucopia de microconocimiento de 50 años de edad, el electron microscope, y una tecnología totalmente nueva, aún no realizada: scanning tunneling microscopy (STM). La mitad STM del Premio fue otorgada a Gerd Binnig y Heinrich Rohrer de los IBM Zurich Research Laboratories, donde STM fue inventada en 1981 (Binnig, Rohrer, Gerber y Weibel, 1982). El principio usado en STM es extremadamente simple (Figura 10.1). Los materiales piezocerámicos se expanden o encogen distancias extremadamente pequeñas (i.e. angstroms, o décimas de nanómetro) en respuesta a voltaje aplicado. En STM, soportes piezocerámicos escanean una punta conductora ultraafilada (como tungsteno) sobre una superficie conductora o semiconductora (Figura 10.1). Cuando la punta STM está a pocos angstroms de una superficie, un pequeño voltaje aplicado entre ambas da lugar a una corriente de tunneling de electrones (Figuras 10.2, 10.3 y 10.4). La tunneling current depende exponencialmente de la separación punta-sustrato (alrededor de un orden de magnitud por angstrom o décima de nanómetro). Dependiendo del sustrato, las tunneling currents y los voltajes típicos son del orden de nanoamperios y milivoltios, respectivamente. Un servo system usa un feedback control que mantiene constante la separación punta-sustrato modulando el voltaje a través de un sistema de posicionamiento piezoelectric. A medida que la punta escanea la superficie, las variaciones en este voltaje, al ser graficadas, corresponden a la topografía superficial. Se han obtenido mapas detallados de topografía superficial de diversos materiales que muestran átomos individuales como adoquines. Variando y midiendo diferentes combinaciones de tunneling current, voltage y distance, pueden obtenerse distintos tipos de información sobre la superficie explorada.
Los modos básicos de operación de un STM, descritos por Hansma y Tersoff (1987), se resumen en la Tabla 10.1. Aquí i, v y h son la tunneling current, el voltage a través del gap y el tamaño del gap, respectivamente. El Modo I se usa para medir la topografía de la superficie de un metal o semiconductor y es el modo más lento, ya que el servo system electromecánico debe seguir la forma de la superficie durante la operación de scanning.

Figure 82: Figura 10.3: El movimiento multidireccional de la punta STM puede ser controlado por un único piezo-tube scanner. Por Paul Jablonka (Schneiker y Hameroff, 1987).
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica cómo un único piezo-tube scanner puede flexionarse para el movimiento lateral X-Y mientras cambia de longitud para controlar la altura de la punta STM.
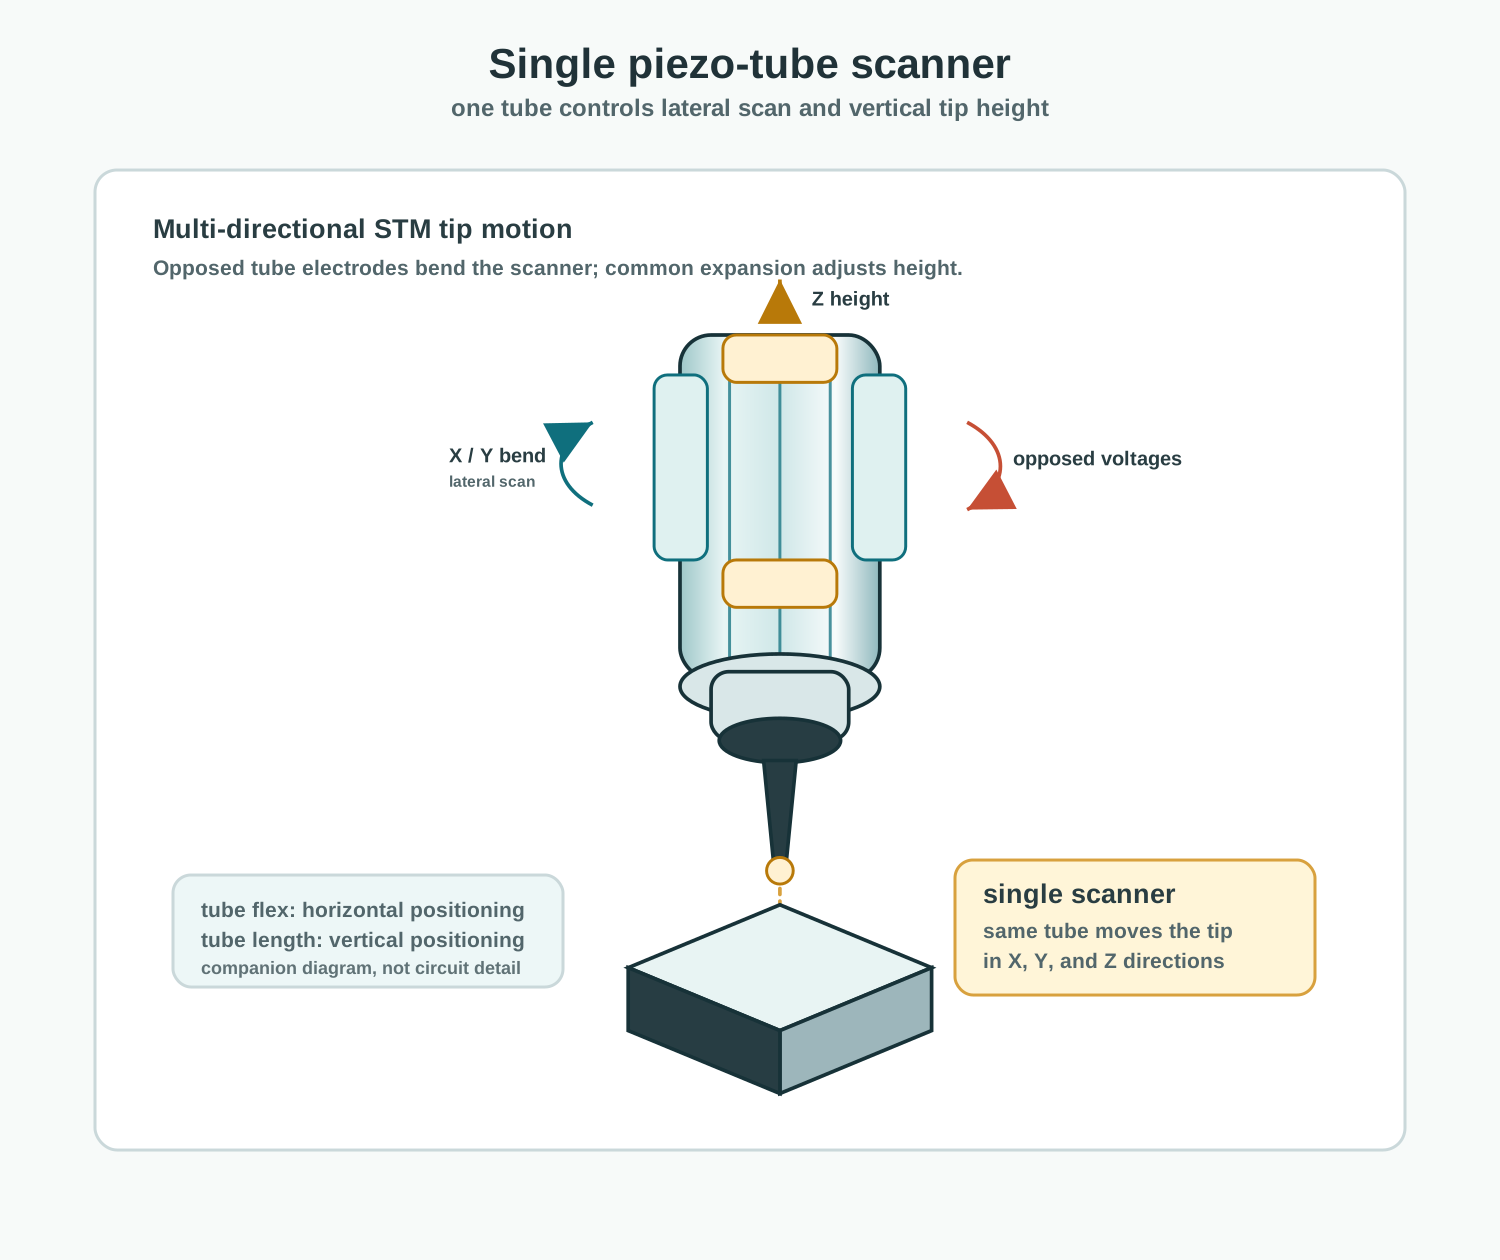

Figure 83: Figura 10.4: Esquema de STM de Tunneling Microscope Corporation (Doug Smith). T = tip, S = sample stage, PZT = piezoceramic tube, CAM = coarse adjust micrometer, FAM = fine adjust micrometer, LRS = lever reduction system. Por Conrad Schneiker (Schneiker, 1986).
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica el esquema instrumental STM expandiendo las etiquetas T, S, PZT, CAM, FAM y LRS en una disposición mecánica legible.
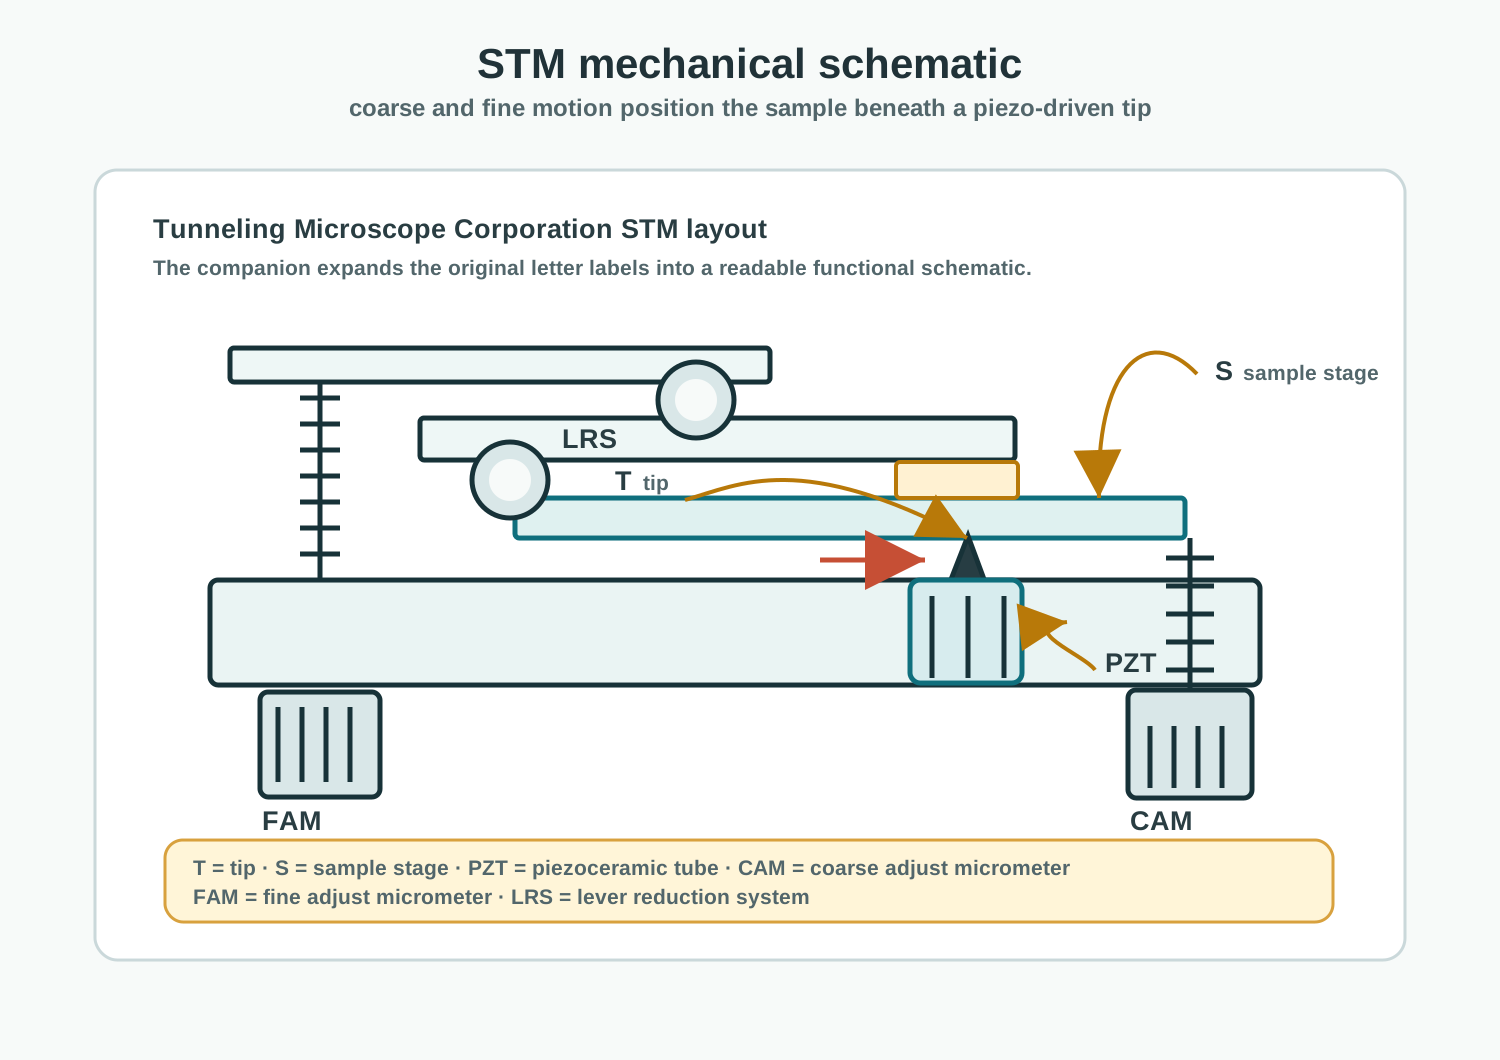
La velocidad de scanning en Modo I está determinada por la respuesta del servo system. Los Modos II y III son más rápidos, ya que la punta mantiene sólo una altura media constante sobre la superficie. La velocidad de scanning en estos modos está determinada únicamente por la respuesta del preamplifier. El Modo IV mide la joint density of states que, para una punta pequeña, es un mapa de la distribución local de estados electrónicos del sustrato. Para este modo, se “dithers” el bias voltage punta-sustrato con una pequeña señal de corriente alterna y se monitoriza i/v. Usando este modo, Smith y Quate (1986) han hecho tunneling spectroscopy resuelta espacialmente y observado charge density waves. STM puede así usarse para identificar los elementos que componen átomos específicos y para monitorizar molecular dynamics (Figura 10.5).

Figure 84: Figura 10.5: STM scan con eje t que muestra la evolución de un nanosystem a lo largo del tiempo. Con permiso de Ritter, Behm, Potschke y Wintterlin (1987), cortesía de Eckhart Ritter.
Adaptabilidad y versatilidad han sido mostradas por STMs operados en aire, water, solución ionic, aceite y high vacuum (Drake, Sonnenfeld, Schneir, Hansma, Solugh y Coleman, 1986; Miranda, Garcia, Baro, Garcia, Pena y Rohrer, 1985). Su velocidad de scanning puede empujarse hacia el dominio de real-time imaging (Bryant, Smith y Quate, 1986). Una técnica para maquinar puntas STM se basa en un proceso simple de ion milling que puede generar puntas ultraafiladas con extremos de un solo átomo; una técnica similar puede generar filos de cuchillo ultraafilados y otras formas de nanotool también (Dietrich, 1984). Dieter Pohl (1987), de IBM-Zurich, considera STM un ejemplo de un grupo de tecnologías microscópicas “stylus”. Se están desarrollando puntas como thermocouples de dos metales diferentes sensibles a cambios extremadamente pequeños de calor, y pipetas huecas capaces de administrar o detectar moléculas individuales en solución. Pohl se refiere a estas capacidades STM como “tasting and smelling” molecular. Otra función relacionada con STM puede “touch and feel”. En “atomic force microscopy,” una palanca nanoscale posicionada por piezo-technology STM es deflectada por contacto y/o movimiento de átomos, moléculas o sus iones circundantes. La deflexión de la palanca inducida por fuerza de Van der Waals es monitorizada por una punta STM o por interferometry. Binnig, Quate y Gerber (1986) proponen medir fuerzas tan pequeñas como 10-18 newtons usando atomic force microscopy. La forma mecánica y la dinámica estructural pueden explorarse sin hacer tunneling a través del material de la muestra usando este modo, lo que puede ser particularmente importante en el estudio de biomoléculas.

Figure 85: Figura 10.6: Formación de nano-aperturas ópticas near-field. Por Conrad Schneiker (Schneiker, 1986).
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica las dos técnicas de formación de nano-aperturas near-field y expande las abreviaturas L, D, TS, TR, X, CS y T.
Otro spinoff STM puede conducir a “nanovision”. La resolución de “nearfield microscopy” depende del diámetro de la apertura a través de la cual pasa la luz reflejada. Binnig (1985) describió cómo usar un STM para hacer agujeros de 20 nm en películas metálicas opacas que, al usarse en microscopios ópticos de scanning, se vuelven capaces de resolver rasgos mucho menores que la longitud de onda de la luz. En general, un cono de luz no puede enfocarse en un punto significativamente menor que la wavelength de la luz. Sin embargo, luz que pasa a través de una apertura muchas veces menor en diámetro que su wavelength resulta en un haz estrecho de luz que puede ser escaneado mecánicamente cerca de una muestra examinada. La tecnología STM es capaz de crear nanoapertures, y también el mecanismo de scanning requerido para formar imagen de un área (Figura 10.6). Pohl, Denk y Lanz (1984) describieron su “optical stethoscope”, en el cual “detalles de tamaño 25-nm pueden reconocerse usando radiación de 488-nm”. Una ventaja significativa del concepto de optical stethoscope es “que permite investigar muestras de manera no destructiva en sus entornos nativos” (Lewis, Isaacson, Harootunian y Muray, 1984). Betzig y colegas (1986) concluyen que esta tecnología será “capaz de seguir la evolución temporal de ensamblajes macromoleculares en células vivas … para proporcionar tanto información cinética como alta resolución espacial”. Scanning nanoapertures podrían usar también ultraviolet, X-ray, gamma ray, synchrotron, o haces de partículas para “snoop” en la nanoscale si se encuentran materiales y configuraciones adecuados (Schneiker, 1986).
El breakthrough de Schneiker fue darse cuenta de que las puntas STM pueden usarse como dedos robóticos ultraminiatura, ultraprecisos, que pueden tanto “ver” como usarse para manipular directamente átomos y moléculas individuales en las líneas sugeridas por Feynman. El proceso de scaling down propuesto por Feynman (máquinas que construyen máquinas más pequeñas, y así sucesivamente) puede reducirse a un solo paso. Según el concepto de Schneiker, los STMs pueden enlazarse directamente con la nanoscale para implementar, construir y evaluar Feynman machines y otras nanotechnologies. Señala que muchas biomoléculas naturales como enzymes, t-RNAs, antibodies, cytoskeleton, y muchos compuestos sintéticos proporcionan una amplia variedad de potenciales finger tips para realizar la visión de Feynman de la manipulación molecular. Ya se ha descrito nanomanipulation rudimentaria. Ringger y colegas (1985) han descrito STM nanolithography: grabado superficial a escala atómica. Becker, Golovchenko y Swartzentruber (1987), de Bell Labs, han informado una modificación de un solo átomo de la superficie de un cristal de germanio casi perfecto mediante la punta de tungsteno de un STM. Concluyen que la manipulación de estructuras de tamaño atómico sobre superficies conducirá a “nuevas fronteras en memorias de alta densidad, nuevos dispositivos cuyas propiedades eléctricas están dominadas por quantum-size effects, y modificación de moléculas individuales self replicating”, apoyando las predicciones anteriores de Schneiker. En sus primeros pocos años, STM ha obtenido imágenes de átomos individuales, explorado fuerzas atómicas, manipulado átomos y ganado un premio Nobel. Eventualmente, los STMs y sus spinoffs pueden permitir a investigadores alterar y comunicarse con genes, virus, proteínas, ensamblajes citoesqueléticos, y quizá conciencia biomolecular.

Figure 86: Figura 10.7: Nanotechnology workstation se imagina como una combinación sinérgica de múltiples puntas STM montadas en un optical microscope. Por Paul Jablonka (Schneiker y Hameroff, 1987).
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica la nanotechnology workstation imaginada como combinación sinérgica de microscopía óptica, múltiples puntas STM y manipulación de muestras nanoscale.

Figure 87: Figura 10.8: Geometría de puntas múltiples para STM probing de sistemas nanoscale. Por Conrad Schneiker (Schneiker, 1986).
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica la geometría STM de múltiples puntas: cuatro probes oblicuos dispuestos simétricamente alrededor de una región de muestra nanoscale compartida.
Schneiker y Hameroff (1987) han propuesto un sistema integrado de STM y otras tecnologías para aprovechar mejor las capacidades STM. La “nanotechnology workstation” (Figuras 10.7 y 10.9) propone combinar múltiples puntas STM, optical microscopy, nanoapertures y fiber optic waveguides en un intento esperanzado de synergism. Por ejemplo, el STM es extremadamente “near-sighted”; puede tener dificultad para encontrar su objetivo (“una aguja en un pajar”). Si se integra en un microscopio óptico de alta potencia, el microscopio puede actuar como coarse approach mode para llevar la punta STM al área deseada. Desde allí, el STM puede funcionar como modo “cursor” para el microscopio: capaz de expandir la vista de átomos y moléculas, y manipularlos. En una configuración de la nanotech workstation, cuatro STMs se colocan simétricamente alrededor de un STM central y cada uno forma un ángulo de 45 grados con el plano de la muestra; más tarde pueden aumentarse con interferómetros de fibra óptica para determinación precisa de coordenadas espaciales y control de movimiento (Figura 10.8). El STM central puede usarse para high speed scanning, mientras que los STMs periféricos se usan como oblique STM scanners, nanoaperture scanners, electrodos, “dedos” mecánicos o antenas de frecuencia óptica. Además, otros cuatro mini-brazos ajustados por micrómetro pueden llevar fibras ópticas horizontales: dos para iluminación general y dos para interfaces experimentales.
Objetivos de microscopio óptico reflector pueden posicionarse de modo que el eje óptico sea perpendicular al plano del par opuesto de STMs, y el foco esté donde sus puntas se encontrarían cuando estuvieran completamente extendidas. La óptica de estos microscopios les permitiría mirar alrededor del sistema de iluminación de fibra óptica montado sobre el eje frontal de cada microscopio. El sistema óptico sería achromatic, y capaz de trabajar desde el infrarrojo lejano hasta el ultravioleta, lo que debería conducir a mayor resolución óptica. Un recubrimiento fluorescente para puntas STM (excluyendo los últimos pocos nm) puede ayudar a visualizar su ubicación. El sistema final de imaging debería consistir en detectores solid state cuya salida pueda mostrarse en monitores color de alta resolución: modos STM, microscopio óptico, nanoaperture “nanovision”, etc. (Figuras 10.9 y 10.10).

Figure 88: Figura 10.9: Displays gráficos, monitores y módulo de control para nanotechnology workstation. Por Paul Jablonka (Schneiker y Hameroff, 1987).
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica el concepto de displays de workstation como múltiples monitores para señales STM, imaging óptico, vistas nanoaperture, spectroscopy y control.

Figure 89: Figura 10.10: Vista de cuatro puntas STM aproximándose a nanotechnology workstation. Por Paul Jablonka (Schneiker y Hameroff, 1987).
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica la vista en perspectiva de cuatro puntas STM convergiendo hacia una región de muestra compartida de la workstation.

Figure 90: Figura 10.11: Movimiento y construcción moleculares con un STM. Por Conrad Schneiker (Schneiker, 1986).
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica las operaciones STM/Feynman-machine propuestas: mover adatoms o fragmentos moleculares, unir o escindir enlaces y controlar movimiento en un volumen de trabajo nanoscale.
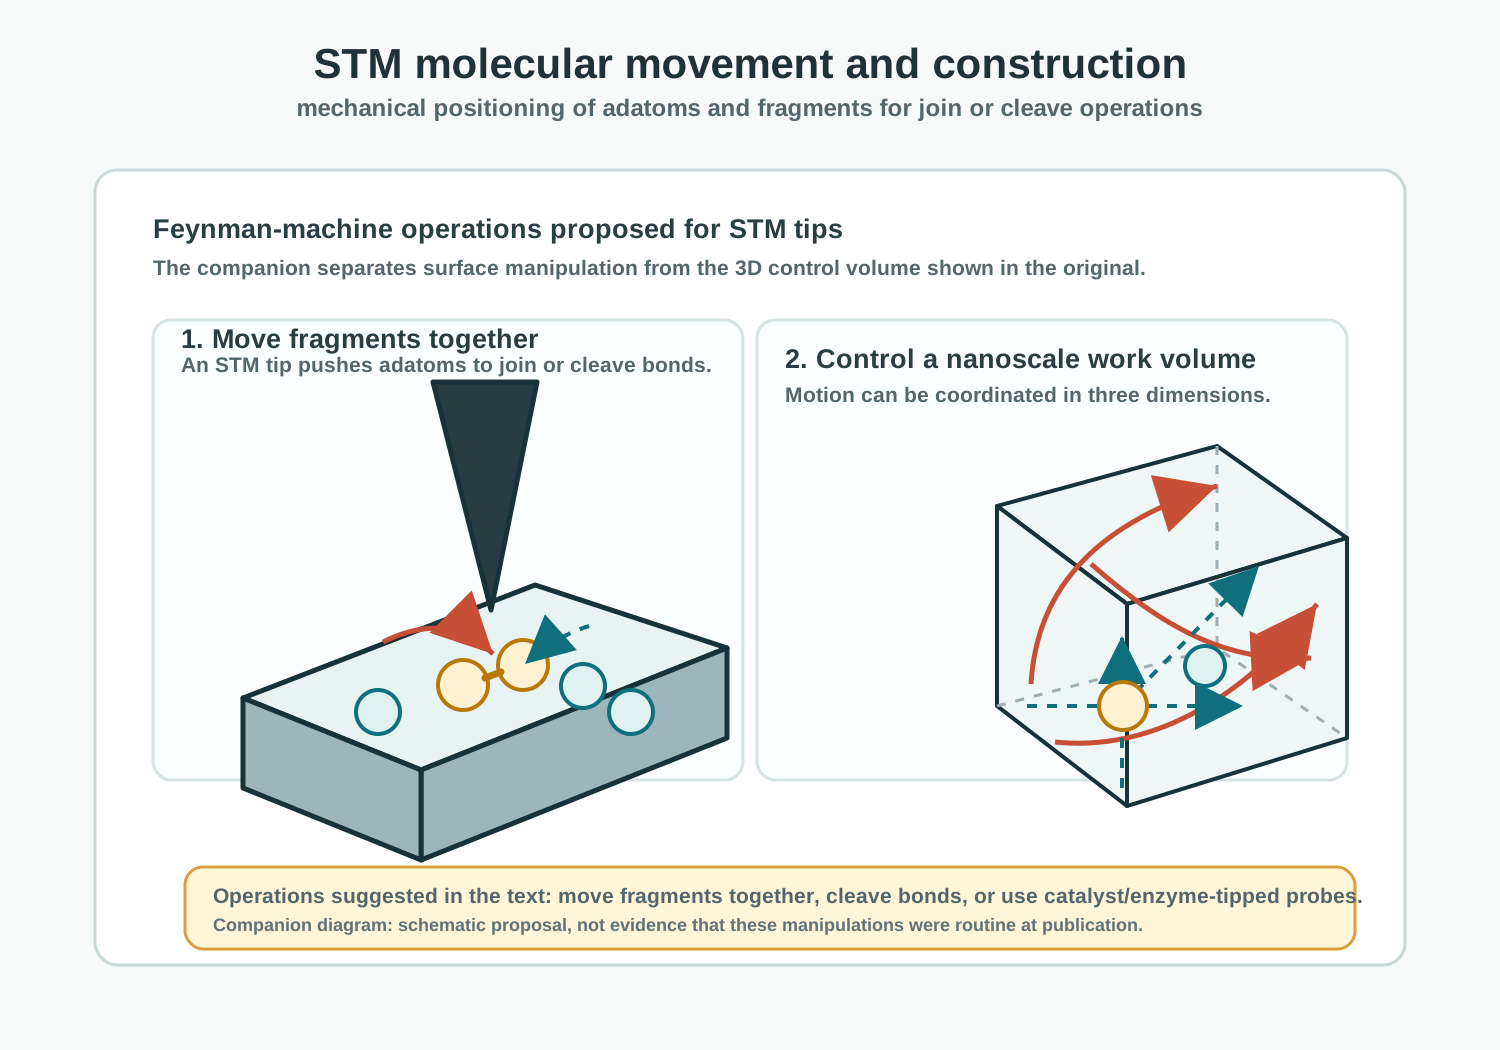
Un sistema semejante a la STM nanotech workstation puede observar y manipular dinámicamente materiales y sistemas nanoscale, capacidades consistentes con las nociones de Feynman para máquinas moleculares.
STM/Feynman Machines (FMs)
Los STMs utilizados para implementar las ideas de Feynman relativas a fabricación y maquinado a nivel atómico y molecular (Feynman machines: “FMs”) han sido denominados por Schneiker “STM/FMs”.
Feynman había señalado la posibilidad de realizar síntesis química mecánicamente. En un esfuerzo por avanzar en esta dirección, Schneiker (1986) propuso los siguientes experimentos STM (Figura 10.11). 1) Usar una punta STM para juntar un par de adatoms (o fragmentos moleculares) sobre un sustrato (o punta STM) a fin de inducir enlace químico. 2) Usar una punta STM para escindir un enlace químico de una molécula adsorbida sobre un sustrato. 3) Usar una enzyme o catalyst sintético adsorbido sobre una punta STM para repetir los experimentos (1) y (2).

Figure 91: Figura 10.12: Nanomilling/nanolithography. Por Conrad Schneiker (Schneiker, 1986).
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica el esquema de nanomilling/nanolithography como una punta STM/FM conformada que corta un canal a través de capas cover, intermediate y conducting substrate.
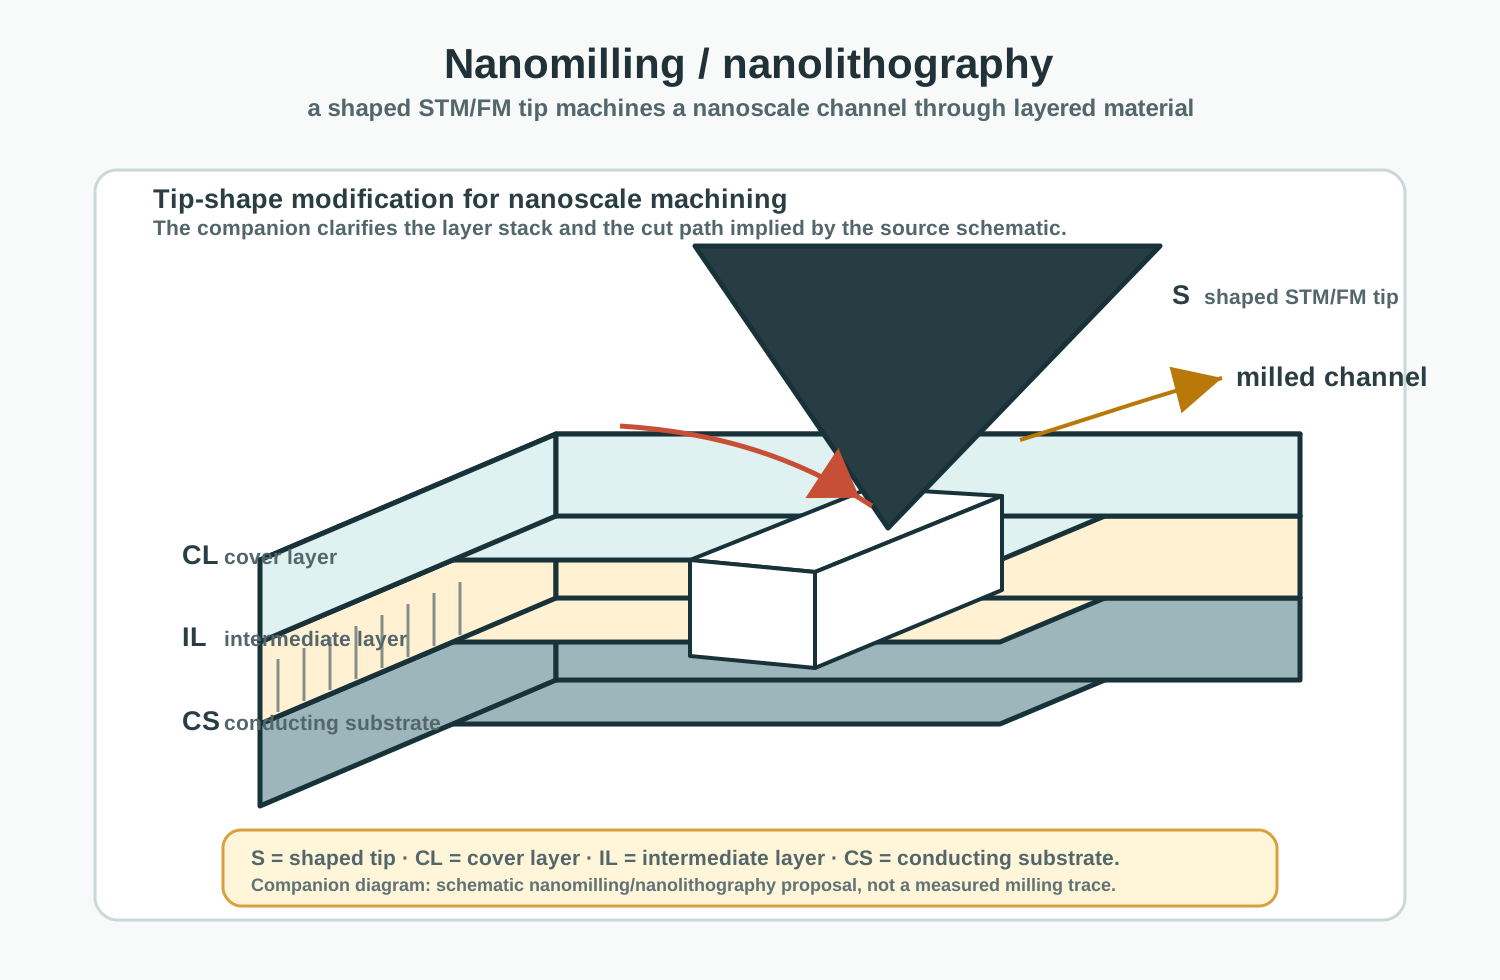
Quizá el primer paso en propuestas tan ambiciosas ya se ha logrado. El grupo de Bell Labs (Becker, Golovchenko y Swartzentruber, 1987) usó una punta STM para colocar un solo átomo sobre una superficie de germanio. Otras modificaciones y aplicaciones STM/FM elucidated por Schneiker (1986) incluyen: 1) modificaciones de forma de punta (bisturí, cincel, cilíndrica y otras configuraciones) para operaciones de scanning, scribing, etching, milling y polishing, o para interfaces eléctricas, síntesis electroquímica o maquinado; 2) estructuras adheridas a la punta (enzymes, catalysts sintéticos, shape selective crown ethers, transducer molecules, etc.) para reconocimiento molecular con operaciones de pick, place, join y cleave selectivas por especie (y quizá asistidas electrostática o electromagnéticamente), o sensing nanoambiental; 3) configuraciones de puntas múltiples (configuraciones paralelas o radiales) para usarse como tweezers, jigs y arcs ultraminiatura, o electrodos de interfaz, o para generar campos eléctricos de rotación rápida; y 4) modificación de materiales de punta (aislantes, semiconductores, ferroelectric o ferromagnetic) para modulación longitudinal, electrostática, electromagnetic, magnética, acústica kHz-GHz transversal o torsional, y óptica, en configuraciones mono- o multipolares (Figuras 10.12 y 10.13).

Figure 92: Figura 10.13: Vista nanoscale de STM nanomilling/nanolithography. Por Paul Jablonka (Schneiker y Hameroff, 1987).
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica la vista nanoscale de STM nanomilling/nanolithography como una punta STM/FM conformada que desplaza átomos para abrir un canal pautado.
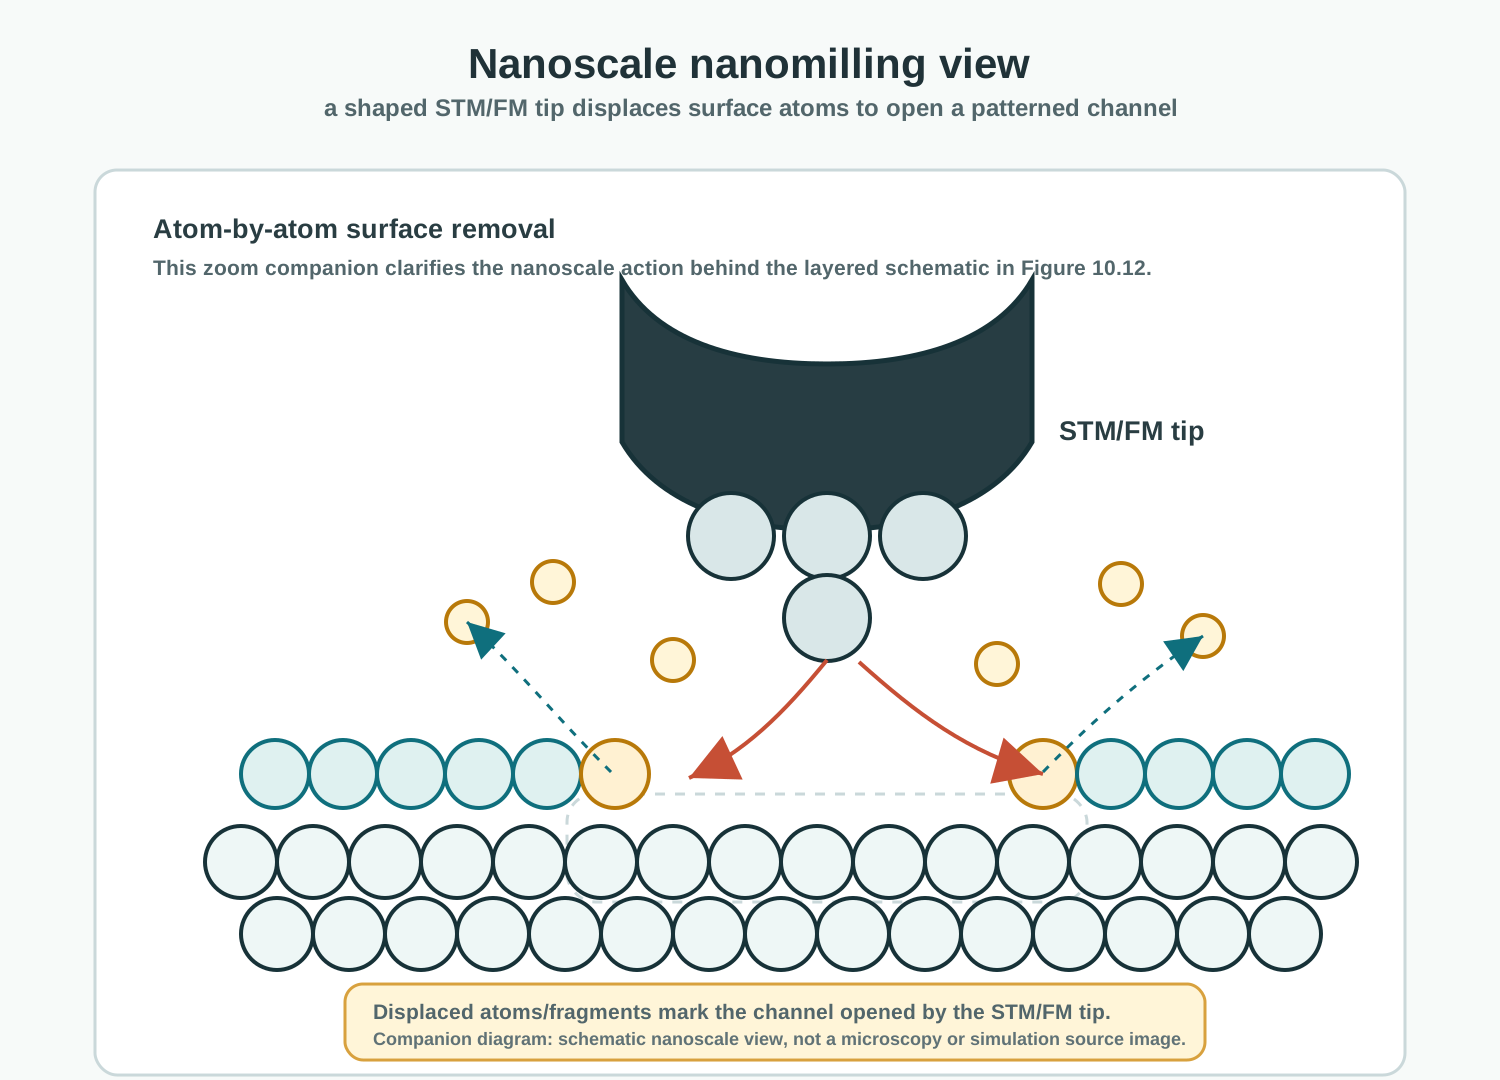
Además de las modificaciones anteriores, los STM/FMs o sus puntas podrían aumentarse con una amplia variedad de sensores y transducers; el atomic force microscope de Binnig, Quate y Gerber (1986) es un ejemplo excelente. El aumento de STM/FMs con interferómetros de fibra óptica (o técnicas comparables) podría proporcionar calibración realtime extremadamente precisa del posicionamiento absoluto y relativo de puntas STM/FM, superando así los problemas de ruido eléctrico, creep, ageing e hysteresis inherentes a los sistemas actuales de piezo-positioning STM. La técnica dada en Dietrich, Lanz y Moore (1984) para fabricar puntas con perfiles cónicos uniformes de punta a base sería útil para STM/FMs que usan puntas múltiples estrechamente espaciadas. Schneiker conjetura que conjuntos de STM/FMs debidamente configurados e instrumentados pueden operar como machine tools con lead screws y bearings efectivamente perfectos. Los STM/FMs también pueden usarse como proximity detectors de resolución subatómica y máquinas de medición de coordenadas sobre superficies conductoras (AFMs se usarían para aislantes) para monitorizar operaciones de nanomachining casi perfectamente superprecisas (limitadas por la granulosidad de los átomos y otras consideraciones de materials science). Así, muchas estructuras y mecanismos mecánicos macroscópicos útiles pueden duplicarse a nivel submicrónico, y muchos de estos mecanismos pueden no requerir lubricación debido al escalamiento force/area y a una disipación de calor muy rápida (Feynman, 1961). Para mecanismos aún más pequeños, sería necesario pasar al enfoque de química mecánica de Feynman para construir dispositivos moleculares mediante una serie de operaciones de unión y recorte. Muchas moléculas sintéticas existentes actualmente podrían utilizarse como building blocks; el sistema molecular de gear and bearing de Yamamoto (1985) proporciona un ejemplo interesante y se piensa que es capaz de rotar alrededor de mil millones de veces por segundo.
Los STM/FMs pueden ejecutar muchos movimientos mecánicos complejos para impulsar tales nanomechanisms (Schneiker, 1986). Por ejemplo, puede realizarse una serie esencialmente infinita de movimientos tridimensionales de punta (líneas rectas simples, círculos, espirales, hélices, etc.) a velocidades actualmente limitadas principalmente por resonancias mecánicas en el sistema de accionamiento de los STMs actuales, otra motivación para miniaturizarlos considerablemente. Así, sería posible, por ejemplo, girar una manivela mecánica de escala molecular (digamos de 2 nm de diámetro) a miles de revoluciones por minuto. De manera similar a flagella y cilia de organismos unicelulares, éstas podrían usarse para propulsión de robots nanoscale y otros usos.
Las capacidades de los STM/FMs hasta ahora no han existido; por lo tanto, las aplicaciones pueden abundar en el futuro cercano a medida que científicos de muchas disciplinas tomen conciencia de esta tecnología versátil y económica.
Concurso Micro/Nano STM
La propuesta original de Feynman (1961) para máquinas de escala molecular y atómica incluía premios y competición para “interesar a los chicos en este campo”. Ofreció US$1000 a la primera persona que a) redujera la información de la página de un libro a un área 1/25.000 menor en escala lineal para ser leída por un electron microscope, y b) construyera un motor eléctrico que tuviera sólo 1/64 de pulgada cúbica.
El último premio fue entregado por el Prof. Feynman el 28 de noviembre de 1960 a William McLellan, quien construyó un motor eléctrico del tamaño de una mota de polvo (Gilbert, 1961). El primer premio fue otorgado en 1985 a Tom Newman, estudiante de posgrado de Stanford que usó electron beam lithography para reducir una página de A Tale of Two Cities a 5.9 x 5.9 micrómetros y ampliarla de nuevo usando un electron microscope.
Motivado por el deseo de acelerar el desarrollo de tecnología derivada de STM como puente hacia Feynman Machines más poderosas, Schneiker (1985, 1986) ha anunciado una serie de desafíos de construcción y premios (Hansma y Tersoff, 1987). Los desafíos consisten en construir, operar y demostrar públicamente STMs (incluida la parte activa/móvil de los sistemas mecánicos de posicionamiento y scanning) que puedan controlarse desde el exterior, y que (sin contar lead-in wires, fibra óptica, etc.) sean de los siguientes tamaños o menores: (1 mm)3, (100 µm)3, (10 µm)3, (1 µm)3, (100 nm)3 y (10 nm)3. La capacidad de imaging debería ser comparable a la indicada por la imagen en la página 482, vol. 56 de la revista de física Helvetica Physica Acta, 1983. Las dos pruebas de imaging serán: a) formar imagen de una superficie cuadrada de graphite pyrolytic highly ordered de (10 nm)2, y b) formar imagen de toda la superficie cónica de otra punta STM de tungsteno atómicamente afilada (no rotatoria), que forme un cono de 60° o menos, extendiéndose 2 nm desde esa punta. Deben hacerse scans sucesivos para demostrar que el dispositivo no modifica estos ítems de prueba. Un par adicional de desafíos son 1: usar un STM/FM para a) sintetizar mecánicamente 10 moléculas de cualquiera de las moléculas esféricas propuestas C60 o C180 conocidas como “Buckminster Fullerene” (Schneiker, 1986), y b) demostrar concluyentemente que la síntesis fue exitosa; y 2: usar un STM/FM para a) sintetizar mecánicamente una capa de graphite de 10 nm x 10 nm, y b) demostrar concluyentemente que la síntesis fue exitosa. Los premios actuales ofrecidos, uno por categoría, son US$1000, con un máximo de un premio pagado por año. Los ganadores potenciales deberían contactar al autor. Se solicitan patrocinadores y premios adicionales. Y como Feynman aconsejó originalmente:
… have some fun! Tengamos una competición entre laboratorios.
STM/FMs y Molecular Computing
La capacidad de usar STM/FMs multi-punta para mechanical chemistry y como interfaces eléctricas podría resolver dos problemas formidables en el desarrollo de dispositivos de molecular computing tal como los imaginó Carter (1983): 1) la síntesis de dispositivos prototipo y 2) hacer conexiones eléctricas individuales, fiables, hacia ellos para pruebas.
Arrays de electrodos nanoscale o puntas STM que comprenden ensamblajes de escala submicrónica pueden ser extremadamente útiles si su posición puede regularse de manera precisa y rápida. Schneiker (1987) ha sugerido que la utilización óptima de materiales piezo-ceramic puede usarse para parallel scanning de arrays nanoscale. El “biomorph-bender” piezo-ceramic descrito por Dieter Pohl y colegas (1986) puede usarse para manipular tales arrays para lectura y escritura paralela rápidas de chips de arrays nanoscale para almacenamiento masivo y procesamiento de información (Figuras 10.14 y 10.15, Schneiker, 1987).
Los STM/FMs podrían usarse para operaciones más convencionales de trimming y reparación ultraprecisos de circuitos o componentes. Los sistemas de posicionamiento extremadamente precisos de STM/FM podrían explotarse para sistemas de wirebonding de escala mínima. Otras aplicaciones derivadas de STM podrían incluir inspección de, e interfacing eléctrico y mecánico con, dispositivos superlattice quantum well o dispositivos “quantum dot” en la escala de nanómetros cúbicos. En 1959, Feynman señaló que usando su estrategia debería ser posible finalmente fabricar lo que ahora se llaman superlattices, y que probablemente tendrían algunas propiedades muy interesantes (Feynman, 1961). Aunque los STM/FMs quizá no se usen finalmente para producir en masa tales dispositivos, podrían usarse para construir prototipos, ayudar a caracterizar dispositivos de prueba y optimizarlos. Sputtering inducido por punta STM (Binnig, Gerber, Rohrer y Weibel, 1985) podría usarse para etch o mill conductores ultrafinos para tales dispositivos. La disponibilidad incluso de pequeños números de dispositivos de rendimiento extremadamente alto tendría gran valor instrumental como interfaces y transducers (Figuras 10.16 a 10.19).
Componentes computacionales consistentes cada uno en unos pocos átomos podrían usar niveles de energía cuantizados o spin effects (Feynman, 1960); si tales dispositivos pudieran diseñarse y ensamblarse, podrían ser miles de veces más rápidos que los dispositivos convencionales usados en los computadores actuales. Otros aspectos de quantum computers se discuten en Maddox (1985), y otras referencias interesantes pueden encontrarse en Schneiker (1986). Interconectar eficientemente estos y otros dispositivos semejantes con el mundo exterior de una manera que pueda utilizar efectivamente su potencial computing bandwidth presenta problemas interesantes en clocking, input/output y otras áreas. Schneiker sostiene que la tecnología optical electronics sugerida por Javan (1985, 1986) podría ser útil en éstas y otras nanoapplications también. Usando micro- y nano-antennas acopladas a radiación láser, campos eléctricos intensos, localizados y de alta frecuencia modulados por la intensidad, phase y polarization del haz láser podrían controlar y alimentar arrays de dispositivos nanoscale construidos por STM/FM. Esta misma idea podría usarse para controlar, alimentar y comunicarse con enjambres de nanorobots móviles.

Figure 93: Figura 10.14: Almacenamiento masivo computacional para lectura y escritura paralela rápidas de chips recubiertos de “nano-film”. En última instancia, los electrodos podrían reemplazarse con micro-STMs (Figura 10.15) para acceder a dispositivos moleculares individuales. Un sistema simple podría configurarse también para nanolithography altamente paralela. Por Conrad Schneiker (Schneiker, 1986).
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica el concepto de almacenamiento masivo nano-film como acceso paralelo read/write sobre chips recubiertos, con posicionamiento piezo-bimorph y capas de memoria en corte.
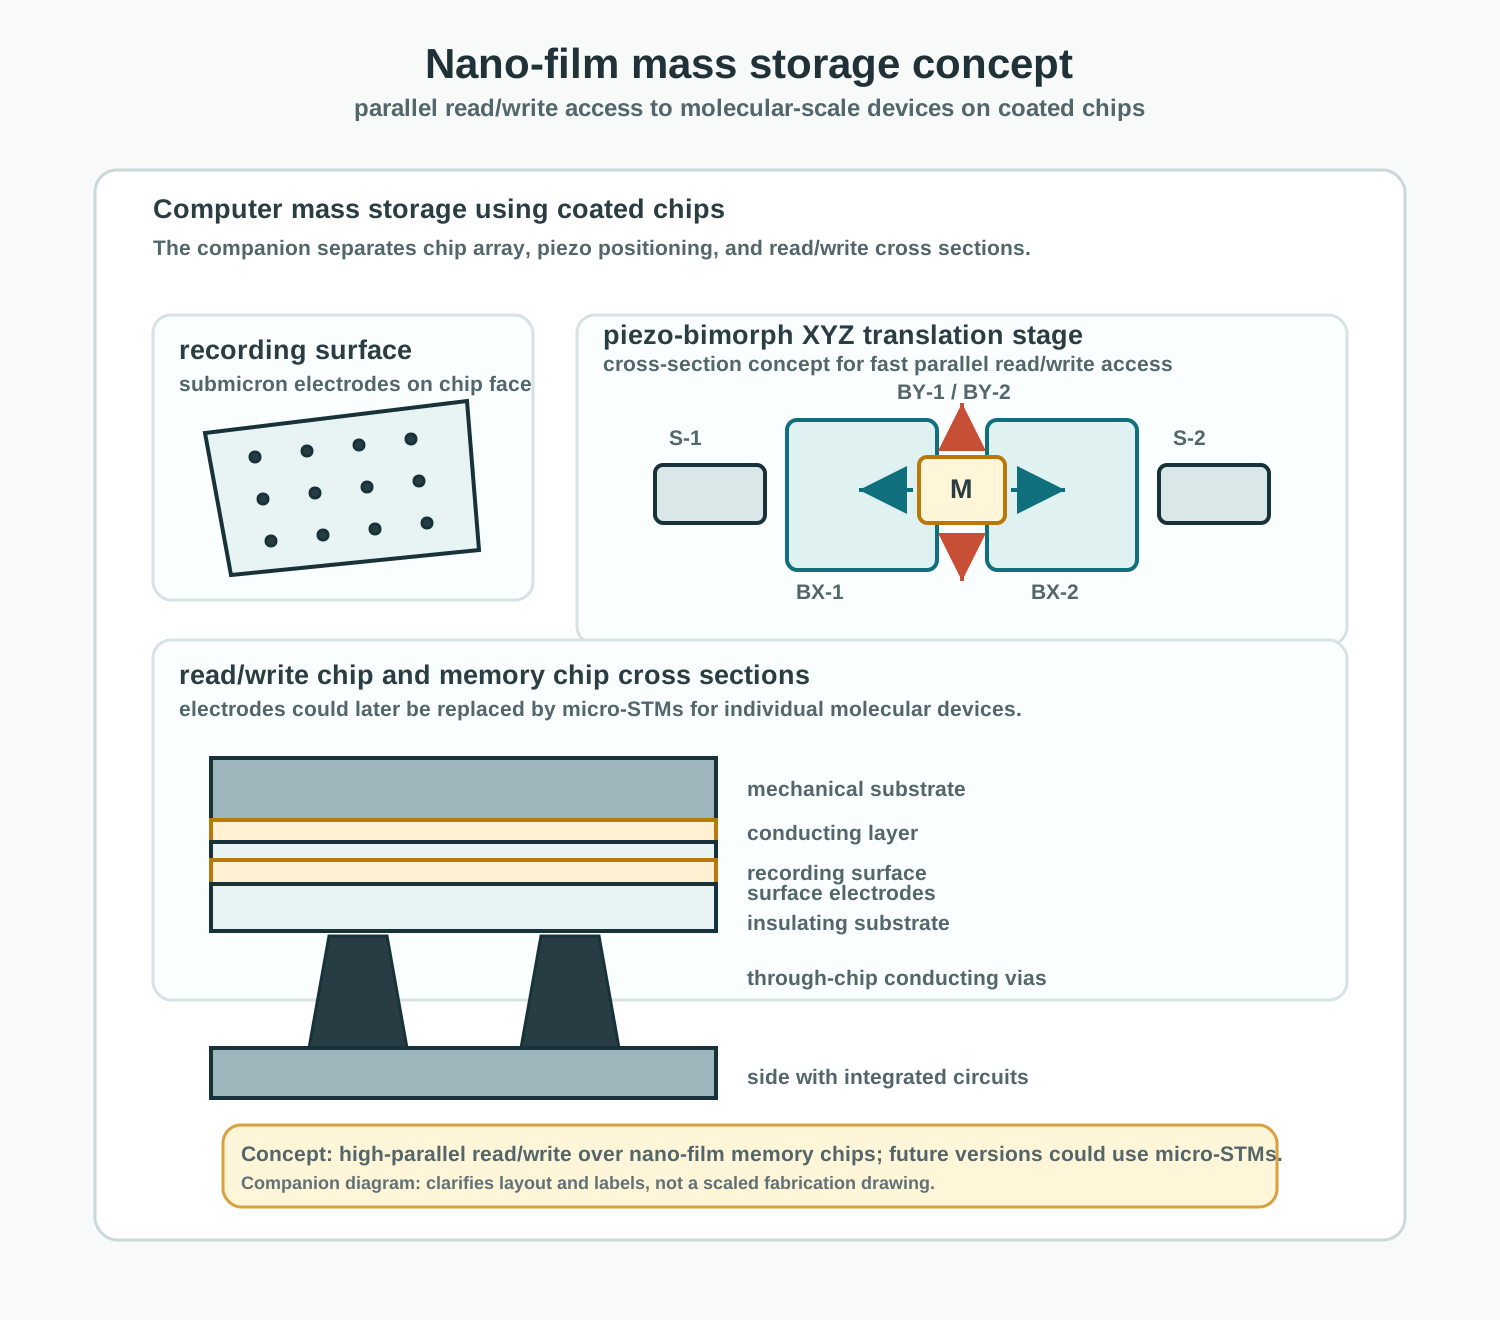

Figure 94: Figura 10.15: Un micro-STM formado sobre un sustrato de silicio; miles de estas estructuras pueden colocarse en un solo chip de silicio. Por Conrad Schneiker (Schneiker, 1986).
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica el micro-STM como estructura integrada de sonda sobre silicio, con punta y electrodos legibles en sección y vista superior, más la repetición propuesta a escala de chip.

Figure 95: Figura 10.16: Tres puntas STM en configuración para experimento de tunnel modulation. Por Paul Jablonka (Schneiker y Hameroff, 1987).
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica la configuración de tunnel modulation de tres puntas como sondas STM controladas independientemente que convergen en una unión nanoscale, con gaps de tunneling punteados y no trayectorias medidas.

Figure 96: Figura 10.17: Electrochemical tunnel switch/dispositivo de atomic memory. Por Conrad Schneiker (Schneiker, 1986).
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica el electrochemical tunnel switch como red conceptual de atomic memory, donde estados atómicos locales pueden escribirse y leerse mediante zonas de interacción por tunneling.
Durante charlas recientes sobre sus ideas de quantum computing, Feynman especuló brevemente sobre una posibilidad simple para fabricar componentes de nanocomputador: usar puntas STM para hacer agujeros diminutos en láminas metálicas muy delgadas, formando así rejillas para “nanovacuum tubes” de tunneling, quizá de alrededor de 3 a 10 nm de tamaño, o menores (Feynman, 1985, 1986). Dispositivos análogos, pero mucho mayores (hasta escala de 100 nm), con velocidades calculadas de switching en rango de picosegundos, han sido propuestos por Shoulders (1965). Aunque consideró dispositivos aún más pequeños y rápidos, las limitaciones de la tecnología de electron beam micromachining en aquel momento impidieron mayor reducción de tamaño (Shoulders, 1986). Los STM/FMs podrían resolver ese problema y muchos otros. De hecho, el Naval Research Laboratory está estudiando ahora tubos de vacío submicrónicos subpicosecond (milésima de nanosegundo) (Robinson, 1986).

Figure 97: Figura 10.18: Cambio de molecular conformation inducido/detectado por STM. Por Paul Jablonka (Schneiker y Hameroff, 1987).
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica el cambio de molecular conformation inducido y detectado por STM como interacción de sonda que flexiona una molécula y produce una lectura de tunneling current.
STM/FMs y Aplicaciones Biomédicas
Las interacciones STM no destructivas con material biológico tienen potencial inmenso, suponiendo que se superen ciertos obstáculos técnicos. Los problemas potenciales incluyen los siguientes:
- Biomoléculas, células y tejidos no son conductores. Electron tunneling a través de estos materiales, si ocurre, puede ser dañino. No obstante, varios grupos, incluido IBM Zurich, han logrado imaging de biomateriales en aire, como DNA recubierto de proteína y estructuras virales. Se piensa que el tunneling ocurre desde la punta hacia la superficie biomolecular, seguido por “low resistance electron transport to the conducting substrate” (Travaglini, Rohrer, Amrein y Gross, 1986). La optical microscopy simultánea, como puede ocurrir con la nanotech workstation, puede ayudar en esta situación, ya que los fotones pueden reducir tunneling barriers. La elección apropiada de longitudes de onda de optical microscopy puede facilitar así el STM imaging permitiendo tunneling currents no dañinas.
Un enfoque alternativo es utilizar un modo de operación atomic force microscope (AFM) para materiales biológicos. En este caso, una disposición de palanca adaptada y montada en un STM recorre la superficie, o se mantiene estable para observar dinámicas mecánicas del material (i.e. protein conformational change). El movimiento de la palanca es monitorizado por el STM, de modo que mapping y dynamics pueden observarse sin tunneling directo a través del biomaterial. Las puntas STM nanoscale de thermocouple y pipette descritas por Pohl de IBM (1987) también pueden ser útiles para materiales biológicos.
- Los biomateriales deberían estudiarse en un entorno estable lo más parecido posible al medio acuoso dentro del cytoplasm. Temperatura, pH, concentraciones ionic, disponibilidad de grupos fosfato de alta energía y numerosos otros parámetros necesitan regularse estrechamente. Investigadores de la University of California-Santa Barbara han demostrado que STM imaging puede ocurrir en interfaces líquido-sólido ionic. Al aislar las sondas STM hasta muy cerca de sus puntas, aparentemente se evita leakage significativo de corriente hacia el entorno acuoso ionic (Sonnenfeld y Hansma, 1986). Así, STM debería ser aplicable a la caracterización de biomoléculas vivas bajo condiciones fisiológicas estables.

Figure 98: Figura 10.19: STM tunneling switches modulados a frecuencias ópticas con láseres. Por Conrad Schneiker (Schneiker, 1986).
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica el STM tunneling switch modulado por láser como dos vistas esquemáticas en las que la entrada óptica modula uniones nanoscale etiquetadas T, J, L, S y M.
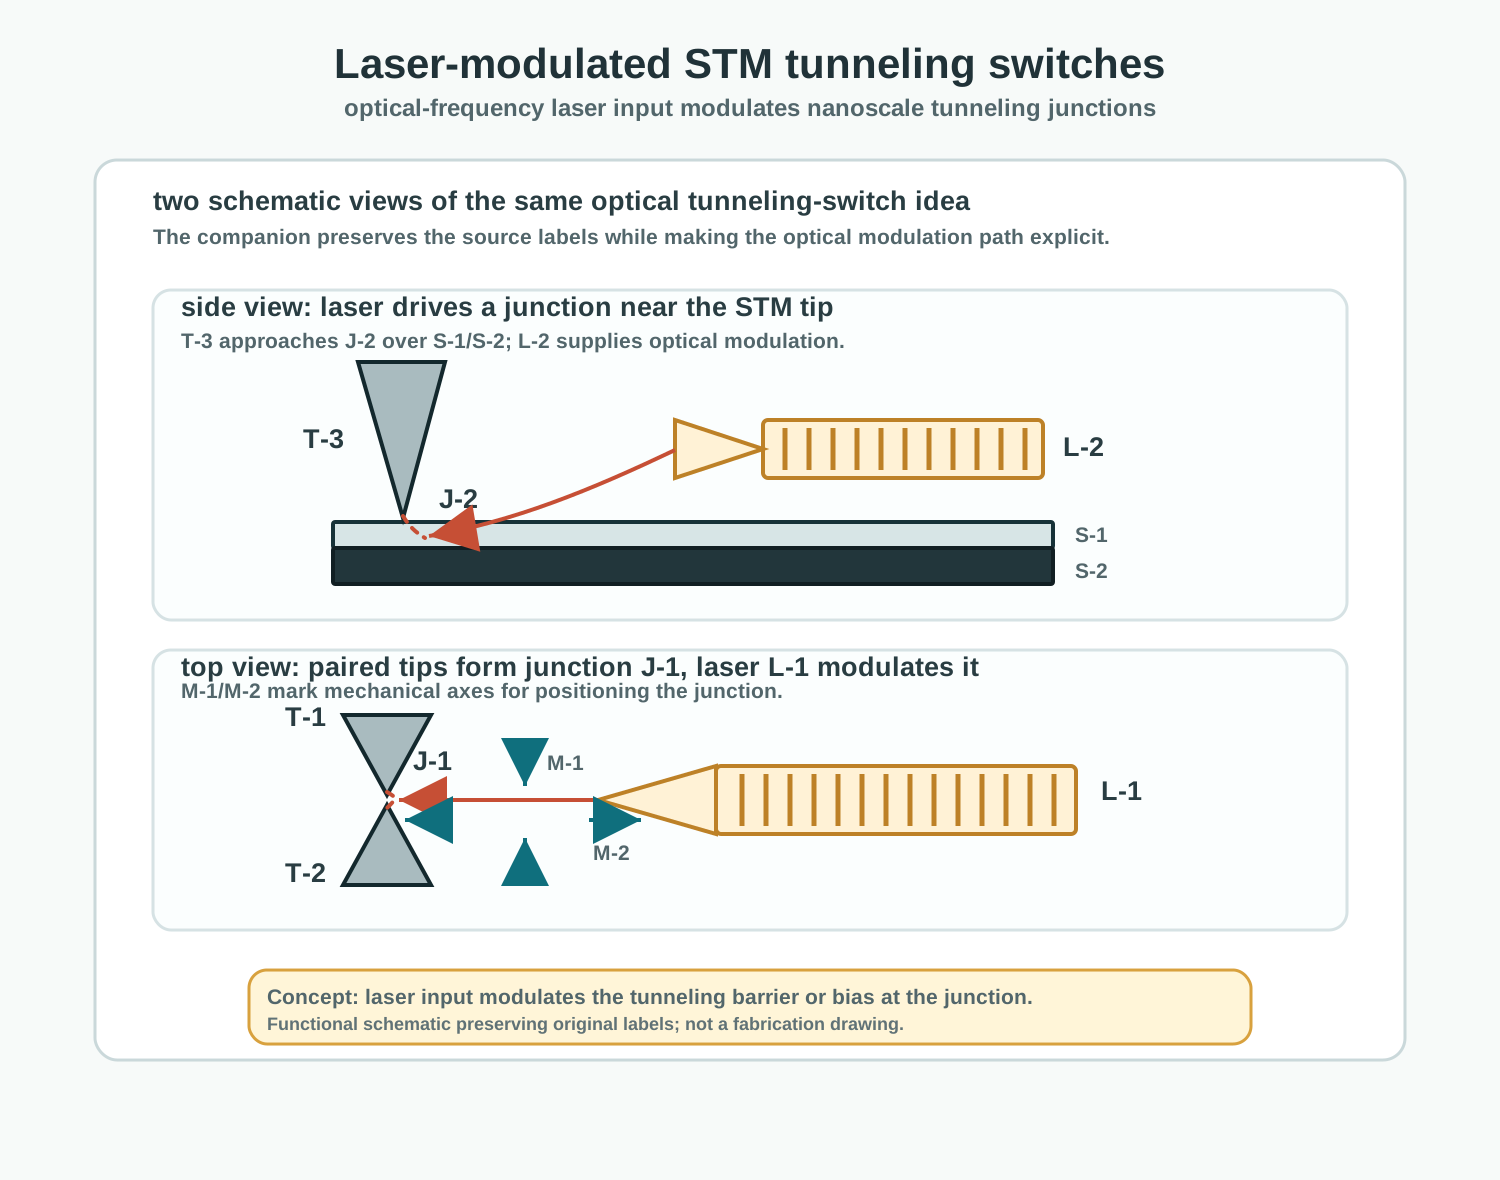
- Un tercer problema ha sido la “near sightedness” del STM. El grupo de Hansma en Santa Barbara y el equipo IBM-Zurich tuvieron dificultad para localizar moléculas de DNA sobre el sustrato de fondo con el STM. Este problema de “needle in a haystack” se resuelve potencialmente mediante una configuración de nanotechnology workstation en la cual el coarse approach del STM se simplifica por observación visual. Además, pueden utilizarse técnicas de immunofluorescence para identificar objetivos biomoleculares específicos y las propias sondas STM. Campos electrophoretic aplicados al sample stage pueden atraer e inmovilizar biomoléculas cargadas, haciéndolas más fáciles de localizar y estudiar (Lindsay, 1987).
Las aplicaciones potenciales de STM a biología y medicina incluyen imaging repetitivo y mapping estructural de material vivo, estudio no destructivo de cambios estructurales dinámicos como protein receptors (vía alteraciones en el modo AFM), detección de posibles phonons o solitons propagantes (usando configuraciones STM múltiples, una punta puede perturbar y otra detectar la perturbación en una segunda posición sobre una macromolecule o polymer), análisis espectroscópico (i.e. lectura de pares de bases de DNA, comunicación de cytoskeletal lattice), y real time imaging (vía high speed scanning) de estructuras vivas, lo que puede expandir los horizontes de las biociencias experimentales. Además, una capacidad para manipulación nanoscale de biomateriales y orgánulos ofrece una multitud de posibilidades imaginativas. Por ejemplo, unas pocas docenas de STM/FMs multipunta podrían desarrollarse para extraer, manipular, analizar y modificar directamente DNA u otros componentes celulares, asistiendo así enormemente a algunos subcampos de genetic engineering e investigación médica. La síntesis o modulación de moléculas biológicas importantes que son “topologically complex” (e.g. receptors, enzymes, antibodies, cytoskeleton), y que pueden ser difíciles y relativamente costosas usando la química sintética actual, podría llegar a ser factible con STM/FMs. Feynman (1961) comentó que cabe esperar gran progreso en biología cuando “you can simply look at, and work with individual molecules.” Los STM/FMs podrían ayudar a materializar aplicaciones biomédicas aún más grandiosas cuando se usen en combinación con genetic engineering: crear, modificar o programar micro-organisms para usos terapéuticos.
Ettinger (1972):
Si podemos diseñar patrones de comportamiento suficientemente complejos en organismos microscópicamente pequeños, hay posibilidades obvias e interminables, algunas de las más importantes en el área médica. Quizá podamos crear organismos guardianes y carroñeros en la sangre, superiores a los leucocitos y otros agentes de nuestra herencia humana, que cazarán y limpiarán eficientemente una amplia variedad de invasores hostiles o dañinos.
Asimov (1981) sugiere que:
Consideremos las bacterias. Éstas son cosas vivas diminutas compuestas por células individuales mucho más pequeñas que las células en plantas y animales… [Nosotros] podemos, diseñando apropiadamente estos esclavos diminutos nuestros, usarlos para remodelar el mundo mismo y construirlo cerca del deseo de nuestros corazones…
White (1969) propuso una noción similar para máquinas programables de reparación celular:
información genética apropiada puede introducirse por medio de partículas virales construidas artificialmente en una célula congénitamente defectuosa para remedio (y) … reparación. El programa de reparación debe usar las propias rutas de síntesis proteica y metabólicas de la célula para diagnosticar y reparar cualquier daño.
Los enfoques de biomedical nanotechnology que dependen solamente de genetic/protein engineering y self assembly (Asimov, 1981; Aridane, 1983; Drexler, 1981, 1986) están severamente constreñidos por la falta de control y observación directos: los atributos potenciales de STM/FMs. Híbridos y componentes de organismos, estructuras citoesqueléticas, virus y estructuras sintéticas pueden evolucionar, facilitados por capacidades STM/FM, para fabricar, examinar y modificar nanostructures. Ettinger (1972) anticipó “nanominiaturized robots to serve us.” Feynman (1961) informó que un amigo, Albert R. Hibbs, sugirió:
una posibilidad muy interesante para máquinas relativamente pequeñas. Dice que, aunque es una idea muy loca, sería interesante en cirugía si pudieras tragarte al cirujano. Pones el cirujano mecánico dentro del vaso sanguíneo… Otras máquinas pequeñas podrían incorporarse permanentemente dentro del cuerpo…
Feinberg (1985) ve:
… la construcción de nanosensors que podrían implantarse en el cuerpo humano. Podrían … [monitorizar] varias funciones fisiológicas desde moléculas subcelulares hasta tejidos y órganos … esenciales para determinar algunos de los mecanismos involucrados en crecimiento y envejecimiento.
Feinberg (1985) también propuso el uso de energía láser para alimentar y comunicarse con sensores implantados, y para dirigir actividades de nanorobots.
… usando radiación coherente de longitud de onda corta, nosotros también podremos igualar los logros de las células que nos componen, y hacer molecular engineering.
Estas estructuras moleculares serán mucho más complejas que cualquier cosa que la tecnología humana haya logrado hasta ahora… Puede ser posible extender algunos de los métodos que usan … radiación coherente de longitud de onda corta … a nanofabrication así como a ver lo que estamos haciendo en el nanoworld, puesto que microholography puede usarse para desmagnificar patrones así como para magnificarlos.
Existen rationale y aplicabilidad para nanodevices móviles cuyas misiones podrían ser acechar y destruir virus letales o malignidades, excavar vasos sanguíneos obstruidos, corregir expresión genética y diferenciación, reparar o eliminar los procesos de ageing incluidos senile tangles de cytoskeletal proteins, y quizá aumentar capacidades naturales. Virtualmente toda enfermedad podría ser susceptible de visitas domiciliarias intracelulares por tales estructuras, si llegan a existir. Tales nanodevices podrían modelarse a partir de, o utilizar directamente, elementos citoesqueléticos (centriolos, microtúbulos, etc.), virus (bacteriófagos) programados por genes específicamente engineered, y/o controlados por telemetry. Materiales sintéticos, incluidos nano STM/FMs compuestos de piezo-materials, pueden incorporarse.
Ellis (1962) discutió la posibilidad de microteleoperators (y sugirió que protein enzymes pueden funcionar de esta manera). Nanoantennas han sido propuestas por Marks (1985), quien describió dos capas ortogonales (de unos 200 nanómetros de longitud) de arrays de antenas dipolares metálicas que pueden convertir fotones en corriente directa con 75 por ciento de eficiencia. Javan (1985, 1986) ha estudiado metal whiskers que pueden formar tunnel junctions y pueden ser adecuados como nanoantennas. La noción de Feinberg (1985) de comunicación mediante radiación coherente de longitud de onda corta, y el concepto de nanoaperture de Pohl, podrían utilizarse para feedback remoto de nanovision y observación de actividades nanoscale (Schneiker, 1986).
STM/FMs combinados con genetic engineering y técnicas inmunológicas podrían usarse para crear, observar y evaluar tales nanodevices móviles cuyas capacidades serían optimizadas como replicating automata.
Replicating Automata
Las ideas de máquinas automáticas y robots han existido durante siglos, pero no fue hasta el trabajo de John von Neumann a mediados del siglo XX cuando hubo prueba matemática de la posible existencia de self-replicating automata en un sentido físico real. Suponiendo que pudiera encontrarse el material apropiado, y usando neighbor logic relativamente simple, las subunidades podrían ensamblarse espontáneamente en estructuras complejas, desensamblarse dinámicamente, multiplicarse o reordenarse en configuraciones sucesivas. Freeman Dyson (1979), Schneiker (1986) y otros han considerado la utilidad profunda de tales replicators robóticos hipotéticos en usos y tamaños que van desde exploración del espacio exterior hasta mobiliario doméstico y nanoscale “Hibb’s machines”, o nanodoctors. Dyson (1979) previó self-replicators que, tras ser lanzados desde la Tierra hacia un asteroide o planeta, podrían extraer sus propias materias primas y formar relaciones simbióticas con otras formas de “life”. Shoulders (1961) extendió el concepto de replicators a la nanoscale, donde su existencia podría tener amplios rangos de aplicaciones científicas y médicas.
La implementación de replicators útiles en el mundo real enfrenta muchos obstáculos. Un grupo de estudio de NASA (Bekey y Naugle, 1980) encontró que la famosa prueba de von Neumann hacía supuestos mayores y evitaba problemas significativos. Schneiker (1987) ha resumido un enfoque para simplificar el desarrollo de replicative automata minimizando los diferentes tipos de materiales/partes necesarios, el número de factores dependientes de escala, la tolerancia y desgaste de piezas, y la complejidad de ensamblaje. Otro requisito es aumentar la fiabilidad (i.e. por detección intrínseca de errores, reparación, regeneración). Actualmente, estos rasgos sólo son cumplidos por simulaciones computacionales o estructuras puramente biológicas como cytoskeletal proteins y virus.
Schneiker (1986) señala que microreplicators simples, aumentados con STM/FMs, podrían producir en masa productos de nanotechnology en cantidades virtualmente ilimitadas. Nanotechnology aplicada a nuevos materiales superconductive (y viceversa) puede ayudar a implementar micro-automata replicativos útiles que, a su vez, podrían producir nanodevices en cantidades vastas. Hasta hace poco se pensaba que la superconductividad estaba limitada a temperaturas cercanas al cero absoluto; sin embargo, se ha mostrado que algunos materiales tienen superconductive transitions a temperaturas mucho más cálidas y fácilmente alcanzables (Robinson, 1987).
El aumento dramático en superconducting transition temperatures en ciertos materiales, y la disponibilidad de corriente, imanes y motores sin pérdida pueden anunciar una ola de avances científicos, tecnológicos y económicos. Schneiker sostiene que entre ellos estará la facilitación de tecnología STM (superconductive tunneling), Josephson junctions, sensores magnéticos, así como replicators superconductores. Los materiales superconductores ofrecen beneficios de scaling, simplicidad de diseño, necesidades de baja potencia y alta densidad de componentes. Imanes y bobinas superconductores podrían formar “glue” o “clamps” conmutables para sostener subensamblajes, generar patrones de campo magnético conmutables, dirigir ensamblaje, posicionamiento y funciones dinámicas, accionar motores rotatorios/lineales o formar canales superconductores o guideways para transporte de material (Schneiker, 1987).
La inteligencia colectiva que ocurre en parallel replicating automata ha sido estudiada por Christopher Langton (1986), de Los Alamos National Laboratories. Langton es el organizador de una conferencia de Los Alamos sobre “Artificial Life”, el estudio de sistemas computacionales que exhiben comportamiento característico de la vida natural. Explorando modelos de cellular automata y self-replicators, Langton (1987) espera “extract the molecular logic of living systems”.
Langton (1987) afirma:
La tecnología microelectrónica y genetic engineering pronto nos darán la capacidad de crear nuevas formas de vida in silico así como in vitro. Esta capacidad presentará a la humanidad los desafíos técnicos, teóricos y éticos de mayor alcance que haya enfrentado jamás.
El Futuro de la Conciencia
Nanotechnology puede permitir que el sueño de la fusión Mind/Tech se materialice. Por fin, los debates sobre la naturaleza de la conciencia se desplazarán del dominio de la filosofía a experimentos a gran escala. Las visiones de conciencia interfacing con, o existiendo dentro de, computadores o robots pilotados por la mente expresadas por Moravec, Margulis, Sagan y Max Headroom podrían realizarse. La asociación simbiótica de nanodevices replicativos y redes citoesqueléticas dentro de células vivas no sólo podría contrarrestar procesos de enfermedad, sino conducir a intercambio de información codificada en los collective dynamic patterns de estados de subunidades citoesqueléticas. Si éstas son realmente las raíces de la conciencia, un desciframiento y transferencia science fiction-like de mind content puede volverse posible. Un escenario posible podría utilizar una pequeña ventana en una región cerebral específica. El lóbulo temporal hipocampal, un sitio donde entran las memorias y donde la radiación electromagnetic procedente de fuera del cráneo penetra de manera más fácil e inocua, es una posible área donde la información distribuida por todo el cerebro quizá pueda ser accedida y manipulada. Técnicas como laser interferometry, sondas electroacoustical escaneadas sobre superficies cerebrales, o nanoprobes replicativas immunotargeted hacia tubulins hipocampales clave, MAPs y otros componentes citoesqueléticos podrían desarrollarse para percibir y transmitir el contenido de la conciencia.
¿Qué dispositivo tecnológico sería capaz de recibir y albergar la información emanada de unas 1015 subunidades de tubulina cambiando de estado unas 109 veces por segundo? Una posibilidad es un array personalizado de nanoscale automata, quizá utilizando materiales superconductores. Otra posibilidad es un array genetically engineered de unas 1015 subunidades de tubulina (o muchas más) ensambladas en parallel tensegrity arrays de microtúbulos interconectados y otras estructuras citoesqueléticas. Las capacidades actuales y de futuro cercano de genetic engineering deberían permitir el aislamiento de genes responsables de las cytoskeletal proteins cerebrales de un individuo específico, y su reconstitución en un medio apropiado. Así, las dos fuentes evidentes de mind content (herencia y experiencia) podrían reunirse finalmente en un artificial consciousness environment. Un array citoesquelético polimerizado sería altamente inestable y dependiente del mantenimiento bioquímico, hormonal y farmacológico de su medio. La monitorización y control precisos de cytoskeletal consciousness environments pueden convertirse en una nueva rama importante de anesthesiology. La polimerización de cytoskeletal lattices cell-free estaría limitada en tamaño (e intelecto potencial) debido al colapso gravitacional. Posibles remedios podrían incluir hibridar el array citoesquelético mediante deposición metálica, simbiosis con nanoreplicators sintéticos, o colocación del array citoesquelético en un entorno de gravedad cero. Quizá future consciousness vaults se construirán en estaciones espaciales orbitantes o satélites. Personas con enfermedades terminales pueden elegir depositar su mente en tal lugar, donde su conciencia pueda existir indefinidamente, y (debido a enhanced cooperative resonance) en una magnitud mucho mayor. Quizá muchas mentes puedan comingle en un único gran array, obviando la soledad, pero planteando nuevos asuntos sociopolíticos. Entretenimiento, comunicación con la Tierra, y mantenimiento bioquímico del ánimo y del medio pueden ser suministrados por robótica, quizá conduciendo a la próxima simbiosis: robotic space voyagers (¿con forma de centriolos?) cuya inteligencia deriva de cytoskeletal consciousness.
Sí, esto es ciencia ficción. ¿Se volverá realidad como tanta ciencia ficción previa lo ha hecho? Probablemente no precisamente como se sugiere; pero si los acontecimientos pasados son indicadores válidos, el futuro de la conciencia puede ser aún más extravagante.

Figure 99: Figura 11.1: Múltiples puntas STM sondeando un microtúbulo. Por Paul Jablonka (Schneiker y Hameroff, 1987).
Ver companion visual contemporáneo
Companion visual contemporáneo. No sustituye la figura original; clarifica la disposición especulativa de múltiples sondas STM sobre la superficie de un microtúbulo.
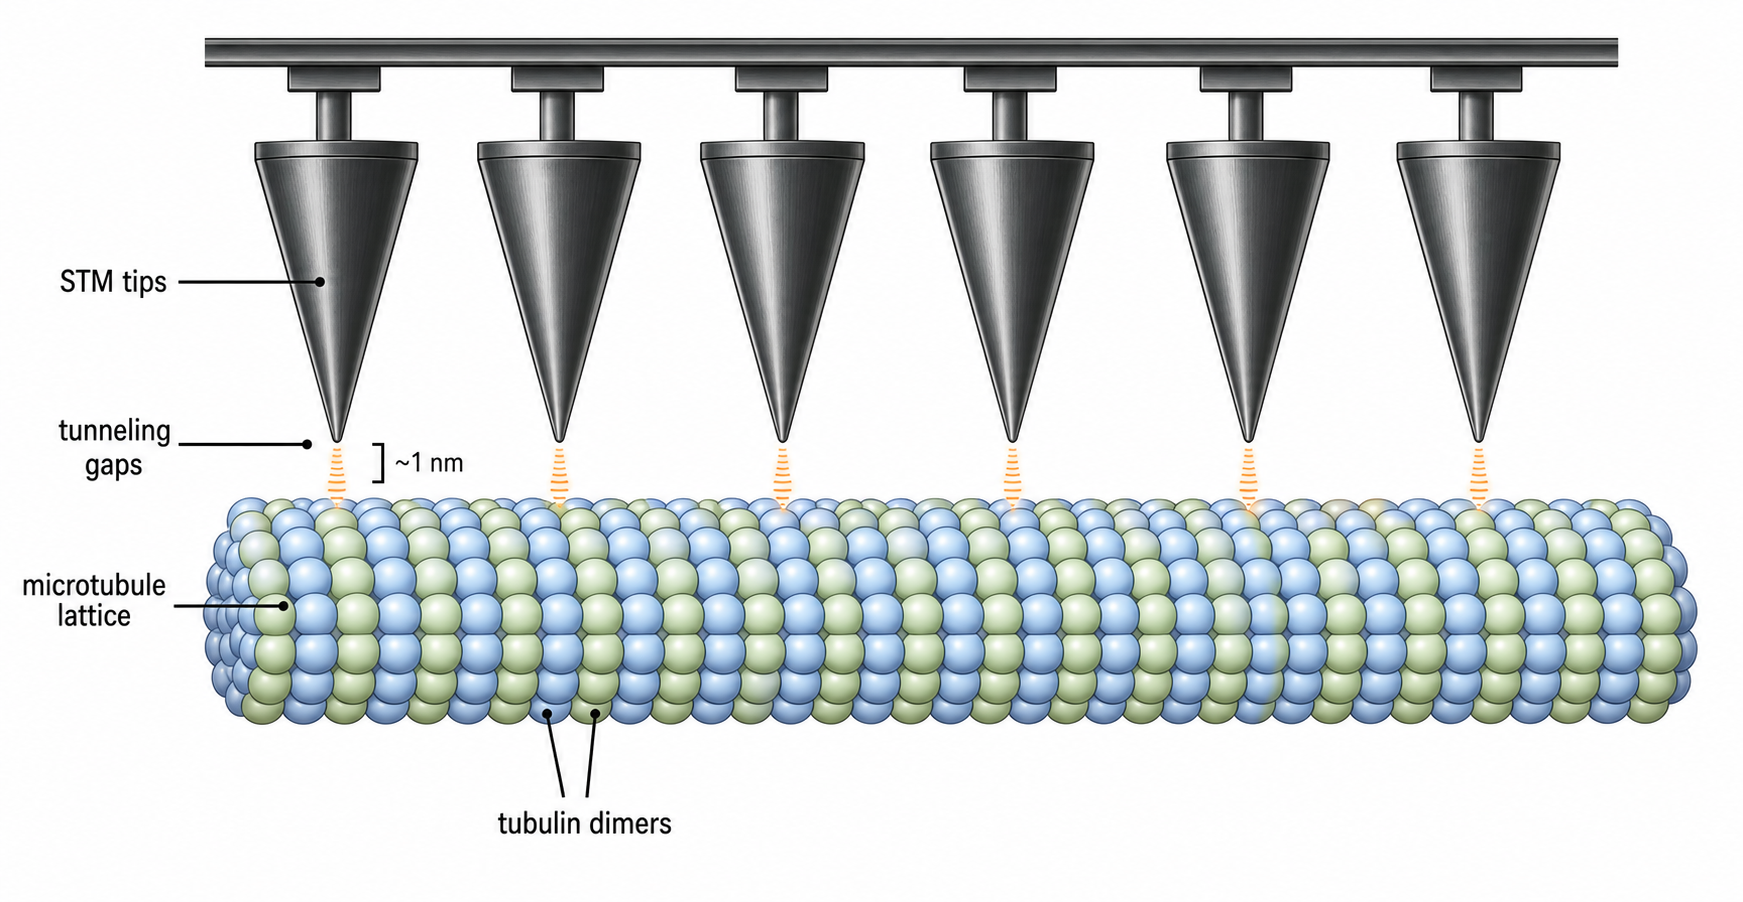
Bibliografía
Las referencias bibliográficas se conservan en la edición original en inglés, para mantener la forma en que fueron citadas y evitar traducir títulos cuya existencia editorial en español no está asegurada.